A Bioenergética Corresponde Ao Estudo Das Transduções Energéticas

O que realmente acontece quando você estuda energia em sistemas biológicos
A bioenergética corresponde ao estudo das transduções energéticas e esse título meio seco esconde uma realidade bem mais complicada do que qualquer livro didático quer. Vou direto ao ponto: a maioria das pessoas aprende que ATP é a moeda energética da célula e pronto. Ache que entendem o assunto. Na prática, isso é superficial. O que separa quem entende de quem decora é saber o que acontece quando o gradiente não funciona como deveria. Eu passei meses tentando entender por que medições de consumo de oxigênio em mitocôndrias isoladas davam resultados inconsistentes em diferentes laboratórios. O problema não era técnico. Era conceitual. Os protocolos padrão assumem que os complexos da cadeia respiratória se comportam de forma independente, mas não é bem assim. A eficiência de cada complexo depende do potencial eletroquímico do gradiente, que por sua vez depende da atividade dos complexos vizinhos. É um sistema acoplado, não uma linha de montagem.
Transdução de energia na prática: o que ninguém conta nos manuais
A transdução energética na bioenergética não é apenas sobre converter um tipo de energia em outro. A parte que os livros pulam é que toda transdução tem perdas inevitáveis e essas perdas não são constantes. Elas variam com a temperatura, o estado de hidratação da membrana, a composição lipídica e até com a concentração de íons específicos. Eu já vi estudos reportarem eficiências de fosforilação oxidativa entre 40% e 65% para o mesmo substrato em condições aparentemente idênticas. A diferença estava na pureza das preparações mitocondriais e no tempo entre a homogeneização e o início da medida. Um detalhe prático que causa erros frequentes: a relação P/O. Esse número que todo mundo memoriza como 2,5 para NADH e 1,5 para FADH2 é uma média teórica. Na prática, a relação real varia porque parte do gradiente de prótons é dissipada para outras funções além da síntese de ATP. A F0F1-ATP sintase não é o único consumidor do proton motive force. Transportadores como o carrier de fosfato, a troca ADP/ATP e a manutenção do potencial de membrana em si consomem prótons. Quando você quer medir a eficiência real de um sistema, precisa considerar tudo isso, senão seus números não batem.
Um problema real que encontrei e como resolvi
Trabalhando com isolamento mitocondrial de fígado de rato, percebi que a taxa de respiração no estado 4 (sem ADP disponível) variava drasticamente entre preparações. Alguns lotes mostravam um controle respiratório excelente, acima de 10, outros mal passavam de 3. O controle respiratório é a razão entre a taxa com ADP e a taxa sem ADP. Valores baixos indicam vazamento de prótons pela membrana interna. A princípio, pensei que fosse problema na técnica de homogeneização. Testei diferentes protocolos, tempos, temperaturas, agentes quelantes. Nada resolvesse consistentemente. A solução veio de observar um padrão que eu tinha ignorado: as preparações com pior controle respiratório sempre vinham de animais que tinham recebido alimentação restrita nas 12 horas anteriores. A depleção de glicogênio hepático altera a composição lipídica da membrana mitocondrial interna. Especificamente, aumenta a proporção de ácidos graxos insaturados nos fosfolipídios, o que aumenta a fluidez e, consequentemente, a permeabilidade ao próton. O protocolo padrão de isolamento não leva isso em conta. O workaround foi simples mas não óbvio: manter os animais com alimentação livre durante pelo menos 24 horas antes do experimento e usar o mesmo lote de dieta. A variabilidade caiu para menos de 15% entre preparações.

O que acontece quando você ignora a termodinâmica por trás do processo
Aqui vai algo que poucas pessoas percebem: a bioenergética não é só cinética. O potencial de membrana mitocondrial fica tipicamente entre 150 e 180 mV. A variação de pH transmembrana é de cerca de 0,5 a 1 unidade. Juntos, esses componentes formam o proton motive force, descrito originalmente por Peter Mitchell. O ponto que muitos erram é tratar o p como uma grandeza fixa. Ele muda conforme a demanda energética da célula. Quando a demanda é baixa, o p sobe e a ATM sintase funciona de forma menos eficiente. Quando a demanda é alta, o p cai, mas a taxa de produção de ATP aumenta até um limite. Passar desse limite significa perder o gradiente e a célula entra em colapso energético. Isso acontece em situações de isquemia-reperfusão, por exemplo. Outro erro comum é assumir que inibidores da cadeia respiratória são ferramentas limpas. O antimicina A, por exemplo, inibe o complexo III, mas também gera espécies reativas de oxigênio que danificam a membrana. Em experiências prolongadas, o dano acumulado altera a permeabilidade e seus dados acabam medindo o efeito colateral, não o efeito direto do inibidor. O jeito certo é usar concentrações mínimas efetivas e tempos curtos de exposição, preferencialmente com controles de viabilidade pós-experimento por corante de exclusão ou medição de citocromo c no meio.
Limitações e onde a abordagem padrão falha
Não adianta romantizar o que a bioenergética consegue responder. Ela lida com sistemas abertos, fora do equilíbrio termodinâmico, em constante alteração. Medidas in vitro de mitocôndrias isoladas têm um problema estrutural: elas perdem a arquitetura celular. As mitocôndrias in vivo estão organizadas em redes, associadas ao retículo endoplasmático, ao citoesqueleto e a domínios específicos da célula. Isolar essas mitocôndrias muda a geometria do sistema, a disponibilidade de substratos e a regulação alostérica. Dados de respiração em célula inteira, medidos com eletrodos de Clark ou plataformas Seahorse, dão uma imagem mais fiel, mas introduzem outra série de problemas, como a contribuição de vias metabólicas não mitocondriais para o consumo de oxigênio. A técnica de fluorometria com tetraciclineas, como a-rodamina 123 ou JC-1, permite visualizar o potencial de membrana em células vivas, mas esses corantes têm efeito despolarizante concentracional. Em concentração alta, eles mesmos alteram o que estão medindo. O ideal é fazer curvas de dose-resposta do corante e trabalhar sempre na faixa onde a resposta é linear e o efeito da sonda é desprezível. Isso consome tempo extra, mas evita dados falsos. Se você está começando nessa área, foque em dominar a termodinâmica por trás dos processos antes de pegar qualquer equipamento de medida. Entender a equação de Nernst, o conceito de acoplamento quimiosmótico e as limitações práticas das técnicas disponíveis vai economizar semanas de trabalho com resultados duvidosos. O campo avança rápido, mas os fundamentos não mudaram nos últimos 40 anos. Quem domina isso não precisa depender de pilares de software ou protocolos comerciais para interpretar o que está vendo.
Galeria
-
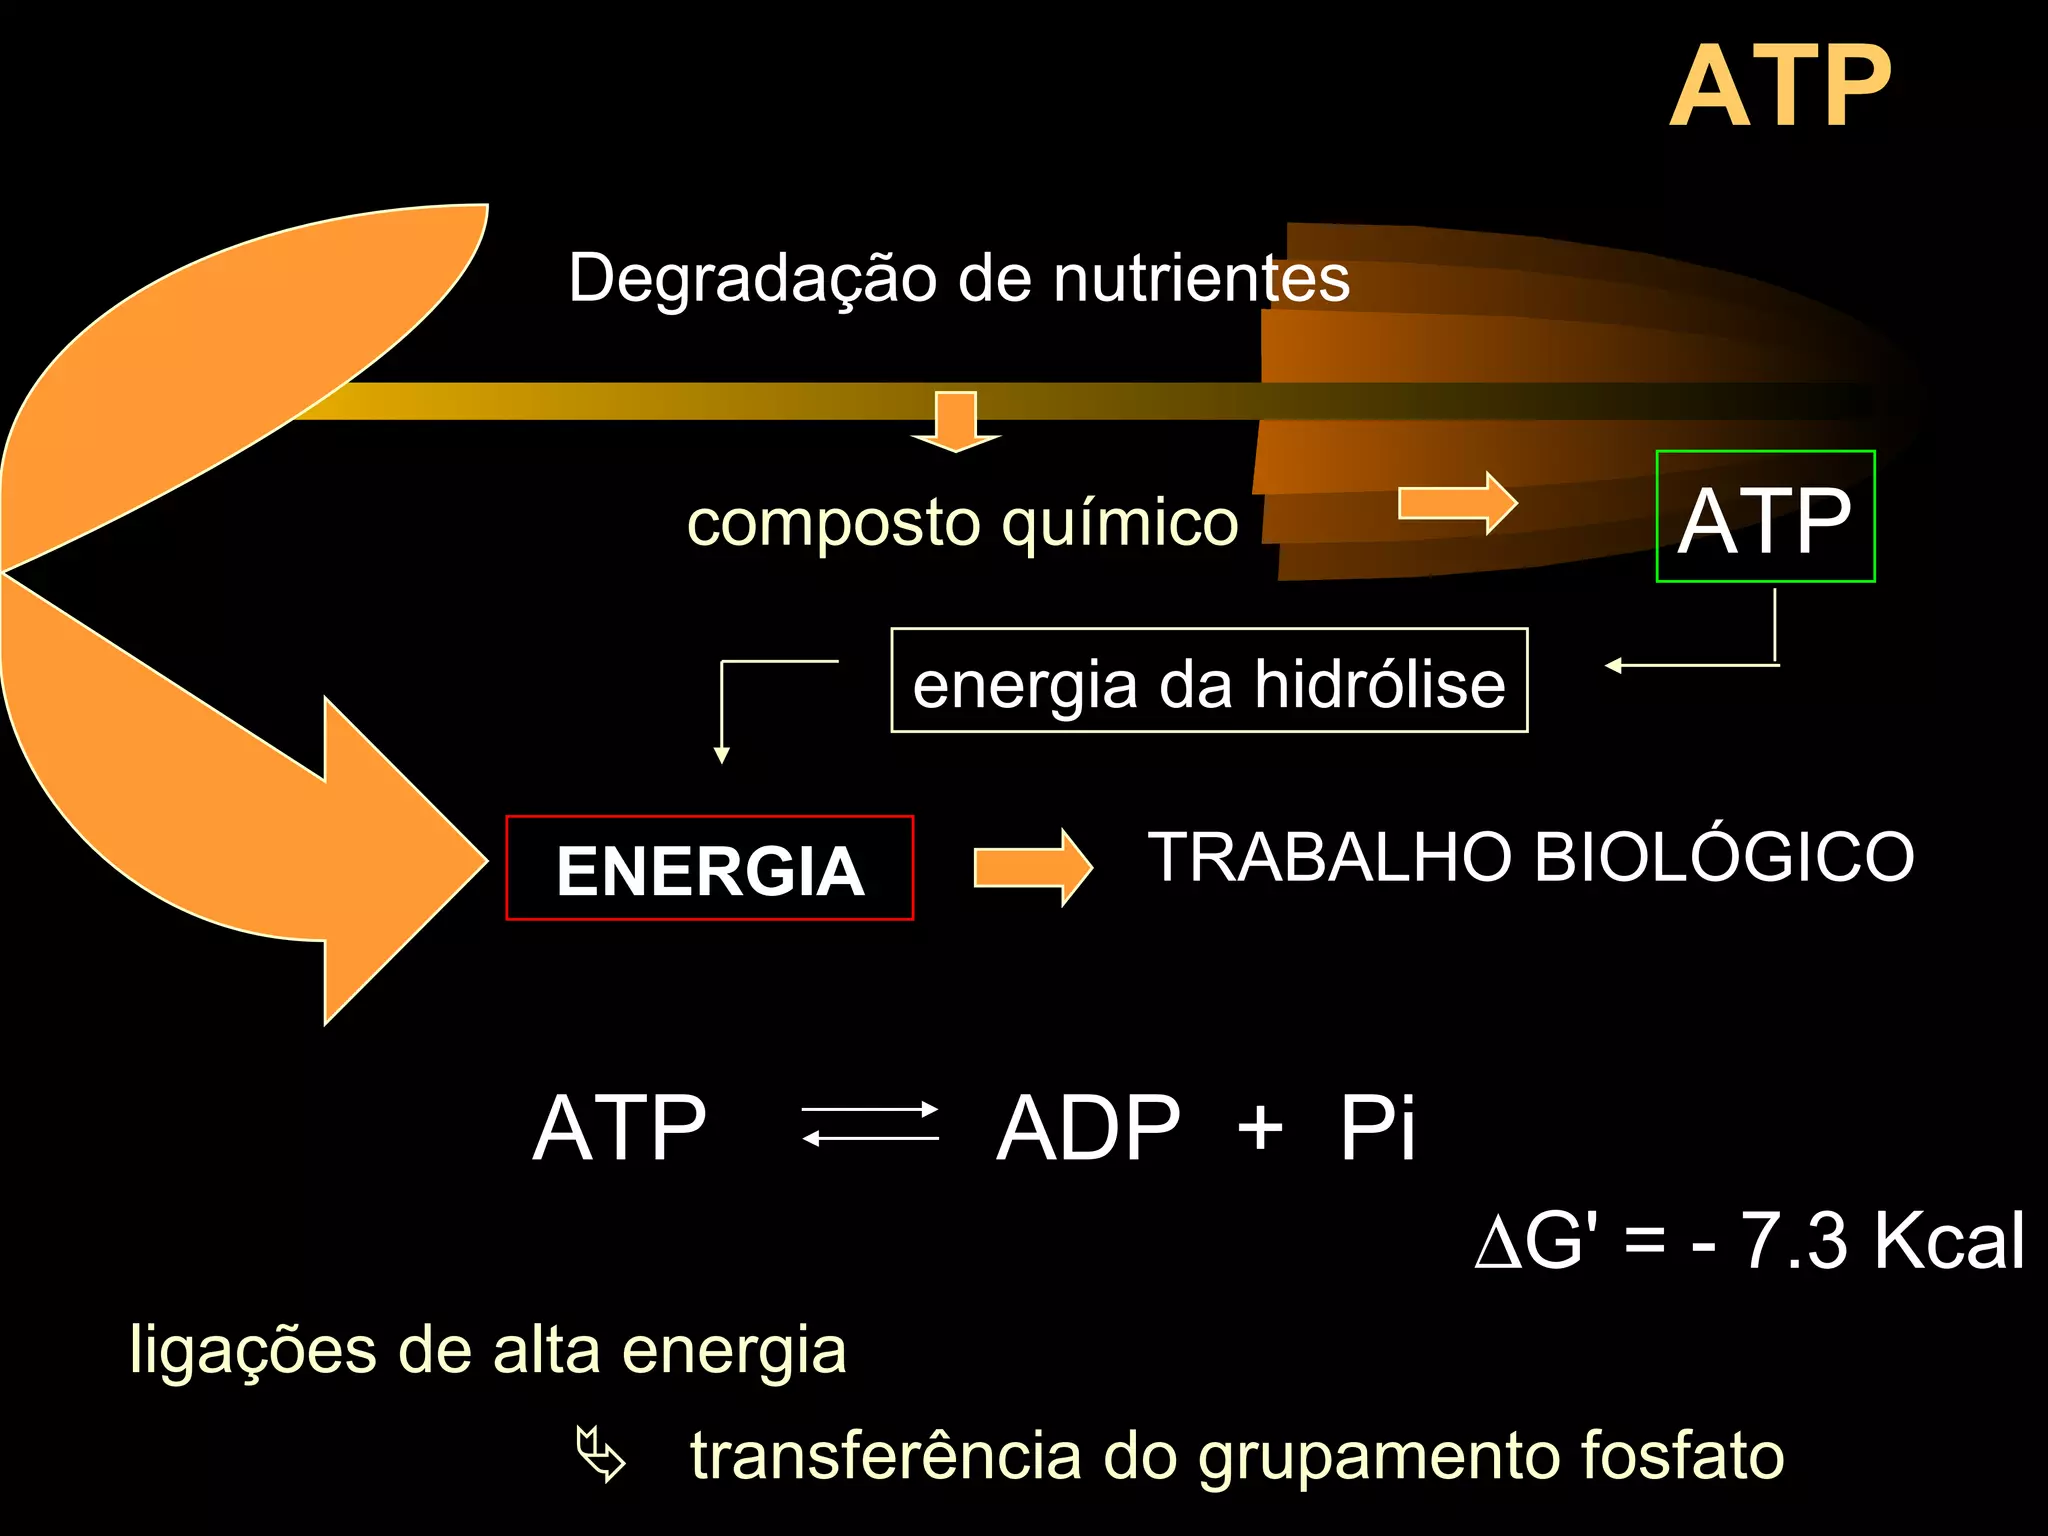
Bioenergetica 2 | PPT -

MAPA MENTAL SOBRE BIOENERGÉTICA - Maps4Study -

MAPA MENTAL SOBRE BIOENERGÉTICA - Maps4Study -

MAPA MENTAL SOBRE BIOENERGÉTICA - Maps4Study
