A Membrana Plasmática É Constituída Por Uma Bicamada De

O que acontece quando você tenta entender a membrana plasmática de verdade
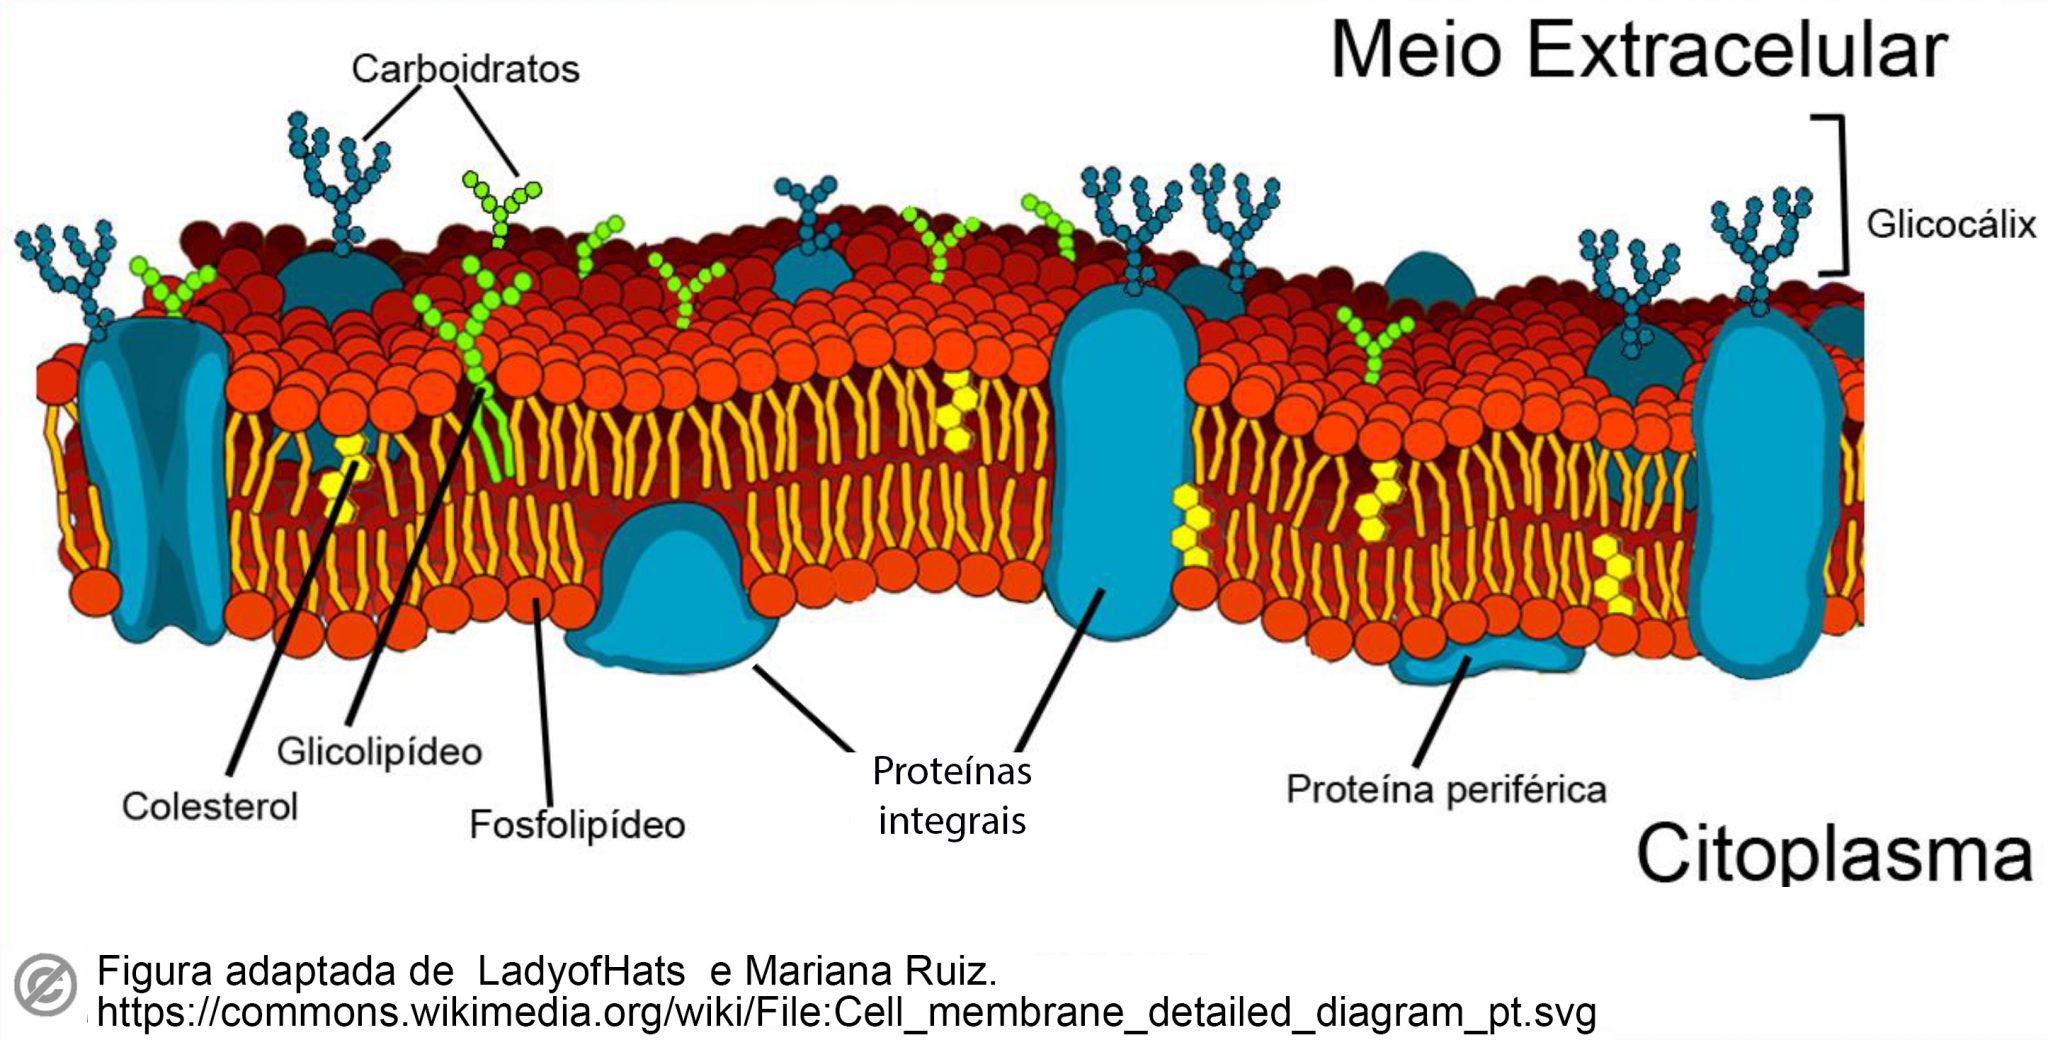
A membrana plasmática é constituída por uma bicamada de fosfolípidos, e a maioria dos livros para por aí. Na prática, esse é apenas o começo. A estrutura é dinâmica, assimétrica e cheia de nuances que aparecem quando você realmente precisa manipular células em laboratório ou interpretar dados de microscopia eletrônica. Vou explicar como isso funciona fora do textbook. Fosfolípidos têm uma cabeça hidrofílica e duas caudas hidrofóbicas. Em meio aquoso, eles se organizam espontaneamente numa bicamada. Isso é termodinâmica básica, empacotamento hidrofóbico. O que os livros não destacam é a assimetria entre as duas monocamadas. A camada externa é rica em fosfatidilcolina e esfingomielina. A camada interna, voltada para o citoplasma, carrega fosfatidilserina, fosfatidiletanolamina e, em células especializadas, fosfatidilinositol. Essa assimetria não é acidente. Ela é mantida por enzimas chamadas flipases, floppases e scramblases. Flipases usam ATP para mover fosfatidilserina da camada externa para a interna. Floppases fazem o contrário, também com gasto de energia. Scramblases, quando ativadas, desfazem a assimetria rapidamente. Um exemplo prático: durante a apoptose, a scramblase é ativada e a fosfatidilserina aparece na face externa. Isso funciona como um sinal de "me coma" para macrófagos. Se você está estudando imunologia ou apoptose, esse detalhe é essencial, não opcional.
No laboratório, eu já vi estagiários interpretarem manchas escuras em microscopia eletrônica como artefato de fixação, quando na verdade eram domínios de lipid rafts — microdomínios ricos em colesterol e esfingolipídios que se destacam por terem espessura e fluidez diferentes do restante da bicamada. A diferença de contraste na micrografia vem da densidade eletrônica dos esfingolipídios, que têm caudas mais saturadas e longas que o resto da membrana.
Propriedades físicas que importam na prática
A bicamada não é um sólido. É um fluido bidimensional. O modelo de Singer e Nicolson, o mosaico fluido de 1972, ainda é a base, mas ele é incompleto se aplicado literalmente. A fluidez da membrana depende de três fatores principais: composição de ácidos graxos, conteúdo de colesterol e temperatura. Caudas saturadas empacotam melhor, tornando a membrana mais rígida. Caudas insaturadas criam dobras nos duplos ligações, impedem empacotamento apertado e aumentam a fluidez. O colesterol age como um modulador: em membranas muito fluidas, ele se interpõe entre fosfolípidos e reduz o movimento das caudas, rigidificando. Em membranas muito rígidas, ele atrapalha o empacotamento excessivo e mantém alguma fluidez. O efeito líquido é uma zona de estabilidade. Eu trabalhei num projeto de caracterização de vesículas lipídicas para entrega de fármacos, e o problema era consistente: lipossomas preparatos com DPPC (ácidos graxos completamente saturados) tinham transição de fase a 41°C. Acima dessa temperatura, a membrana passava de gel para líquido-cristalino de forma abrupta. Abaixo, estava tão rígida que a fusão com membranas biológicas simplesmente não acontecia. A solução foi misturar com DSPC e adicionar cerca de 30-40% de colesterol em mol. Isso estreitou a transição e estabilizou a bicamada numa faixa de temperatura fisiológica. O custo foi maior complexidade de formulação e controle de tamanho de partícula, que passou a exigir extrusão repetida por membranas de 100nm por pelo menos cinco passagens.
Proteínas de membrana: o que realmente complica as coisas
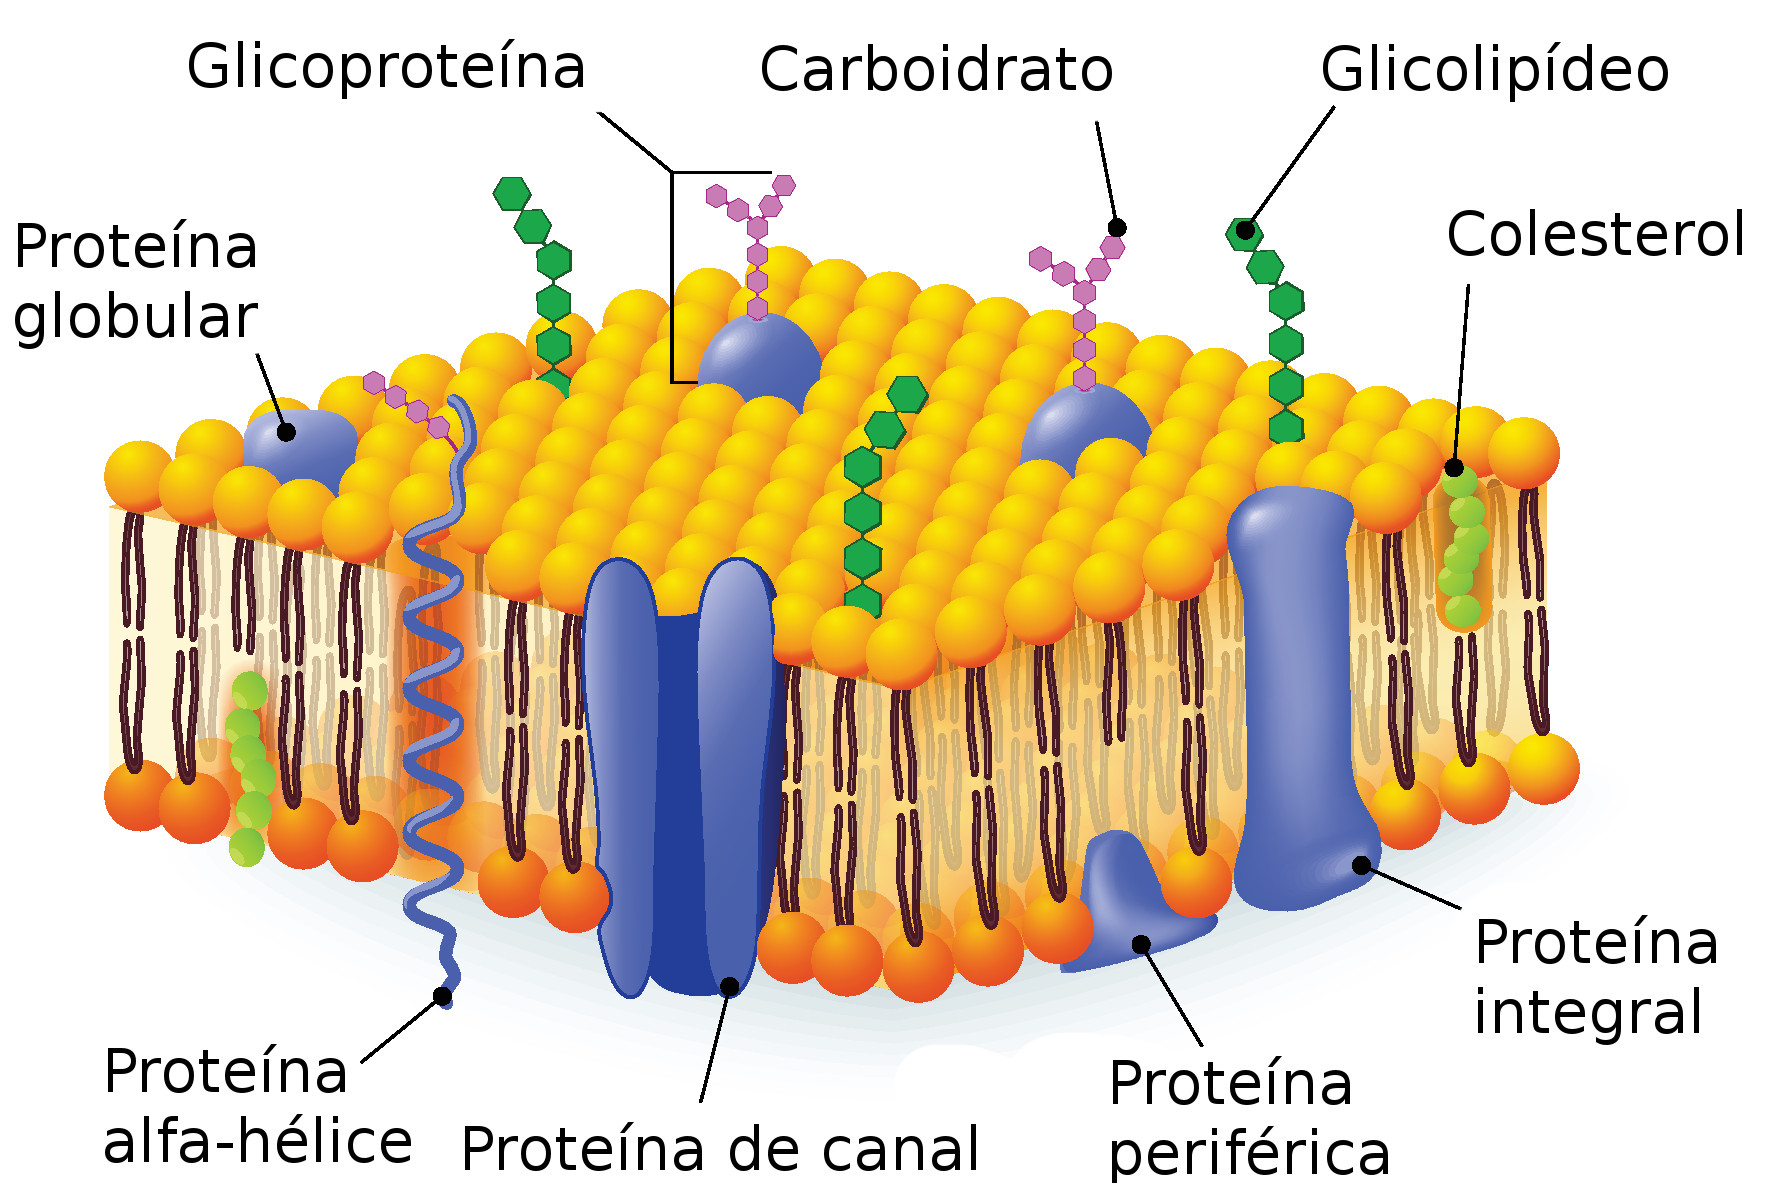
A bicamada é o palco, mas as proteínas são quem fazem o trabalho. Elas se dividem em integrais (transmembrana ou parcialmente inseridas) e periféricas (ligadas por interações eletrostáticas ou ligação a lipídios ancorados). Proteínas integrais hidrofóbicas têm domínios transmembrana compostos predominantemente por aminoácidos hidrofóbicos — leucina, isoleucina, valina, fenilalanina — muitas vezes organizados em hélices alfa. O problema prático é que isolá-las destrói a estrutura nativa. Detergentes são necessários para solubilizá-las, mas detergentes iônicos como SDS desnaturam. Detergentes não iônicos como DDM (dodecil maltosídeo) ou digitonina preservam melhor a atividade conformacional. A escolha do detergente muda o rendimento e a estabilidade da proteína. Em experiências com canais iônicos, usar o detergente errado pode remover ligantes ou desestabilizar domínios extracelulares importantes para o dobramento correto. Tenho visto muita gente usar BSA (albumina sérica bovina) como bloqueio em protocolos de western blot de proteínas de membrana. BSA contém pequenas quantidades de ácidos graxos livres que competem com domínios hidrofóbicos de proteínas transmembrana pela ligação. Isso gera fundo alto e perda de sinal específico. O workaround que funcionou consistentemente foi trocar por leite em pó desnatado ou usar blockers específicos formulados para proteínas de membrana, como Casein Blocker de algumas linhagens comerciais.
Dominio lipídico e sinalização celular
Lipid rafts foram uma proposta controversa nos anos 1990. Hoje o consenso é que eles existem, mas são transitórios, pequenos (10-200nm) e dinâmicos, não as estruturas estáveis e grandes que alguns artigos iniciais desenharam. A técnica de detecção por fracionamento em gradiente de densidade com detergentes a frio é indireta — você isola frações resistentes a Triton X-100 em temperatura baixa e assume que são rafts. O problema é que o resíduo a frio pode refletir simplesmente dominância de domínios gel, não rafts funcionais. Para mapear interações reais em membranas vivas, técnicas como FRET, FLIP e super-resolução (STED, PALM/STORM) são mais informativas. FRAP (Fluorescence Recovery After Photobleaching) mede difusão lateral de lipídios e proteínas. O tempo de recuperação depende do tamanho da molécula, da viscosidade local e deEventos de restrição por citoesqueleto. Proteínas ancladas por GPI (glicosilfosfatidilinositol) frequentemente co-localizam com marcadores de raft, mas a associação funcional direta ainda é difícil de provar sem dados de perturbação. Um caso real que enfrentei: estávamos analisando a internalização de um receptor acoplado à sinalização de MAP quinase. Inicialmente, os dados de colocalização com marcadores de raft sugeriam que o receptor entrava por via dependente de caveolina. Mas ao tratar as células com metil-beta-ciclodextrina para remover colesterol, a internalização persistiu, apenas com cinética alterada. O receptor na verdade usava uma via mista, parcialmente sensível a raft e parcialmente independente. A interpretação apressada teria levado a um modelo equivocado.
Permeabilidade seletiva e transporte
A bicamada é barreira efetiva para íons e moléculas polares. Moléculas pequenas e apolares — oxigênio, dióxido de carbono, esteroides — difundem-se diretamente. A permeabilidade relativa segue a série: O2 > CO2 > N2 > etanol > ureia > glicose > íons. Canais iônicos e transportadores são específicos. Canais permitem fluxo passivo baseado em gradiente eletroquímico. Transportadores podem ser uniportadores, simportadores ou antiportadores. A bomba Na+/K+ ATPase é o exemplo clássico: consome ATP, exporta três Na+ e importa dois K+, mantendo o potencial de membrana em células animais. Sem essa bomba, o gradiente que sustenta transporte secundário de glicose, aminoácidos e outros solutos desmorona em minutos. Em preparo de membrana para estudo enzimático, a atividade da Na+/K+ ATPase como marcador de pureza é padrão. Se seu isolamento contém contaminantes mitocondriais, você detecta atividade de citocromo c oxidase. Se contém lisossomos, a fosfatase ácida aparece. Apurar até ter uma preparação rica em membrana plasmática exige sucrose em gradiente isópaco, geralmente 0,25-0,8M, com centrifugação a 30-100 mil g por 30-60 minutos. O rendimento cai com cada passo de purificação, mas a especificidade melhora.
Modificações pós-traducionais e âncoras lipídicas
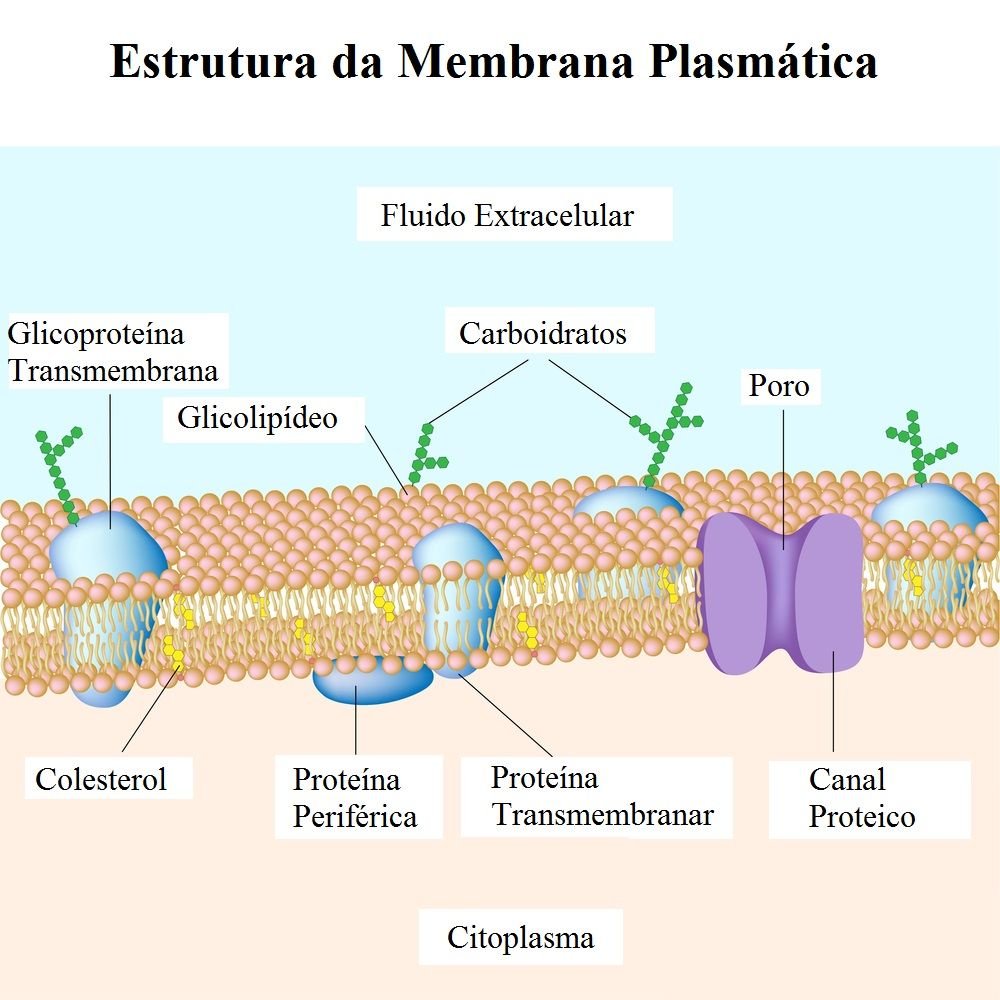
Nem toda proteína de membrana atravessa a bicamada. Algumas são ancoradas por lipídios. A prenilação (geraniGERanieryl ou farnesil) adiciona grupos isoprenoides a cisteínas no motivo CAAX no termino C-terminal. A miristoilação addiciona ácido mirístico a glicina N-terminal. A palmitoilação adiciona ácido palmítico a cisteínas internas. Essas modificações são reversíveis no caso da palmitoilação, regulada por palmitoiltransferases e tioesterases, e permitem ciclagem entre membrana e citoplasma. GPI anchors são estruturas complexas fixadas ao C-terminal de proteínas secretadas. Elas contêm fosfatidilinositol, etanolamina fosfato, manose e um núcleo glicídico. A ancoragem GPI direciona proteínas para domínios de raft e influencia processos como sinalização, reconhecimento celular e patogenia de protozoários. A via de adição é cotraducional, no lúmen do retículo endoplasmático rugoso.
Pontos cegos e onde o modelo falha
O modelo do mosaico fluido funciona para a maioria das descrições didáticas. Ele falha em três situações principais que valem a pena saber: Primeiro, a bicamada pura de fosfolípidos sintéticos não reproduz a complexidade de uma membrana biológica real. A presença de colesterol, esfingolipídios, glicolipídios e proteínas em proporções específicas cria propriedades emergentes que sistemas reconstituídos simples não capturam. Se você está fazendo experimentos com lipossomas para testar interações com peptídeos antimicrobianos, resultados em DPPC puro podem não traduzir para membranas celulares. Segundo, a membrana não é homogênea lateralmente. O citoesqueleto de actina submembranar restringe o movimento de proteínas transmembrana através de "corraling". Domínios de exclusão criados por proteína-ina e interações com a matriz extracelular geram microdomínios funcionais que o modelo clássico não prevê.
Terceiro, a curvatura da membrana não é neutra. Superfícies altamente curvadas, como em endossomos tardios ou microvilosidades, exigem lipídios de formato cônico (PE, PA, cardiolipina) que preenchem espaço na face interna da curvatura. Lipídios cilíndricos como PC tendem a se afastar desses domínios. Em estudos de morfologia celular, ignorar a geometria lipídica leva a interpretações erradas sobre composição de membrana em organelas específicas.

Como abordar o tema com rigor
Se você está começando em biologia celular, o caminho mais produtivo é dominar a estrutura básica — bicamada assimétrica, fluidez, tipos de proteínas — e então avançar para técnicas experimentais que testam essas propriedades. Saber diferenciar um lipid raft de um domínio gel por fracionamento em detergente, interpretar dados de FRAP corretamente e escolher o detergente certo para solubilização de proteínas transmembrana são habilidades que separam quem decora de quem opera. Para referências, o capítulo sobre membranas do Alberts, Molecular Biology of the Cell, ainda é a base. Para detalhes sobre assimetria lipídica e scramblases, o trabalho de Zachara e colaboradores em Blood é direto. Para técnicas de isolamento de membrana plasmática, o protocolo de Widnell e Tapiola em Methods in Enzymology é confiável. Para aspectos físicos e fluidez, artigos de Mouritsen e Bloom nos anos 1980-90 oferecem a fundamentação termodinâmica que muitos cursos básicos pulam. A membrana plasmática é muito mais que uma bicamada. É um sistema dinâmico, organizado, com camadas de regulação que se revelam sob exame. Entender a estrutura é o primeiro passo. Entender como ela se comporta sob perturbação, como as proteínas se inserem e como os domínios lipídicos se organizam lateralmente é o que transforma conhecimento em capacidade prática.
Galeria
-

Constituição da Membrana Plasmática 🧬🌱 | Mapa mental membrana celular ... -
Estrutura da membrana plasmática | Nuepe UFPR
