As Proteínas São Constantemente Sintetizadas E Degradadas

O equilíbrio proteico dentro da célula
Quando você estuda biologia celular, aprende que as proteínas são constantemente sintetizadas e degradadas. Isso se chama turnover proteico. A coisa mais importante que aprendi na prática foi que esse processo não é uma linha de montagem previsível. É extremamente dinâmico e desordenado, e a célula gasta uma quantidade absurda de energia mantendo esse equilíbrio. Cada proteína tem uma meia-vida diferente. Algumas duram minutos. Outras duram dias. Histonas, por exemplo, são extremamente estáveis. Enzimas regulatórias como a ciclina B podem ter meia-vida de apenas 20 a 30 minutos. Isso não é aleatório. A meia-vida de cada proteína é determinada por uma combinação de sequência de aminoácidos no N-terminal, marcações pós-traducionais e interações com outras proteínas.
as proteínas são constantemente sintetizadas e degradadas: como funciona na prática
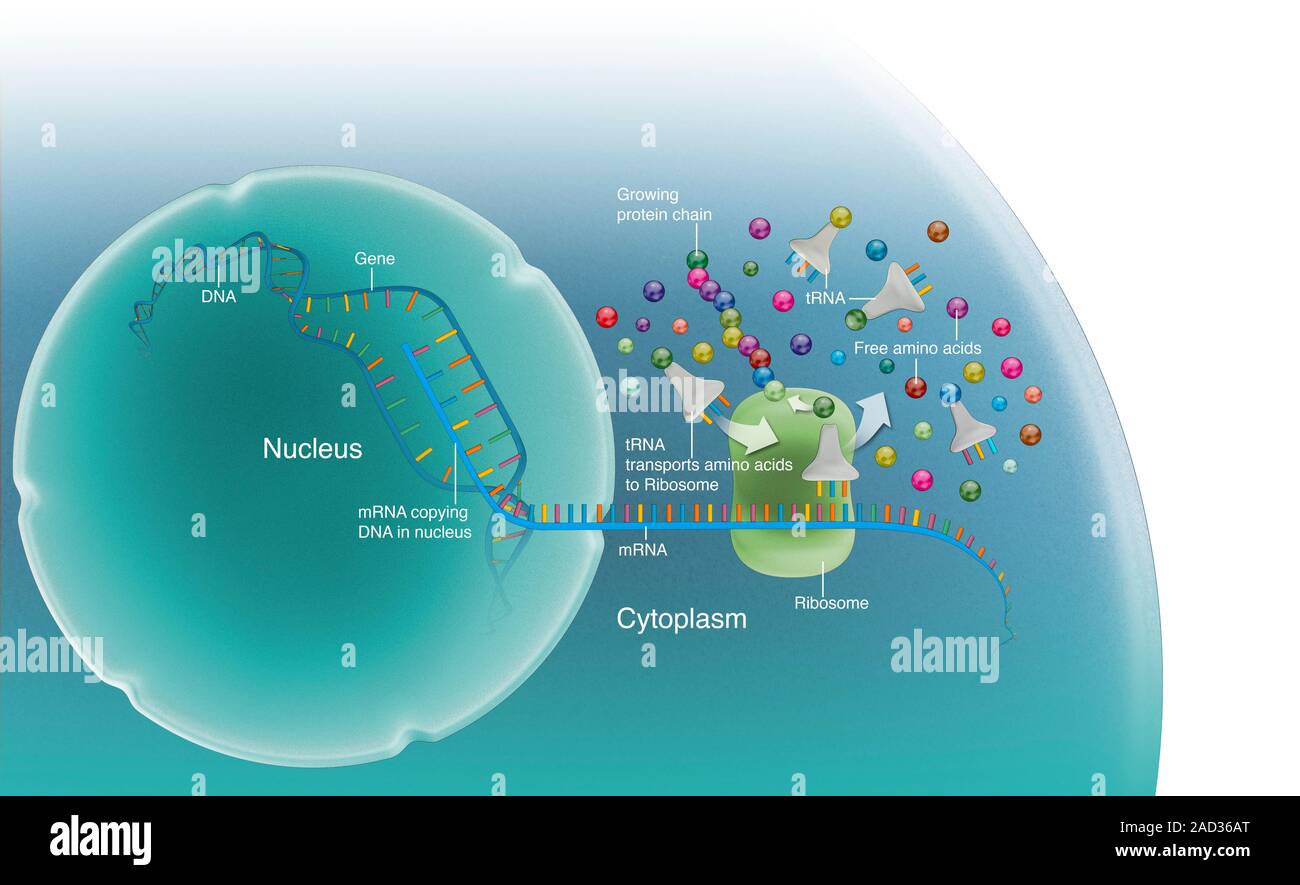
A síntese ocorre nos ribossomos. Tradução. Você já deve saber disso. O que as pessoas costumam perder de vista é que a maior parte da regulação não acontece no nível da tradução em si, mas sim no controle de qual mRNA está disponível e quão eficiente é o ribossomo em traduzi-lo. Sinalização via mTOR é um dos principais reguladores disso. Quando a célula está em condições nutricionais favoráveis, a tradução global aumenta. Quando há estresse ou privação de nutrientes, a tradução é drasticamente reduzida. A degradação acontece principalmente por dois caminhos. O sistema ubiquitina-proteassoma, que trata proteínas individuais marcadas com ubiquitina. E a autofagia lisossomal, que lida com proteínas agregadas, organelas inteiras e segmentos de citoplasma de forma mais não seletiva. Ambos são necessários. Eles não se sobrepõem da forma que muitos manuais sugerem. Se você bloquear o proteassoma com um inibidor como o bortezomibe, as proteínas ubiquitinadas se acumulam e a célula entra em estresse do retículo endoplasmático. Bloquear a autofagia com cloroquina ou 3-MA também causa acúmulo de proteínas danificadas. Os dois sistemas trabalham de forma complementar, não redundante. Eu trabalhei com culturas de células HeLa estudando a estabilização de proteínas sob estresse oxidativo. O problema que eu enfrentei foi que os protocolos padrão de inhibition de proteassoma com MG132 causavam toxicidade celular significativa em menos de 4 horas, o que distorcia completamente os dados de meia-vida. A solução que funcionou foi usar concentrações subletais de MG132 (5 micromolar em vez do padrão de 10-20) e agregar os dados em janelas de tempo mais curtas, de 30 minutos a 2 horas. Além disso, confirmei os resultados usando um método alternativo baseado em pulso de leucina marcada com aminoácidos derivados de deutério, que mede a síntese diretamente em vez de inferir a partir do bloqueio da degradação. As duas abordagens davam resultados compatíveis, mas os números de meia-vida eram consistentemente 15 a 20% menores pelo método de pulso-isotópico. Isso importa quando você está publicando ou tomando decisões baseadas nesses dados.
Detalhes que os livros não mostram
Um erro comum é achar que degradação proteica é um processo passivo de "lixeira celular". Não é. É altamente regulado e seletivo. O sistema de reconhecimento depende de motivos específicos na sequência da proteína ou de marcas covalentes adicionadas por enzimas E1, E2 e E3 ligases de ubiquitina. Existem milhares de E3 ligases diferentes no organismo humano, cada uma reconhecendo subconjuntos específicos de substratos. A Skp2, por exemplo, reconhece ciclinas e outros reguladores do ciclo celular. A MDM2 reconhece p53. Sem essas E3 ligases específicas, a degradação simplesmente não aconteceria, mesmo que o proteassoma estivesse funcional. A degradação via proteassoma requer o reconhecimento de uma cadeia de ubiquitina com pelo menos quatro resíduos de ubiquitina ligados via lisina 48. Ligações via outras lisinas (K63, por exemplo) têm funções completamente diferentes, envolvidas em sinalização e reparo de DNA, não em degradação. Esse é um detalhe técnico importante que muitas vezes passa despercebido. Outro ponto negligenciado: a eficiência do proteassoma diminui com a idade. Em células envelhecidas, a expressão de subunidades do proteassoma cai e a capacidade de degradação de proteínas mal enoveladas é comprometida. Isso contribui para o acúmulo de agregados proteicos observado em doenças neurodegenerativas como Alzheimer e Parkinson. A autofagia também tem eficiência reduzida nesse contexto, criando um ciclo vicioso de dano proteico acumulado.

Limitações e o que não funciona
Se você está tentando medir taxas de turnover proteico, saiba que nenhum método é perfeito. O método de bloqueio de síntese com cycloheximida, ainda amplamente usado, tem um problema significativo: cycloheximide para a tradução, mas isso desencadeia uma resposta celular de estresse que altera a expressão de genes relacionados à degradação e autofagia em poucas horas. Ou seja, você está medindo um estado perturbado, não o estado basal. Métodos baseados em labelamento metabólico com aminoácidos pesados (SILAC, AHA, HDP) são mais precisos, mas exigem equipamento de espectrometria de massa e análise de dados muito mais complexa. O uso de inibidores de proteassoma para estudar acumulação de substratos também tem armadilhas. MG132 e similares inibem o proteassoma 20S e 26S, mas também têm efeitos off-target em outras metaloproteinases e em enzimas que contêm zinco. Bortezomibe é mais específico, mas custa uma fortuna e tem toxicidade significativa em cultura celular. Para estudos de autofagia, os marcadores mais comuns (LC3-II, p62/SQSTM1) são indiretos. O aumento de LC3-II pode significar aumento de autofagia, mas também pode significar bloqueio da fusão autofagossomal com o lisossomo. O acúmulo de p62 confirma que há algum bloqueio navia autofágica, mas não diz onde exatamente. Para confirmar fluxo autofágico de verdade, você precisa de ensaios funcionais como fusion de autofagossomos com lisossomos marcados, ou degradação de proteínas de referência de longa meia-vida em presença e ausência de inibidores lisossomais como bafilomicina A1 ou E64d.
Aplicações práticas
Entender o turnover proteico é essencial em várias áreas. Na oncologia, muitos tratamentos targettam vias de degradação. Inibidores de proteassoma são usados no tratamento de mieloma múltiplo. Moduladores da via ubiquitina-proteassoma estão sendo investigados para cânceres com dependência de E3 ligases específicas. Na doença de Alzheimer, drogas que potencializam a autofagia estão em fases iniciais de ensaio clínico. Em pesquisa básica, o conhecimento de meia-vida proteica é crítico para planejar experimentos. Se você está fazendo um Western blot e a proteína de interesse tem meia-vida de 30 minutos, tratar células com um inibidor por 6 horas vai dar um resultado completamente diferente do que tratar por 2 horas. O timing experimenta não é um detalhe. É o fator que separa dados confiáveis de artefatos. Protocolos padrão de lise celular também merecem atenção. Inibidores de protease e fosfatase devem sempre ser adicionados ao buffer de lise. Sem eles, proteases endógenas degradam suas proteínas de interesse durante o preparo da amostra, especialmente se você estiver isolando proteínas para análise de modificações pós-traducionais. Eu já vi laboratórios inteiros perderem semanas de trabalho porque alguém esqueceu de adicionar PMSF ao buffer. Parece óbvio, mas acontece frequentemente.
O campo de degradação seletiva de proteínas (PROTACs e moléculas bifuncionais) emerge como uma área interessante. Em vez de inibir uma proteína, você marca uma proteína específica para degradação usando o próprio sistema ubiquitina-proteassoma da célula. Isso tem vantagens terapêuticas importantes, especialmente para alvos considerados "undruggable" por abordagens tradicionais de inibição enzimática. A técnica ainda é limitada pela farmacocinética e pela entrega intracelular desses compostos, mas o princípio é sólido e vários candidatos já entraram em ensaios clínicos. O que mais vejo sendo negligenciado é a integração entre síntese e degradação. Elas não são processos independentes. A via mTOR, por exemplo, regula tanto a tradução quanto a autofagia. A via NF-kB controla a expressão de genes envolvidos na resposta a proteínas mal enoveladas e na ubiquitinação. Uma proteína pode ser estabilizada não porque sua degradação está diminuída, mas porque sua síntese está aumentada, e vice-versa. Medir apenas um dos lados dá uma imagem incompleta. O ideal, quando possível, é quantificar tanto a taxa de síntese quanto a de degradação para obter uma visão precisa do turnover.
Galeria
-

As Proteinas Sao Constantemente Sintetizadas E Degradadas - RETOEDU -

As Proteinas Sao Constantemente Sintetizadas E Degradadas Permitindo ... -
As Proteinas Sao Constantemente Sintetizadas E Degradadas Permitindo ...
