Bacteria E Suas Estruturas

o que você precisa saber sobre bactérias antes de abrir o microscópio
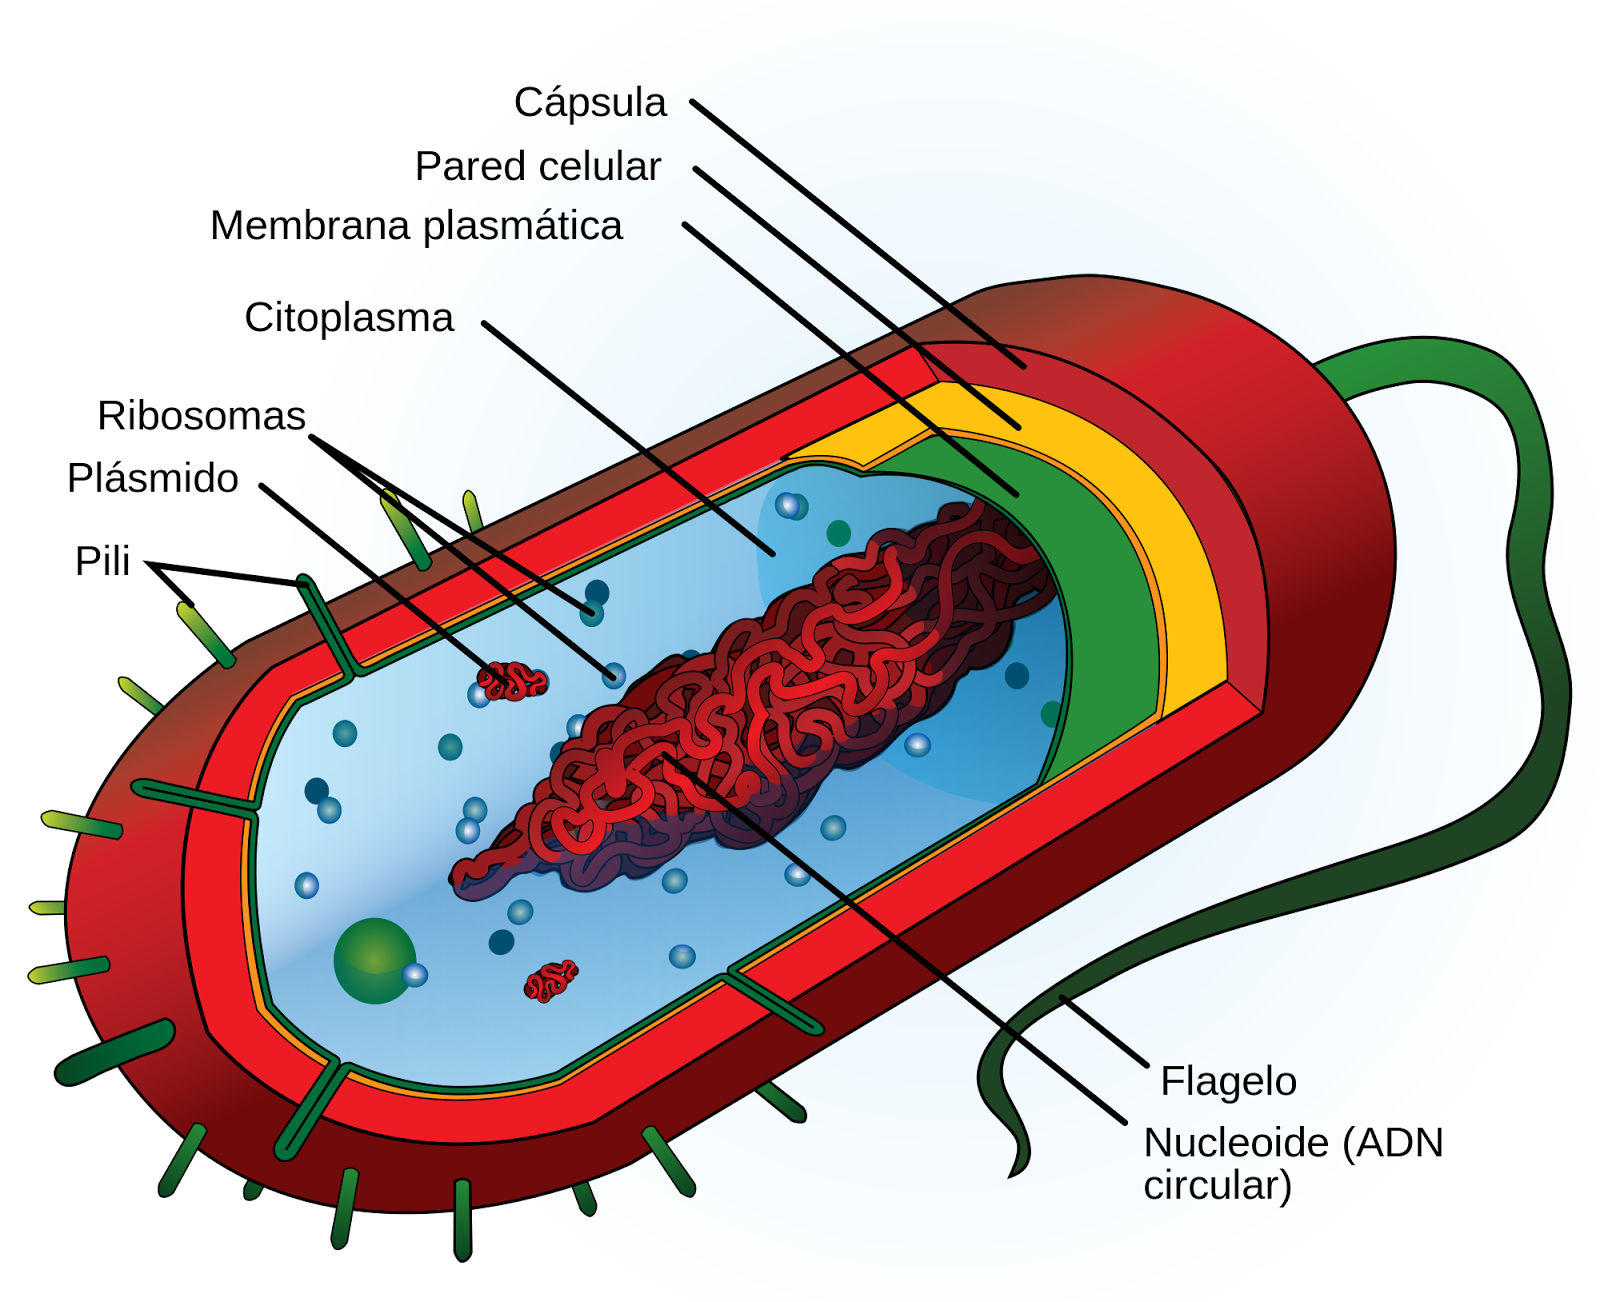
Vou direto ao ponto porque a maioria dos tutoriais sobre bacteria e suas estruturas começa com introduções infladas que não ajudam ninguém na prática. A estrutura bacteriana é mais simples do que parece, mas tem detalhes que fazem diferença real quando você está olhando uma lâmina às 23h tentando entender por que a coloração não ficou certa. As bactérias são organismos procariotos unicelulares. Isso significa que elas não têm núcleo organizado — o DNA fica solto no citoplasma num region chamado nucleóide. Fora isso, elas têm ribossomos, membrana plasmática, citoplasma e, na maioria dos casos, uma parede celular. Essas são as estruturas básicas que todo mundo ensina. O problema é que os livros esquecem de explicar como essas estruturas se relacionam na prática laboratorial.
bacteria e suas estruturas na prática do laboratório
Quando eu comecei a trabalhar com microbiologia, minha maior dor era entender por que algumas bactérias não captavam o corante corretamente na coloração de Gram. A resposta estava diretamente relacionada à estrutura da parede celular. Bactérias Gram-positivas têm uma camada espessa de peptidoglicano — cerca de 20 a 80 nanômetros — que retém o cristal violeta. Bactérias Gram-negativas têm uma camada fina de peptidoglicano, entre 2 e 7 nanômetros, e ainda por cima possuem uma membrana externa com lipopolissacarídeos que bloqueia o corante. Eu passei semanas frustrado porque meus esfregaços ficavam sempre com resultados ambíguos. O problema era que eu estava usando células em fase estacionária de crescimento, onde a parede celular já estava degradada parcialmente. O workaround foi simples: trabalhar apenas com culturas em fase exponencial, entre 18 e 24 horas de crescimento. Isso garante que a integridade da parede celular esteja preservada e a coloração seja confiável. Se você tiver problemas com coloração irregular, verifique a idade da cultura antes de culpar o protocolo. A parede celular em si é feita de peptidoglicano, também chamado de mureína. É uma rede de cadeias de N-acetilglicosamina e N-acetilmurâmico cruzadas por pentapeptídeos. As penicilinas e antibióticos beta-lactâmicos atuam exatamente nesse ponto — eles inibem as enzimas transpeptidases que fazem o cruzamento. Sem o cruzamento, a parede não consegue sustentarse. Isso é por que bactérias em crescimento ativo são mais sensíveis a esses antibióticos do que bactérias em fase estacionária, onde a síntese de peptidoglicano está quase parada.
Outra estrutura que todo mundo subestima é a cápsula bacteriana. Ela não é vista na coloração de Gram comum porque a maioria dos corantes não penetra o material capsular. Para visualizar, você precisa de coloração negativa com nigrosina ou caracol Fuchsin. Eu já perdi tempo achando que uma estirpe era nãoencapsulada até descobrir que o meio de cultivo estava com concentração de açúcar errada — a cápsula só é produzida em meios com fonte de carbono adequada, como sacarose a 5%.

as estruturas flagelares e a importância prática
Flagelos são estruturas de locomoção. Eles não são exclusivos das bactérias, mas nas procarióticas têm uma arquitetura completamente diferente dos flagelos eucarióticos. O flagelo bacteriano é composto por três partes: o corpo basal, que funciona como um motor rotativo; o gancho, que faz a conexão; e a filamentosa, que é a "hélice" visível. O motor basal gira a até 1500 RPM em condições ideais, impulsionado por um gradiente de prótons (ou às vezes íons sódio) através da membrana. Esse detalhe é importante porque alguns antibióticos e compostos que dissipam o potencial de membrana param o movimento flagelar sem matar a bactéria. Em testes de motilidade em meio semi-sólido, se o meio estiver com concentração de agar acima de 0,4%, mesmo bactérias motéis não conseguem se espalhar. Já vi relatórios errados por causa disso — o pesquisador usou 1% de agar e concluiu que a estirpe era não-móvel. A disposição dos flagelos também varia. Há bactérias com um único flagelo polar (monotríquio), duas hastes polares (amfítriquo), um tufo em uma extremidade (lofótriquo), um tufo em ambas as extremidades (sinfítriquo), ou flagelos distribuídos por toda a superfície (peritríquio). A classificação por arranjo flagelar é usada em taxonomia bacteriana há décadas, então fazer uma lâmina de flagelação — mesmo que antiga — ainda tem valor identificativo.
fímbrias e pili: estruturas de adesão e transferência genética
Muitos estudantes confundem fímbrias com pili. Tecnicamente, fímbrias são estruturas mais curtas e mais numerosas, responsáveis pela adesão a superfícies. Pili (ou pilosidade sexual) são mais longos, menos numerosos, e estão envolvidos na conjugação bacteriana — a transferência de plasmídeos de uma bactéria para outra. Um exemplo clínico relevante: a Escherichia coli uropatogênica usa fímbrias tipo P para aderir aos epitélios do trato urinário. Sem essas fímbrias, ela não consegue colonizar e é eliminada pelação urinária. Por isso, a capacidade de aderência é tão importante quanto a capacidade de causar dano tecidual. Em estudos de adesão in vitro, bloquear as fímbrias com anticorpos específicos reduz a adesão em mais de 90%, o que comprova seu papel central. Já os pili de conjugação são a via de transmissão de resistência a antibióticos. Um plasmídeo de resistência pode passar de uma bactéria para outra em questão de minutos. Isso é uma das razões pelas quais a resistência bacteriana se espalha tão rápido em ambientes hospitalares. Não é transformação, transdução ou seleção natural lenta — é conjugação ativa, mediada por pili.
a membrana externa das Gram-negativas
A membrana externa é uma característica marcante das bactérias Gram-negativas e é um dos principais alvos de pesquisa para novos antibióticos. Ela contém proteínas canaladoras chamadas porinas, que permitem a passagem de moléculas pequenas até cerca de 600 Daltons. Moléculas maiores precisam de transportadores específicos. Isso cria uma barreira seletiva importante. Antibióticos como a vancomicina — que tem peso molecular de aproximadamente 1449 Daltons — não conseguem atravessar a membrana externa de Gram-negativos. Por isso, a vancomicina é eficaz apenas contra Gram-positivos. Esse é um limite fundamental que define o espectro de ação do antibiótico. Se você tentar tratar uma infecção por Pseudomonas aeruginosa com vancomicina, vai falhar não por resistência, mas por limitação estrutural pura. Os lipopolissacarídeos (LPS) na face externa da membrana incluem o Lipídio A, que é o endotoxina bacteriana. Quando bactérias Gram-negativas morrem e lisam, o Lipídio A é liberado e desencadeia uma resposta imune exagerada. Em casos graves, isso leva a choque séptico. O corpo libera citocinas inflamatórias em grande quantidade, causando vasodilatação, queda de pressão arterial e, potencialmente, morte. Esse é o mecanismo pelo qual infecções por E. coli, Klebsiella e Neisseria podem ser fatais — não é tanto a invasão bacteriana em si, mas a reação do hospedeiro ao LPS.

esporos bacterianos: resistência extrema
Alguns gêneros bacterianos, principalmente Bacillus e Clostridium, formam esporos quando as condições ambientais se tornam desfavoráveis. O esporo é uma estrutura de resistência, não de reprodução. Uma única célula bacteriana produz um esporo, e quando as condições melhoram, o esporo germina produzindo uma nova célula vegetativa. O esporo possui múltiplas camadas protetoras: a exospora, a parede do esporo, o córtex de peptidoglicano (que é menos cross-linked do que o da célula vegetativa), a membrana interna do esporo e o core, onde o DNA e os ribossomos ficam em estado de dormência metabólica. O core tem baixo teor de água e alto conteúdo de ácido dipicolínico de cálcio, que estabiliza o DNA contra calor e radiação UV. Na prática, esporos são incrivelmente resistentes. Eles sobrevivem a autoclavagem inadequada — se o ciclo não atingir 121°C por pelo menos 15 minutos em pressão de 1 atm, esporos de Bacillus podem sobreviver. Já vi laboratórios que usavam 10 minutos de autoclavagem e depois encontravam contaminação por Bacillus em meios de cultura preparados semanas antes. A solução foi aumentar o tempo para 20 minutos e validar com indicadores biológicos contendo esporos de Geobacillus stearothermophilus.
ParaClostridium botulinum eClostridium tetani, os esporos são a forma de sobrevivência no solo e em feridas profundas. A esterilização de equipamentos médicos que entram em contato com tecidos estéreis deve obrigatoriamente eliminar esporos. Esse é o conceito de F0 — o tempo necessário a 121°C para reduzir a população microbiana em seis ordens de grandeza. Materiais que não suportam autoclavagem usam óxido de etileno ou plasma de peróxido de hidrogênio, que penetram em embalagens seladas e alcançam esporos em câmaras fechadas.
inclusions citoplasmáticas e sua relevância
Além das estruturas mencionadas, bactérias podem armazenar nutrientes em inclusões citoplasmáticas. Grânulos de politetafosfato (chamados de corpúsculos metacromáticos) são comuns em Corynebacterium diphtheriae e servem como reserva de fósforo e energia. Corpúsculos de polifosfato podem ser visualizados com coloração de Neisser, que os torna visíveis como grânulos escuros no extremo das células — padrão usado historicamente na identificação de C. diphtheriae. Grânulos de glicogênio e amido são reservas de carbono. Granulos de polihidroxialcanoatos (PHA) funcionam como reserva de energia e carbono em várias bactérias ambientais. Em condições de excesso de carbono e limitação de nitrogênio, algumas bactérias acumulam PHA até 80% do peso seco. Esse conhecimento é explorado industrialmente para produção de bioplásticos — o Polybacterium hydroxaunicus é um dos produtores comerciais. Vacúolos gasosos, encontrados em cianobactérias e em algumas bactérias aquáticas, controlam a flotabilidade. Isso permite que as células se posicionem na coluna d'água para otimizar a captação de luz. Sem os vacúolos gasosos, muitas cianobactérias afundariam e morreriam por falta de luz para a fotossíntese.

o que NÃO aparece nos livros didáticos
Uma coisa que raramente é discutida em detalhes introdutórios é a variação morfológica dentro de uma mesma espécie. Bactérias não têm formato fixo — elas respondem às condições ambientais. Em meio com baixa concentração de nutrientes, muitos bastonetes ficam mais curtos e arredondados. Em meio hipertônico, podem ocorrer formas estreladas ou filamentosas. Isso é chamado de pleomorfismo e é especialmente pronunciado em Mycoplasma, que não possui parede celular e assume formas variáveis conforme a tonicidade do meio. Outro ponto negligenciado: a relação entre tamanho celular e taxa de crescimento. Bactérias em crescimento rápido têm volume celular maior e mais ribossomos por célula. Bactérias oligotróficas — aquelas adaptadas a ambientes com poucos nutrientes — são tipicamente menores, com alta razão superfície/volume, o que maximiza a eficiência de captação de nutrientes. Se você comparar E. coli em meio rico (Luria-Bertani) com E. coli em meio mínimo, a diferença de tamanho pode chegar a três vezes em comprimento. A presença de plasmídeos também varia enormemente entre células da mesma estirpe. Um plasmíde de resistência a antibióticos confere vantagem seletiva na presença do antibiótico, mas impõe um custo metabólico na ausência dele. Células que perdem o plasmíde crescem mais rápido. Por isso, em cultura sem pressão seletiva, a população de plasmideo perde rapidamente — em cerca de 50 gerações, menos de 1% das células mantém o plasmíde se não houver antibiótico no meio.
considerações finais sobre técnicas de visualização
Para observar as estruturas bacterianas, a microscopia óptica convencional com aumento de 1000x (imersion em óleo) é suficiente para visualizar forma geral, arrajamento celular e esporos. Flagelos exigem coloração especial de flagelação com lugol ou corantes como prata. Cápsulas exigem coloração negativa. Esporos requerem coloração de Schaeffer-Fulton com malachite green sob aquecimento. Para detalhes ultraestruturais — como a membrana externa, o periplasma, ou a arquitetura do flagelo — é necessário microscopia eletrônica de transmissão. Amostras para ME deve passar por fixação com glutaraldeído a 2,5% e pós-fixação com osmio, seguida de desidratação em gradiente de etanol e inclusão em resina epóxi. Seções de 70 a 90 nanômetros são cortadas com ultramicrótomo e contrastadas com citrato de chumbo e uranilo. O custo de preparo de amostra para ME é alto e o tempo total pode variar de 2 a 3 dias. Para uso rotineiro em diagnóstico, a microscopia óptica com coloração de Gram ainda é o padrão ouro — rápida, barata e informativa para decisões clínicas imediatas. O detalhamento ultraestrutural é reservado para pesquisa ou identificação de espécies com características incomuns.
A compreensão real de bacteria e suas estruturas vem da combinação entre o conhecimento teórico das arquiteturas celulares e a experiência prática de preparos, colorações e interpretações. Nenhum livro substitui o tempo de lâmina na bancada, onde você aprende que a teoria perfeita encontra obstáculos reais todos os dias — desde uma cultura velha até um agente de fixação que envelheceu no estoque.
Galeria
-

Estrutura Geral Da Bactéria. | Ensino De Biologia, Resumo | Livro de ...
