Biologia Crossing Over
O que realmente acontece durante o crossing over
A maior parte dos materiais didáticos trata crossing over como se fosse um processo limpo e previsível. Na prática, não é. O intercâmbio de segmentos entre cromátides homólogas durante a meiose I é um evento probabilístico que depende de fatores físicos e bioquímicos difíceis de controlar com precisão. O ponto de quebra e a sequência de recombinantes formados variam de célula para célula. Isso significa que, ao analisar resultados de cruzamentos genéticos, o expected recombination frequency nunca chega a ser exatamente 50% mesmo para genes em locos aparentemente distantes. Quando estudei biologia crossing over de forma mais profunda, percebi que a dificuldade real não está em decorar as fases. Está em entender como a quebra e o reparo do DNA se traduzem em padrões de herança que muitas vezes parecem contradizer mapas genéticos publicados.
Biologia crossing over: do conceito à análise prática
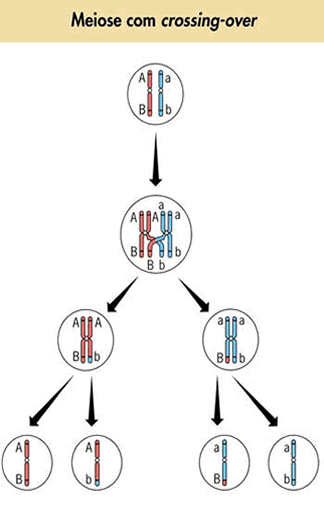
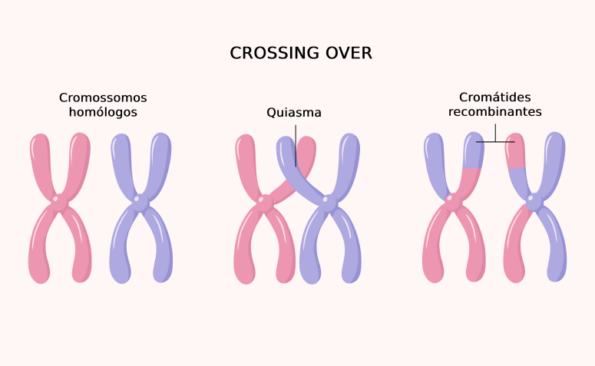
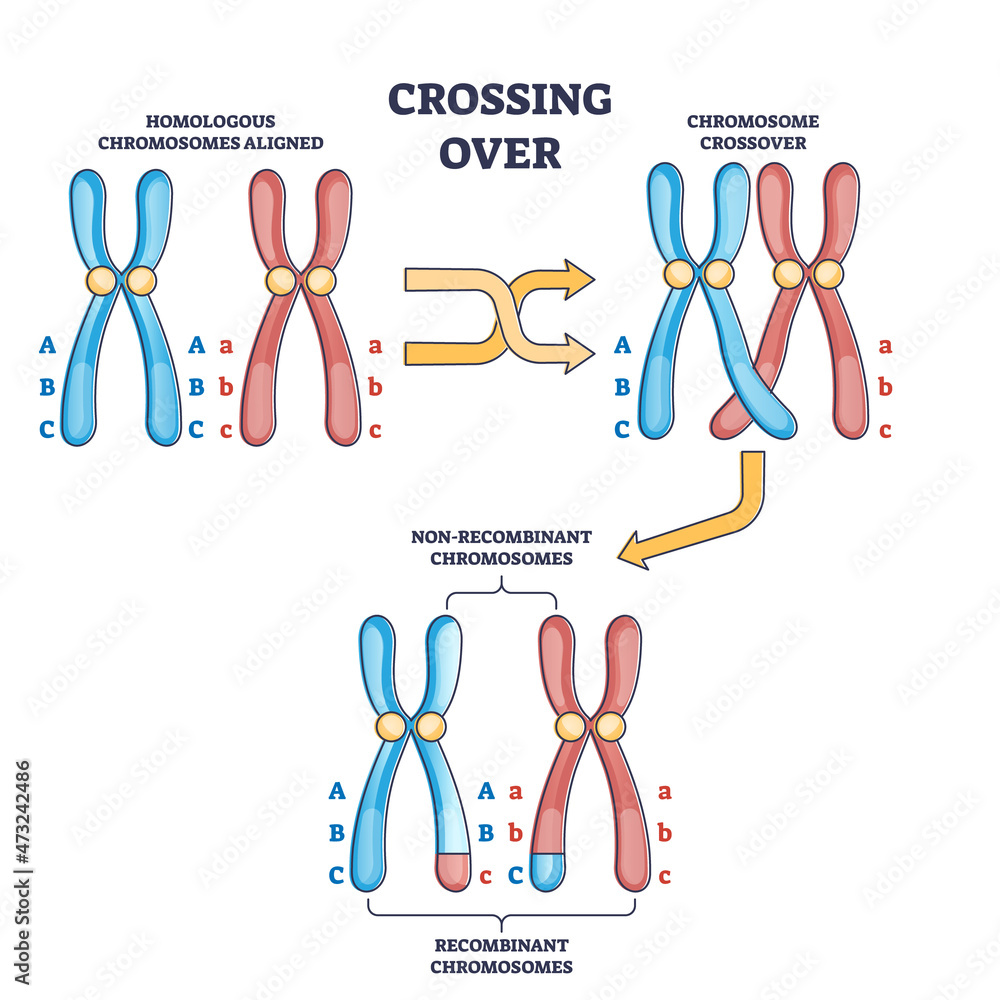
O crossing over ocorre durante a prófase I da meiose, especificamente na etapa de paquitênio. Os cromossomos homólogos já passaram pela sinapse no zigoteno e formam a síndrome. Nesse momento, complexes de recombinação chamados crossroads ou Holliday junctions começam a se formar em locais específicos do DNA. As enzimas envolvidas incluem a Spo11, que promove os cortes de fita dupla, e proteínas de reparo como Rad51 e Dmc1 em leveduras e mamíferos. O resultado final é uma troca de material genético entre cromátides não-irmãs. Isso gera combinação alélica nova nos gametas. Para quem trabalha com mapeamento genético, cada evento de crossing over representa uma chance de recombinação que pode ser medida em centimorgans. Um centimorgan equivale a aproximadamente 1% de chance de recombinação entre dois marcadores. O problema é que essa equivalência não é linear em todo o genoma. Existem hotspots de recombinação e regiões frias onde a taxa cai drasticamente. Em humanos, por exemplo, os cromossomos sexuais têm distribuição muito diferente de hotspots em comparação com os autossomos. Isso é algo que poucos livros didáticos destacam, mas que quebra a lógica de quem tenta fazer mapeamento por recombinação em regiões específicas.
Eu já perdi duas semanas tentando ajustar um mapa genético em Drosophila porque não considerava que certas regiões do braço do cromossomo 2 apresentavam supressão quase total de crossing over em machos. A literatura clássica avisa sobre isso, mas ao lidar com dados reais de cruza-teste, a tendência é confiar cegamente na taxa média reportada. A correção foi simplesmente excluir machos da análise e focar apenas em fêmeas, onde a recombinação ocorre normalmente.
Por que crossing over não segue regras simples
Um equívoco comum é achar que a probabilidade de crossing over entre dois genes é sempre aditiva. Se o gene A está a 10 cM de B, e B está a 10 cM de C, muitos esperariam que A e C estivessem a 20 cM. Isso funciona para distâncias curtas, mas entra em colapso em escalas maiores. O fenômeno de interferência faz com que um evento de crossing over reduza a probabilidade de outro evento próximo. A interferência positiva é a regra, não a exceção. O coeficiente de coincidência mede isso na prática. Se você observa menos duplos recombinantes do que o esperado estatisticamente, a interferência está atuando. Em muitos organismos, o valor de interference varia ao longo do cromossomo e muda conforme a espécie, o sexo e até condições ambientais. Isso é particularmente relevante em programas de melhoramento genético vegetal, onde a previsão de combinações desejadas em F2 depende diretamente de estimativas precisas de recombinação. Outro ponto que passa despercebido é a diferença entre crossing over recíproco e conversão gênica. No crossing over recíproco tradicional, há troca equilibrada de segmentos. Já na conversão gênica, um alelo é convertido para a sequência do homólogo sem troca visível de marcadores flanqueadores. Isso gera proporções mendelianas distorcidas que podem ser confundidas com viés de segregação ou seleção embrionária. Em análises de tetrad em Neurospora, por exemplo, classes de tetrades pós-meiose (4:4, 2:2:2:2, 2:4:2) são a prova direta de que conversão gênica acompanha crossing over com frequência significativa.
Aplicações e limitações no laboratório
Se você está trabalhando com biologia crossing over em contexto acadêmico ou aplicado, saiba que existem armadilhas metodológicas que custam tempo e dinheiro. Cruzamentos para estimar distância entre genes requerem um número amostral robusto. Com menos de mil progenitores, a margem de erro pode ultrapassar 5 cM, o que torna o mapa genético praticamente inútil para mapeamento fino. A técnica de ligadura condicionada por sequências, usada em mapeamento por ligação em culturas agrícolas, depende inteiramente de suposições sobre taxa de recombinação. Se você usa valores de referência de literatura para uma espécie selvagem parente e aplica em uma cultivar domesticada, a estimativa de intervalo de confiança para QTLs pode errar por megabases. O workaround prático é gerar dados de recombinação próprios na sua população, ainda que isso aumente o tempo inicial do projeto em cerca de três a quatro meses. Também é importante reconhecer que crossing over tem limites biológicos claros. Em heterozigosidades por inversões, o crossing over dentro da região invertida gera cromátides com deleções e duplicações. Essas cromátides são geralmente inviáveis. O resultado é uma redução aparente da recombinação observada naquela região, o que pode levar a subestimar a distância real entre marcadores. Se você notar recombinação próxima de zero em uma região que deveria ser rica em eventos, invista em análise citológica para verificar estrutura cromossômica antes de descartar os dados.
O mapeamento por sequencing moderno reduz muito da dependência de cruzamentos clássicos, mas o princípio permanece. Variantes em linkage disequilibrium são interpretadas como proxy para proximidade física, mas o LD também é moldado por história de recombinação, deriva e seleção. Entender crossing over em profundidade continua sendo necessário para não confundir correlação estrutural com ligação funcional.
Dicas úteis para análise
O primeiro passo prático é sempre verificar a qualidade dos dados phenotípicos antes de calcular qualquer taxa de recombinação. Erros de anotação de classe fenotípica são a causa número um de mapas genéticos distorcidos. Quando eu estava começando, um único alelo dominante mal interpretado em milho distorceu toda a ordem esperada de marcadores. A correção exigiu refazer o cruzamento base e confirmar com PCR segmentar cada locus individualmente. Para quem não tem acesso a populações de mapeamento próprias, softwares como JoinMap e R/qtl oferecem rotinas de estimativa de distância com bootstrapping. O tempo de processamento varia conforme o tamanho populacional, mas em datasets de mil indivíduos com duzentos marcadores, uma análise completa roda em alguns minutos em hardware padrão de laboratório. A saída inclui mapa genético, índice de interferência estimado e coeficientes de coincidência por intervalo. Um detalhe que poucas pessoas consideram: a taxa de crossing over pode ser afetada por temperatura e estresse fisiológico. Em Arabidopsis, por exemplo, cultivo acima de 27 graus Celsius aumenta significativamente a frequência de recombinação em vários cromossomos. Se seu protocolo padrão de crescimento não controla temperatura com precisão de meio grau, os dados de recombinação podem ter variância adicional não atribuível a fatores genéticos.
A leitura de literatura atualizada também é essencial. Revisões recentes em Nature Reviews Genetics detalham mecanismos moleculares que vão além do modelo clássico de Holliday. A recombinação mediada por break-induced replication (BIR) e a recombinação dependente de fork de replicação são caminhos alternativos que geram padrões de recombinação diferentes dos esperados pelo crossing over recíproco tradicional. Ignorar esses mecanismos leva a interpretações equivocadas em estudos de diversidade genética e evolução de populações. Se o objetivo for apenas compreender o conceito para prova ou concurso, o essencial é saber que crossing over gera variabilidade genética, ocorre na meiose I, envolve troca de segmentos entre homólogos e sua frequência serve como base para mapas de ligação. Para trabalho de campo ou pesquisa, o conhecimento precisa ser mais granular e sempre validado com dados empíricos.
Galeria
-

Chromosomal crossover, Crossing over chromosomes and homologous ... -

Chromosomal Crossover, Crossing Over Chromosomes And Homologous ... -

Crossing-over: Os cromossomos homólogos trocam um pedaço da “perninha ...
