Bioquímica Básica E Metabolismo
Por que a maioria das pessoas trava na primeira semana de metabolismo
Eu vi isso acontecer em sala de aula dezenas de vezes. O aluno decora o ciclo de Krebs, consegue montar as equações no papel, e na hora de explicar por que a citrato sintase não funciona em pH alcalino, trava completamente. O problema nunca foi a memória. Foi a falta de conexões práticas entre o que está escrito nos livros e o que acontece dentro de uma célula real. Se você está começando agora ou tentando recuperar algo que nunca fixou direito, o caminho mais direto é entender bioquímica básica e metabolismo como um sistema integrado, não como uma lista de reações soltas. Cada enzima responde a condições específicas. Cada via tem um ponto de controle que pode ser ativado ou desligado dependendo do estado energético da célula. Quando você vê isso, o resto começa a fazer sentido sem precisar decoração forçada.
Construindo a base de bioquímica básica e metabolismo
A bioquímica estuda as moléculas que compõem os seres vivos e as transformações que elas sofrem. O metabolismo é o conjunto dessas transformações organizadas em vias. Uma via catabólica quebra moléculas e libera energia. Uma via anabólica consome energia para construir moléculas complexas. Entre esses dois extremos existem vias amebólicos que ligam os dois lados. O conceito central que precisa estar claro desde o início é o de energia livre de Gibbs. Reações espontâneas têm G negativo. Reações que precisam de acoplamento têm G positivo e só ocorrem quando ligadas a uma reação mais exergônica. A ATP é o principal agente de acoplamento, mas não é a única. GTP, UTP, NADH, FADH também fazem esse trabalho em contextos específicos. Enzimas são catalisadores biológicos. Elas diminuem a energia de ativação, não alteram o G da reação. Isso significa que uma enzima acelera o alcance do equilíbrio, mas não muda a direção termodinâmica. Muita gente confunde isso e acredita que uma enzima pode tornar uma reação impossível em algo viável. Não pode. A enzima só torna o processo mais rápido dentro dos limites que a termodinâmica permite.
As vias centrais que você precisa dominar
Glicólise, ciclo de Krebs e cadeia transportadora de elétrons formam o tripé do metabolismo energético. A glicólise converte uma molécula de glicose em duas de piruvato, gerando 2 ATP líquidos e 2 NADH. Ocorre no citosol e não requer oxigênio. O piruvato entra na mitocôndria, é convertido em acetil-CoA pela piruvato desidrogenase, e o acetil-CoA entra no ciclo de Krebs. O ciclo de Krebs por volta produz 3 NADH, 1 FADH e 1 GTP por acetil-CoA. Duas voltas por glicose significam 6 NADH, 2 FADH e 2 GTP. Os elétrons carregados pelo NADH e FADH são transferidos para a cadeia transportadora na membrana interna mitocondrial. O gradiente de prótons formado aciona a ATP sintase, que gera aproximadamente 28 a 32 ATP no total, dependendo do tipo de shuttle utilizado para transportar elétrons do NADH citosólico para dentro da mitocôndria. O número varia porque o malato-aspartato e o glicerol-3-fosfato produzem rendimentos diferentes. O primeiro preserva o poder redutor do NADH, o segundo drena elétrons para o FAD, gerando menos ATP. Células diferentes usam shuttles diferentes. Tecido cardíaco prefere o malato-aspartato. Tecido cerebral também. Músculo esquelético depende muito do glicerol-3-fosfato durante esforço intenso.

Pontos de regulação que explicam tudo
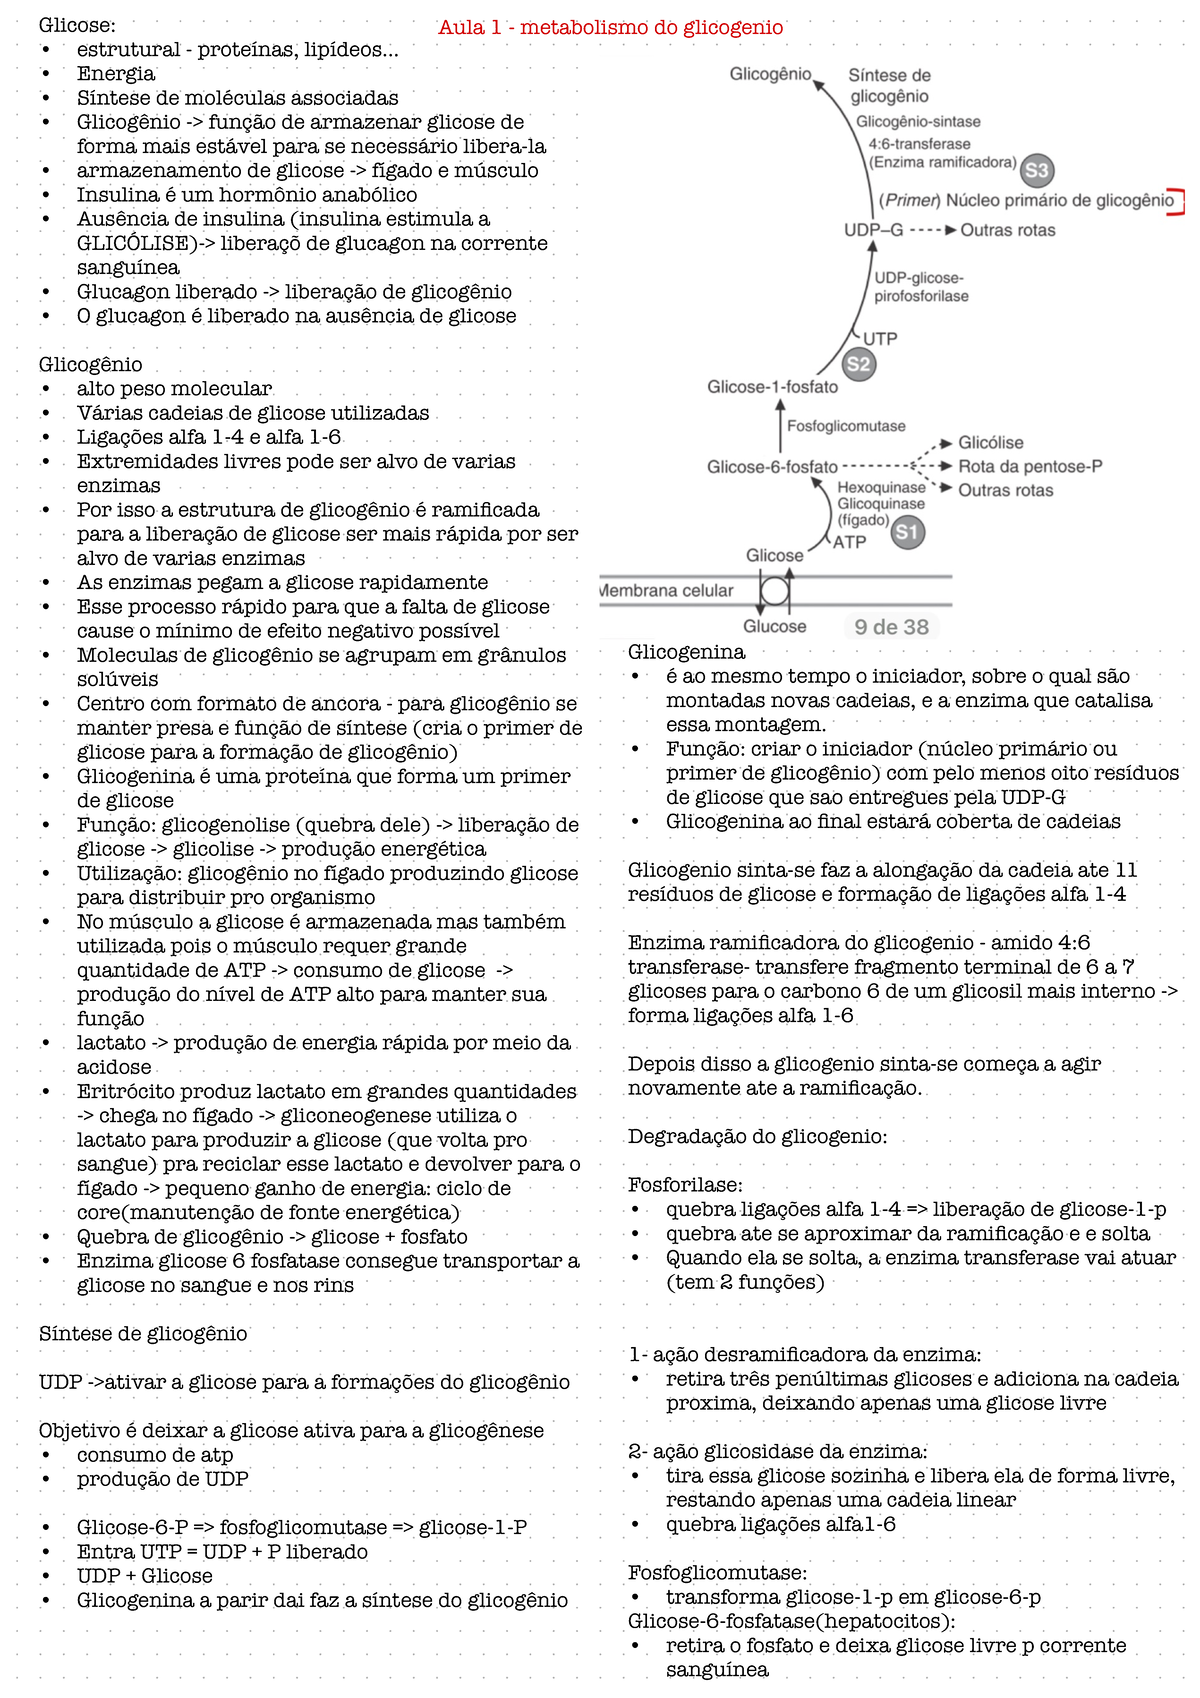
Cada via tem enzimas regulatórias que funcionam como portas. Na glicólise, a fosfofrutocinase-1 é o principal ponto de controle. Ela é inibida por ATP e citrato e ativada por AMP e frutose-2,6-bisfosfato. Quando a célula tem energia suficiente, a PFK-1 desacelera e a glicose não é mais degradada. Quando a energia cai, o AMP aumenta e a enzima se ativa rapidamente. No ciclo de Krebs, a isocitrato desidrogenase e a -cetoglutarato desidrogenase são os pontos-chave. Ambas são inibidas por ATP e NADH. A piruvato desidrogenase também é regulada por fosforilação. A PDK (piruvato desidrogenase quinase) a inativa quando há excesso de energia, e a PDP (piruvato desidrogenase fosfatase) a reativa quando a célula precisa de mais acetil-CoA. A regulação alostérica é o mecanismo mais comum. Ligantes se ligam a sítios diferentes do sítio ativo e mudam a conformação da enzima. Isso é rápido, reversível e não requer síntese de novas proteínas. Regulação covalente, como fosforilação, é um pouco mais lenta mas também importante. Hormônios como insulina e glucagon atuam exatamente por aqui.
O erro que todo estudante cometee e como resolver
Eu perdi semanas tentando memorizar o ciclo de Krebs como uma sequência fixa. Anotava cada passo, repetia, esquecia, repetia de novo. Funcionava mal. A virada veio quando comecei a enxergar o ciclo como um mecanismo de captura de elétrons, não como uma lista de produtos. O ciclo existe basicamente para oxidar acetil-CoA completamente até CO e transferir esos elétrons para carriers Redutores. Tudo o resto é consequência. Outro problema real que encontrei na prática foi com questões que perguntavam o efeito de inibidores específicos. Inibir a_complexo IV da cadeia transportadora parada tudo. Inibir a ATP sintase gera hiperpolarização da membrana mitocondrial e para o fluxo de prótons. Inibir a citrato sintase desacelera o ciclo, mas o efeito imediato é o acúmulo de acetil-CoA e citrato, que por sua vez inibe a PFK-1 na glicólise. Essas conexões em cascata são o que realmente cai em provas e no dia a dia profissional. Quando eu parava de tratar cada via como isolada e começava a mapear os fluxos entre elas, as questões ficavam muito mais simples. Um gráfico de fluxo metabólico vale mais do que dez resumos decorados. Desenhe as conexões. Marque onde cada enzima regulatória está posicionada. Anote os effectores de cada uma. Isso leva cerca de trinta minutos e fixa o conteúdo por meses.
Limitações que ninguém menciona
O modelo padrão de 30 a 32 ATP por glicose é uma estimativa teórica. Na prática, o rendimento real varia entre 26 e 28 ATP devido ao vazamento de prótons pela membrana mitocondrial e ao custo de transporte de metabolitos. Se você usar esse número exato em cálculos quantitativos, pode cometer erros. A literatura recente recomenda trabalhar com valores entre 25 e 27 ATP como mais realistas. Outro ponto cego é a suposição de que todas as células usam as mesmas vias da mesma forma. Células tumorais, por exemplo, realizam glicólise aeróbica intensa mesmo na presença de oxigênio. Isso é o efeito Warburg e muda completamente a expectativa de rendimento energético. Em contextos fisiológicos normais, o modelo padrão funciona. Em patologias, ele falha. A bioquímica também não explica tudo sozinha. Regulação gênica, modificações pós-traducionais, compartimentalização celular e sinalização hormonal interagems com as vias metabólicas de formas que a bioquímica básica não cobre em profundidade. Se você quiser ir além, precisa estudar controle metabólico em nível sistêmico, não apenas enzimático.
Como estudar de verdade
Resumo prático que funciona: entenda a lógica termodinâmica antes de decorar nomes. Estude uma via por vez, mas sempre conectando à próxima. Pratique com questões que peçam previsão de efeitos de inibidores ou mutações. Use diagramas de fluxo em vez de listas lineares. Revise com intervalos espaçados, não com repetição massiva no mesmo dia. Material útil inclui livros como o Lehninger e o Stryer, mas o que realmente faz diferença é a prática ativa. Fazer exercícios de raciocínio metabólico é mais produtivo do que reler capítulos inteiros. O tempo que antes eu gastava relendo agora gaste em resolver casos clínicos ligados ao metabolismo. Lacunas de lactato desidrogenase, deficiência de piruvato quinase, doenças mitocondriais. Cada uma delas ilustra um princípiobioquímico de forma memorável. O metabolismo não é um conjunto de fatos soltos. É uma rede dinâmica com regras claras. Quando essas regras ficam evidentes, o resto se organiza naturalmente. O resto é só aplicação.
Galeria
-

Bioquímica - O que é, biomoléculas, metabolismo, vias metabólicas -

Resúmenes de bioquímica: Metabolismo en toda su extensión -

metabolismo - Bioquímica Humana
