Bomba De Sodio E Potassio Neuronio

Entendendo a bomba de sódio e potássio em neurônios: o que realmente acontece no laboratório
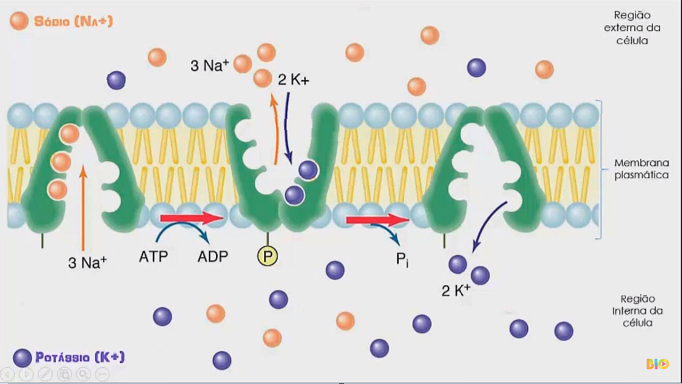
A bomba de sódio e potássio neuronial é uma proteína de membrana presente em praticamente todo neurônio do sistema nervoso. Ela usa ATP para transportar ativamente 3 íons sódio para fora da célula e 2 íons potássio para dentro, contra seus gradientes eletroquímicos. Isso gera e mantém o potencial de repouso da membrana, que em geral fica entre -65 mV e -70 mV na maioria dos neurônios corticais. Muitos materiais didáticos tratam isso como algo simples e linear. Na prática, não é bem assim. A cinética da bomba varia com a concentração extracelular de potássio, com a temperatura, e com o estado metabólico do neurônio. Se você está estudando isso para um experimento ou para entender dados fisiológicos, precisa considerar alguns detalhes que os livros geralmente pular.
bomba de sodio e potassio neuronio
O mecanismo básico segue o modelo de alternância de conformações descrito por Skou e refinado por Post e colegas. A bomba começa voltada para o citoplasma, liga 3 sódios intracelulares, sofre fosforilação pelo ATP, muda para a conformação aberta para o exterior, libera os sódios, liga 2 potássios extracelulares, sofre desfosforilação e volta à conformação original, liberando os potássios no citosol. Cada ciclo consome uma molécula de ATP. O que as pessoas costumam não destacar é que a bomba não é apenas um mecanismo de manutenção passiva. Ela contribui de forma direta e significativa para o potencial de membrana por ser eletrogênica — a cada ciclo, há uma saída líquida de uma carga positiva. Em neurônios com atividade baixa, essa contribuição direta pode representar cerca de 5 a 10 mV do potencial de repouso total. Quando o neurônio dispara muitos potenciais de ação, a contribuição indireta, mantendo os gradientes que permitem a repolarização rápida, torna-se muito mais relevante. Um problema prático que eu enfrentei recentemente envolveu a medida do potencial de repouso em fatias de córtex hipocampal. Os valores que eu esperava encontrar, em torno de -68 mV, estavam oscilando para -55 mV após cerca de 40 minutos de preparação. O primeiro pensamento foi contaminação da solução de perfusão ou erro no microeletrodo. Depois de descartar esses problemas, identifiquei que a concentração de potássio na solução estava subindo gradualmente devido à liberação extracelular de K+ pelos neurônios e pela eficiência limitada da bomba nessas condições deSlice mais grossas. O workaround que funcionou foi reduzir a espessura do corte para 300 micrômetros, aumentar a taxa de perfusão da solução artificial cerebrospinal para 3 ml/min e adicionar 1 mM de probenecida para ajudar na clearance de metabólitos que interferem no transporte. O potencial de repouso estabilizou em -67 mV dentro de 10 minutos e permaneceu assim por pelo menos 2 horas.
Outro detalhe importante diz respeito aos diferentes isoformas da Na+/K+ ATPase. Neurônios expressam principalmente as subunidades alpha-1 e alpha-2, com a alpha-2 sendo mais abundante em células gliais adjacentes. A alpha-1 tem afinidade mais baixa por potássio extracelular do que a alpha-2, o que significa que em condições de hipercalemia leve, como acontece durante atividade sináptica intensa, a bomba nas terminações nervosas pode ser mais afetada do que se espera baseando-se apenas em valores de Km isolados. Isso tem implicações práticas para experimentos que usam altas concentrações de K+ para despolarizar neurônios in vitro. A inibição da bomba com ouabaína é uma ferramenta comum em pesquisas. Concentrações na faixa de 100 microM bloqueiam quase completamente a atividade em minutos, enquanto concentrações na faixa de 1 a 10 microM bloqueiam seletivamente isoformas específicas. O cuidado necessário aqui é que a inibição da bomba não causa apenas despolarização. Ela leva ao acúmulo intracelular de sódio, que por sua vez reduz a eficiência do trocador sódio-cálcio, causando aumento de cálcio intracelular e ativação de vias de morte celular. Em preparações vivas, isso pode levar a danos irreversíveis em 20 a 30 minutos após o bloqueio completo. Se seu objetivo é estudar efeitos agudos da bomba, limite a exposição a 5 a 10 minutos e monitore a viabilidade celular com corantes de exclusão. Em termos de regulação, a bomba é modulada por vários fatores além da concentração de substratos. A insulina aumenta a expressão e atividade da bomba em tecidos periféricos, mas em neurônios a regulação é mais complexa e envolve fatores neurotróficos como o BDNF. A concentração intracelular de magnésio também é relevante porque o ATP necessário para o funcionamento da bomba precisa estar complexado com Mg2+. Situações de deficiência de magnésio podem comprometer a função da bomba mesmo com níveis normais de ATP.

Para quem trabalha com modelagem computacional de neurônios, a bomba de sódio e potássio é frequentemente implementada de forma simplificada como uma corrente constante ou com equações de Michaelis-Menten básicas. Modelos mais realistas, como os usados no NEURON simulation environment, incorporam dependência de Potássio extracelular variável e mecanismos de adaptação da densidade da bomba. Se você está construindo um modelo e os potenciais de ação ficam cada vez mais largos com o tempo de simulação, verifique se a dinâmica da bomba está adequada — isso é um erro comum que leva a resultados fisiologicamente implausíveis. A bomba também é alvo de interesse farmacológico em condições patológicas. Isquemia cerebral leva rapidamente à falha energética, redução de ATP e colapso dos gradientes iônicos. Neurônios que dependem fortemente da bomba para manter a homeostase iônica, como as células de Purkinje no cerebelo, são particularmente vulneráveis. Estratégias neuroprotetoras que visam preservar a função da bomba durante eventos isquêmicos estão em estudo, embora nenhum tratamento clinicamente estabelecido exista ainda nessa área. Se você precisa de referências para acentuar ou revisar o mecanismo molecular, os trabalhos originais de Jens Skou (1957) sobre a descoberta da enzima, seguidos pelas revisões de Glynn e Karlish sobre o mecanismo catalítico, e os estudos mais recentes de Shigekawa e Gong sobre regulação e isoformas, cobrem bem o campo. Para aplicações em neurofisiologia experimental, o manual do NEURON e artigos do grupo de Hille sobre canais iônicos e transportadores oferecem detalhes técnicos úteis.
Galeria
-

Bioquímica: Bomba de sódio/potássio -

Segunda Escola: Como ocorre o funcionamento da bomba de sódio e potássio? -

Bomba de Sódio e Potássio - Análises Clínicas.com -
Poderia me ajudar com a bomba de sódio potássio? não entendi - Explicaê
