Cadeia Respiratória E Fosforilação Oxidativa

Um guia prático para entender o funcionamento real
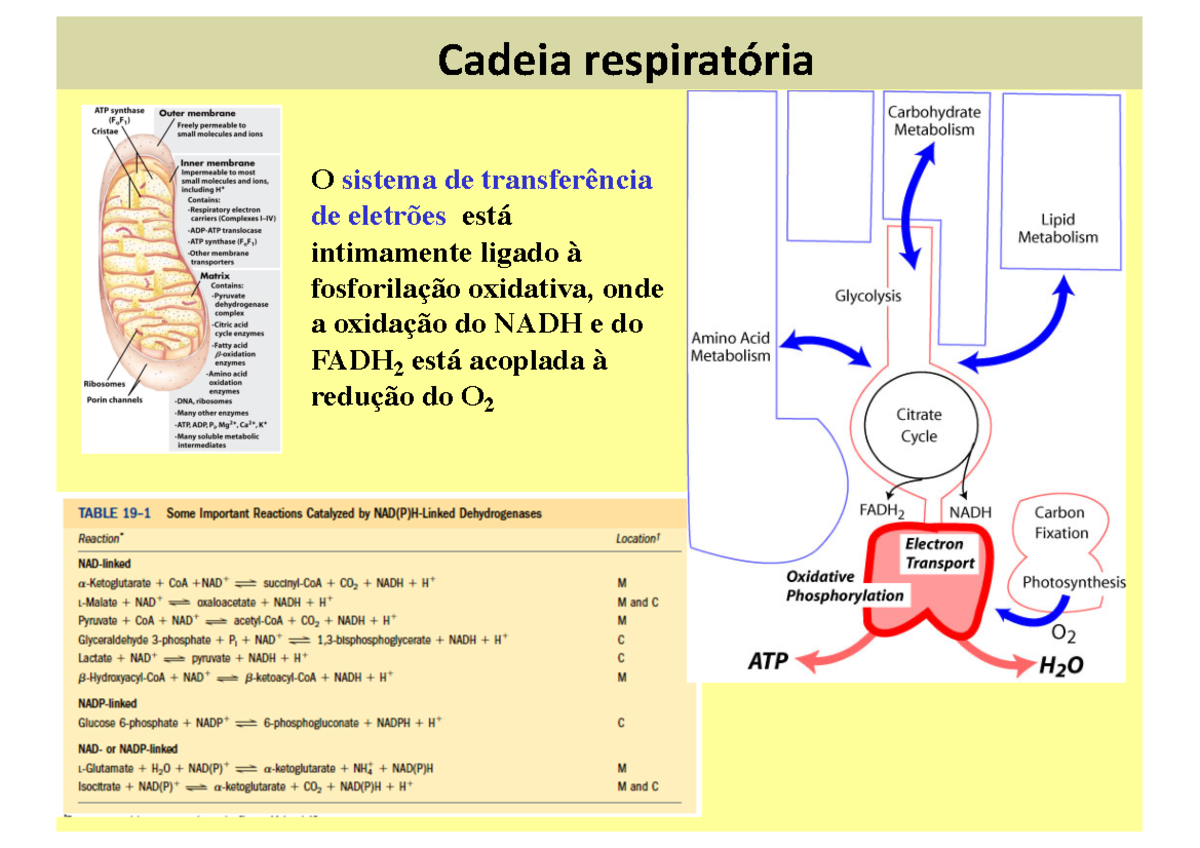
A maioria dos cursos de biologia ensina a cadeia respiratória e a fosforilação oxidativa como se fossem duas coisas separadas, mas elas funcionam como um sistema integrado. Os complexos I a IV estão embutidos na membrana mitocondrial interna, e o que eles fazem é transferir elétrons de doadores como NADH e FADH2 até o oxigênio, gerando um gradiente de prótons que a ATP sintase então usa para produzir ATP. O problema é que a explicação padrão ignora completamente a parte que realmente importa na prática: a permeabilidade da membrana interna, a dissipação de calor e a forma como inibidores específicos quebram o sistema. Quem só decora as etapas não consegue diagnosticar por que uma mitocondria para de produzir ATP mesmo com oxigênio suficiente presente.
cadeia respiratória e fosforilação oxidativa
Vou começar pelo que acontece na prática, não pela definição de livro. Quando você isola mitocôndrias e adiciona succinato como substrato, os elétrons entram pelo Complexo II, que não bombeia prótons — só o Complexo I, III e IV fazem isso. Isso significa que o rendimento de ATP varia drasticamente dependendo de qual doador você usa. NADH via Complexo I gera um gradiente muito mais forte do que FADH2 via Complexo II, porque oComplexo II é um ponto de entrada que pula o primeiro passo de bombeamento. O gradiente de prótons resultante é o que chamamos de força protomotora, composta por dois componentes: oDelta pH (diferença de concentração de H+) e oDelta psi (diferença de potencial elétrico através da membrana). Na maioria das condições fisiológicas, o Delta psi representa cerca de 80% da força protomotora total, com oDelta pH contribuindo com o restante. Ignorar essa proporção leva a erros comuns ao calcular o rendimento teórico de ATP. Eu já perdi tempo tentando reconciliar dados experimentais de consumo de oxigênio com produção de ATP em culturas celulares porque ninguém me avisou sobre uma coisa simples: afosforilação oxidativa tem um rendimento variável dependendo da carga celular. Em células com alta demanda de ATP, a razão P/O se aproxima do valor teórico de 2.5 para NADH e 1.5 para FADH2. Mas quando a célula está em repouso metabólico, a membrana interna começa a "vazar" prótons através de proteínas desacopladoras como a UCP1, e o gradiente se dissipa como calor em vez de gerar ATP. Isso não é um defeito — é um mecanismo regulatório intencional, mas que estraga qualquer cálculo simplório de rendimento energético.
Os inibidores da cadeia respiratória são a ferramenta mais útil para diagnosticar onde o sistema está falhando. O rotenona bloqueia o Complexo I, a antomicina A bloqueia o Complexo III, e o cianeto ou monóxido de carbono bloqueiam o Complexo IV. Se você tratar mitocôndrias isoladas com rotenona e medir o consumo de oxigênio na presença de succinato, o oxigênio continua sendo consumido porque os elétrons entram pelo Complexo II e contornam o bloqueio. Esse é um teste simples que diferencia falhas no Complexo I de falhas em outros pontos da cadeia. O Complexo V, a ATP sintase, é essencialmente uma turbina molecular. Ela permite a passagem de prótons de volta para a matriz, e essa flow de prótons aciona a rotação do seu subúnilo gamma, que alterna conformações nas subunidades beta para sintetizar ATP a partir de ADP e Pi. O mecanismo de acoplamento é estritamente dependente da integridade da membrana interna. Se houver qualquer ruptura — mesmo microscópica — o gradiente colapsa e a síntese de ATP para imediatamente, independentemente do funcionamento dos complexos superiores. Um detalhe que muitos passam despercebido: otransporte de adenina nucleotídeos através da membrana mitocondrial interna não é gratuito. A adenina nucleotídeo translocase (ANT) troca ADP citosólico por ATP mitocondrial em um processo eletroneurotrofado que consome parte da força protomotora. Isso significa que o ATP produzido dentro da mitocôndria não chega ao citosol de forma livre — o custo de transporte reduz o rendimento líquido em aproximadamente 1 ATP por cada 4 pares de prótons que retornam via ANT. Em cálculos bioenergéticos precisos, ignorar esse custo leva a superestimativas de até 10% no balanço energético celular.
Outro ponto negligenciado é a geração de espécies reativas de oxigênio (EROs). O Complexo I e o Complexo III são os principais sítios de vazamento de elétrons para o oxigênio, formando superóxido (O2•-). Em condições normais, isso representa menos de 1% dos elétrons que fluem pela cadeia, mas sob condições de alto potencial de membrana e baixo fluxo de elétrons — como quando o gradiente de prótons está saturado e a ATP sintase está limitando o retorno de H+ — o vazamento pode triplicar. Isso explica por que mitocondrias em estado de hiperpolarização produzem significativamente mais EROs do que aquelas em estados despolarizados moderados, um fato que contradiz a intuição de muitos estudantes que associam "mais atividade da cadeia" diretamente a "mais dano oxidativo" de forma linear. A desfosforilação oxidativa também é sensível a variações de temperatura. A fluidez da membrana mitocondrial muda com a temperatura, afetando a mobilidade dos componentes da cadeia de transporte de elétrons, especialmente a ubiquinona, que precisa difundir-se lateralmente entre os complexos I/II e o Complexo III. Em temperaturas abaixo do fisiológico, essa difusão fica mais lenta e pode limitar a taxa total do fluxo de elétrons mais do que a cinética enzimática dos complexos individuais. Esse é um fator frequentemente ignorado em experimentos in vitro realizados em temperatura ambiente. Se você está estudando isso para uma prova ou para aplicar em pesquisa, preste atenção aos valores de potencial redox padrão. O par NAD+/NADH tem E°' de -0.32 V, enquanto o par O2/H2O tem E°' de +0.82 V. A diferença total de potencial ao longo da cadeia é de aproximadamente 1.14 V, o que corresponde a uma variação de energia livre de cerca de -220 kJ por par de elétrons transferidos do NADH ao oxigênio. Parte dessa energia é conservada no gradiente de prótons, e parte é dissipada como calor. A eficiência teórica máxima de conversão é da ordem de 60-70%, mas na prática celular raramente ultrapassa 40-50% devido às perdas por vazamento e ao custo de transporte.
Para quem trabalha com determinação da atividade dos complexos da cadeia respiratória, o conselho prático é: não confie cegamente nos kits comerciais de espectrofotometria sem validar com inibidores específicos. Já vi dados publicados onde a atividade do Complexo II estava superestimada em 40% porque o ato usado (succinato) também era metabolizado por enzimas citoplasmáticas presentes na preparação mitocondrial. A solução é realizar medições na presença e ausência de malonato, um inibidor específico do Complexo II, e subtrair o sinal de fundo correspondente. Por fim, a regulação da fosforilação oxidativa não é determinada apenas pela disponibilidade de substratos. O controle respiratório, medido pelo índice de controle respiratório (RCR), depende da razão entre ATP sintetado e oxigênio consumido. Um RCR alto (acima de 3-4 em preparações mitocondriais bem isoladas) indica um acoplamento eficiente entre o fluxo de elétrons e a síntese de ATP. Preparações com RCR baixo geralmente carregam contaminação de membrana externa, dano à membrana interna durante o isolamento, ou presença de desacopladores endógenos. Antes de interpretar diferenças experimentais na taxa respiratória, verifique sempre o RCR da sua preparação.
Galeria
-

Fosforilação Oxidativa. Os complexos da cadeia respiratória (I, II, III ... -
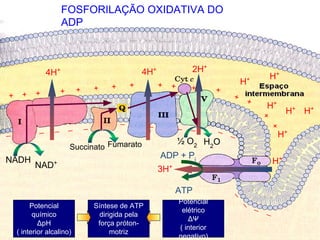
CADEIA RESPIRATÓRIA E FOSFORILAÇÃO OXIDATIVA - Biquímica | PDF -
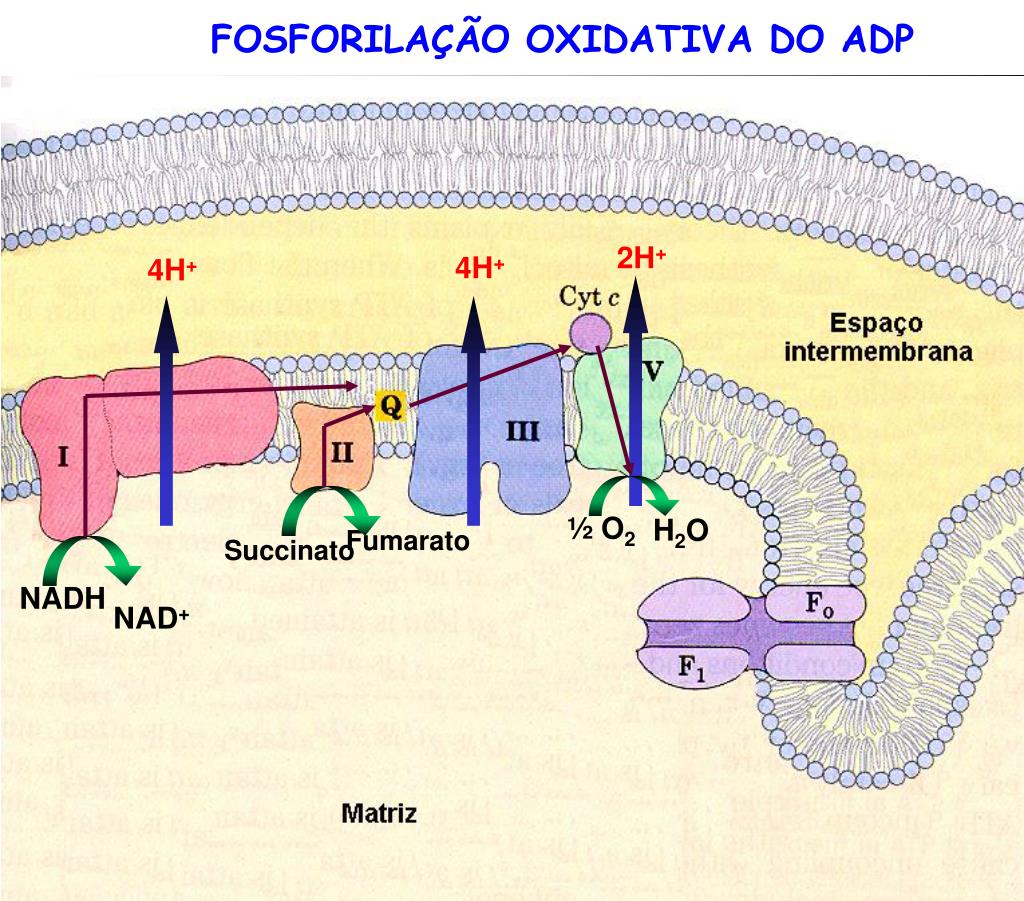
PPT - OXIDAÇÕES BIOLÓGICAS: Cadeia respiratória e fosforilação ... -
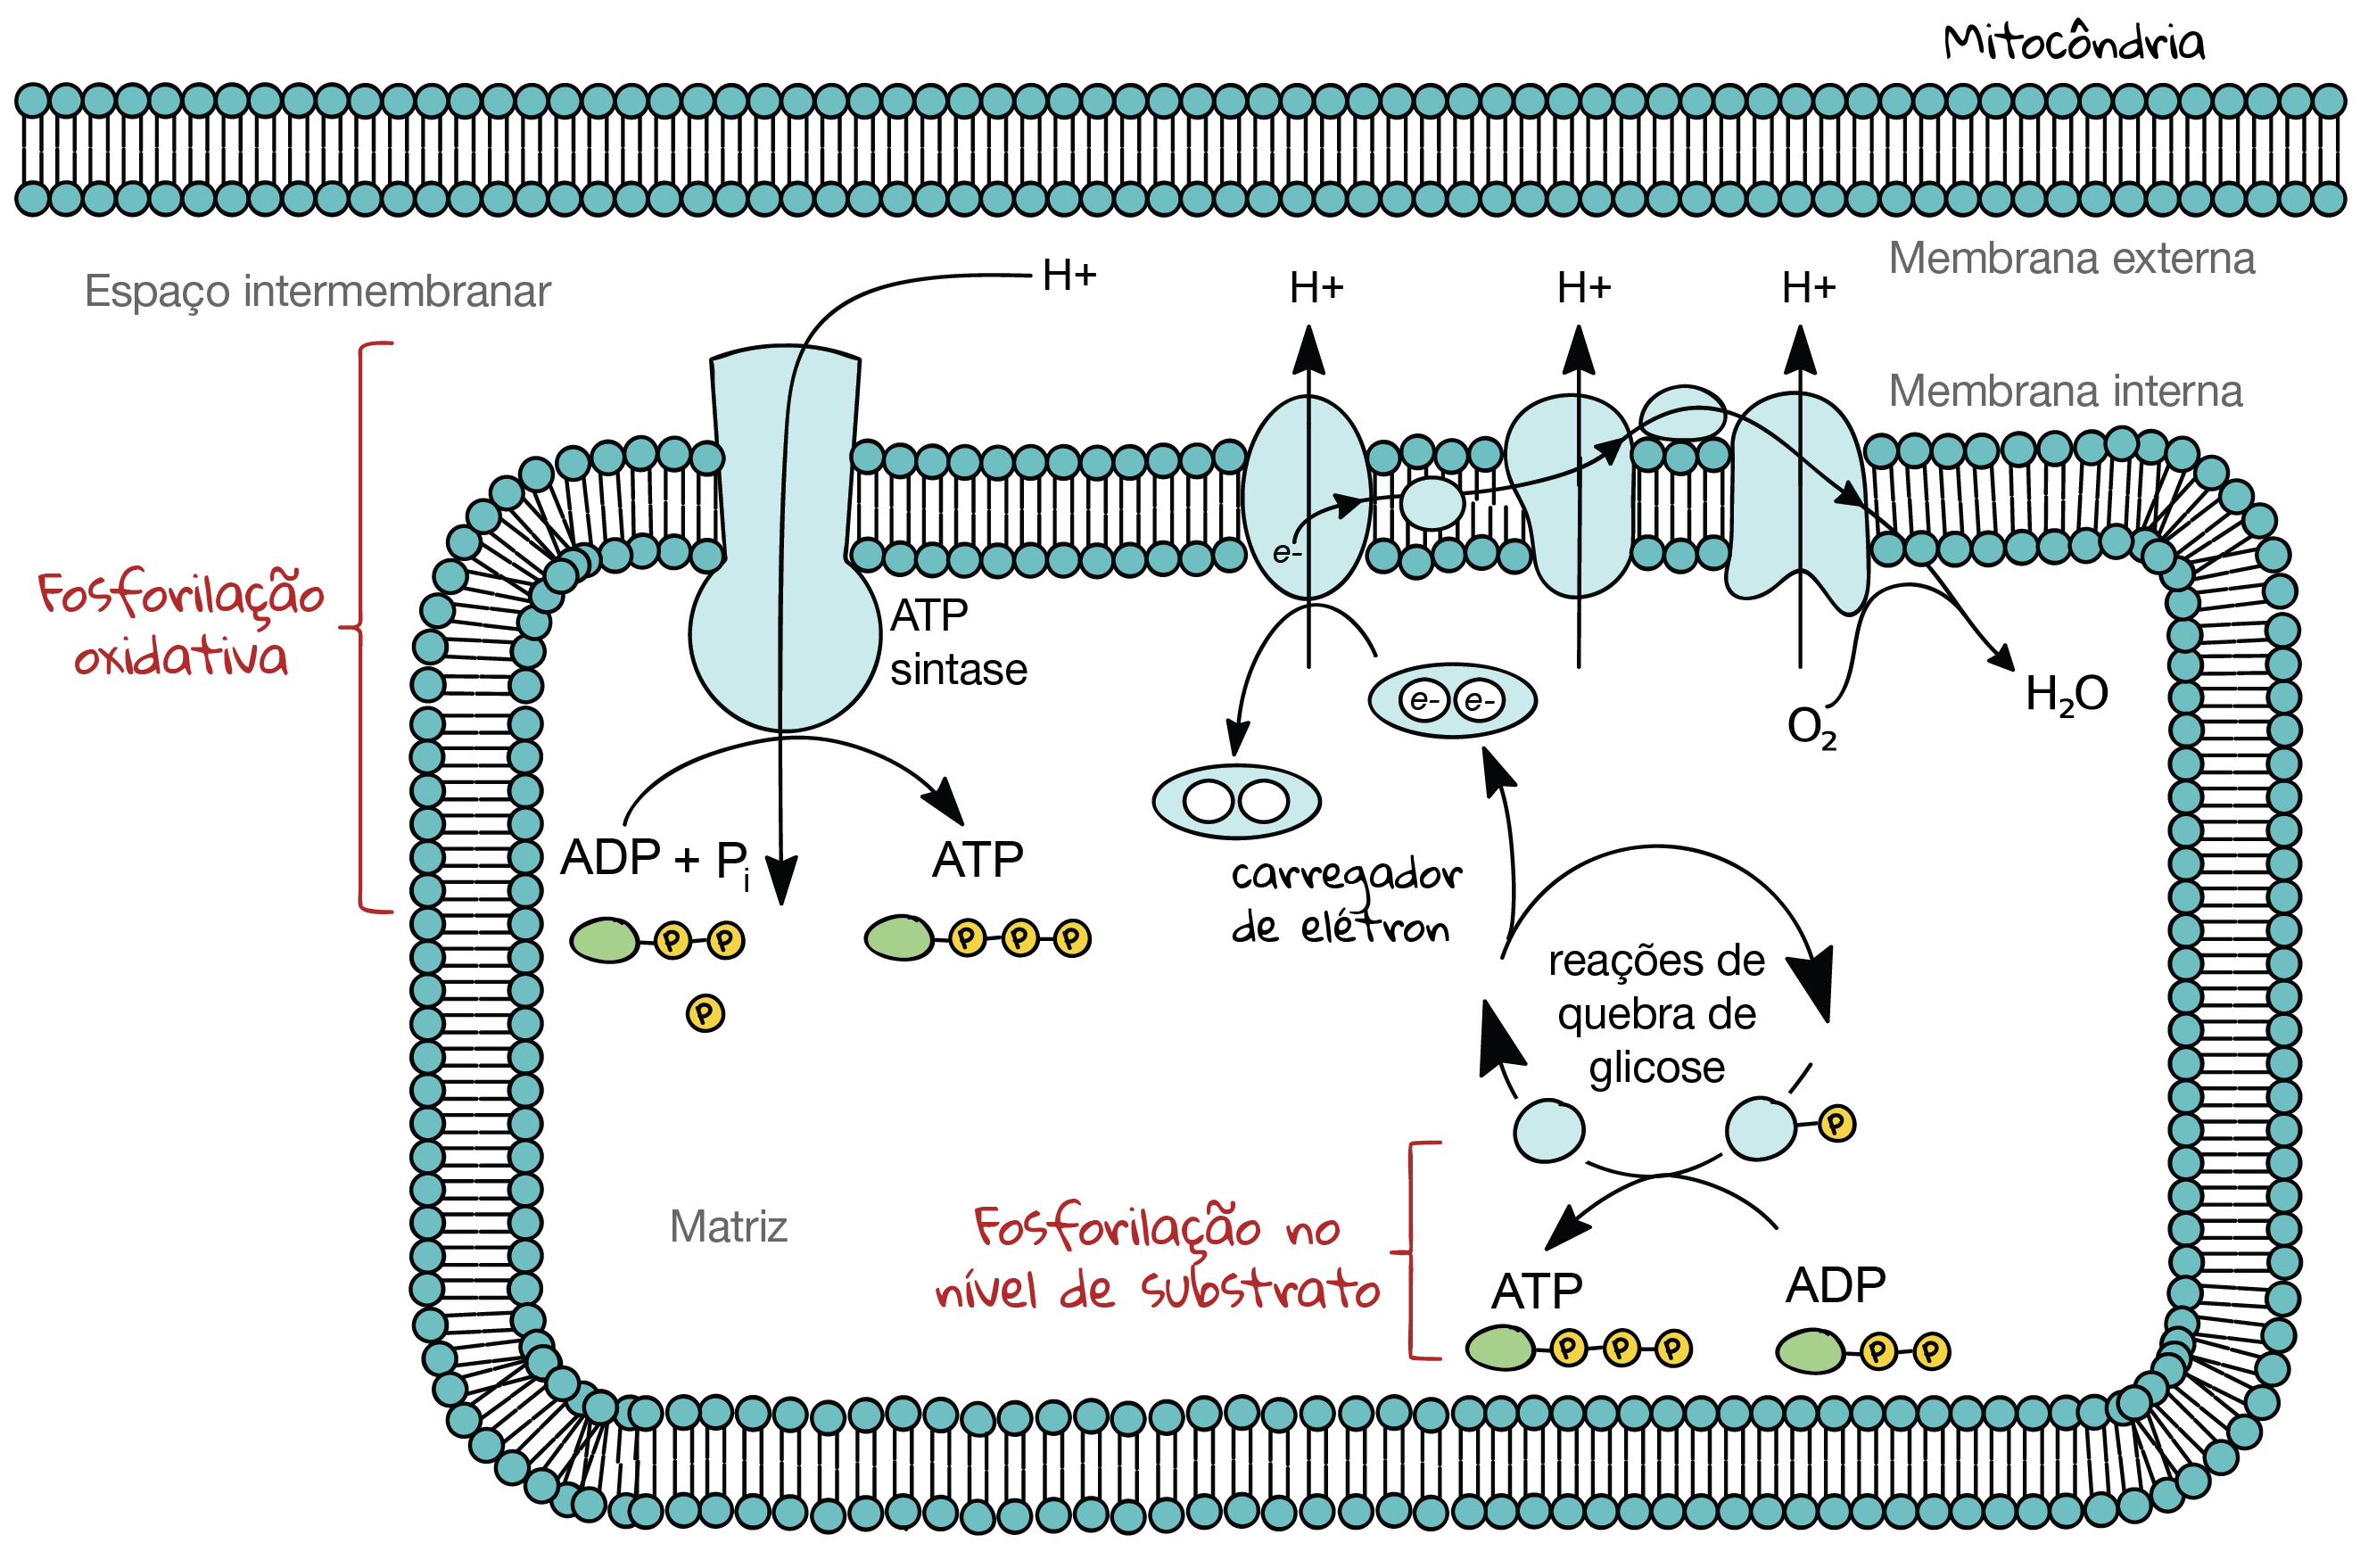
Etapas De Fosforilacao Oxidativa Respiração Celular: Como Funciona,
