Cadeia Transportadora De Eletrons
Entendendo a cadeia transportadora na prática
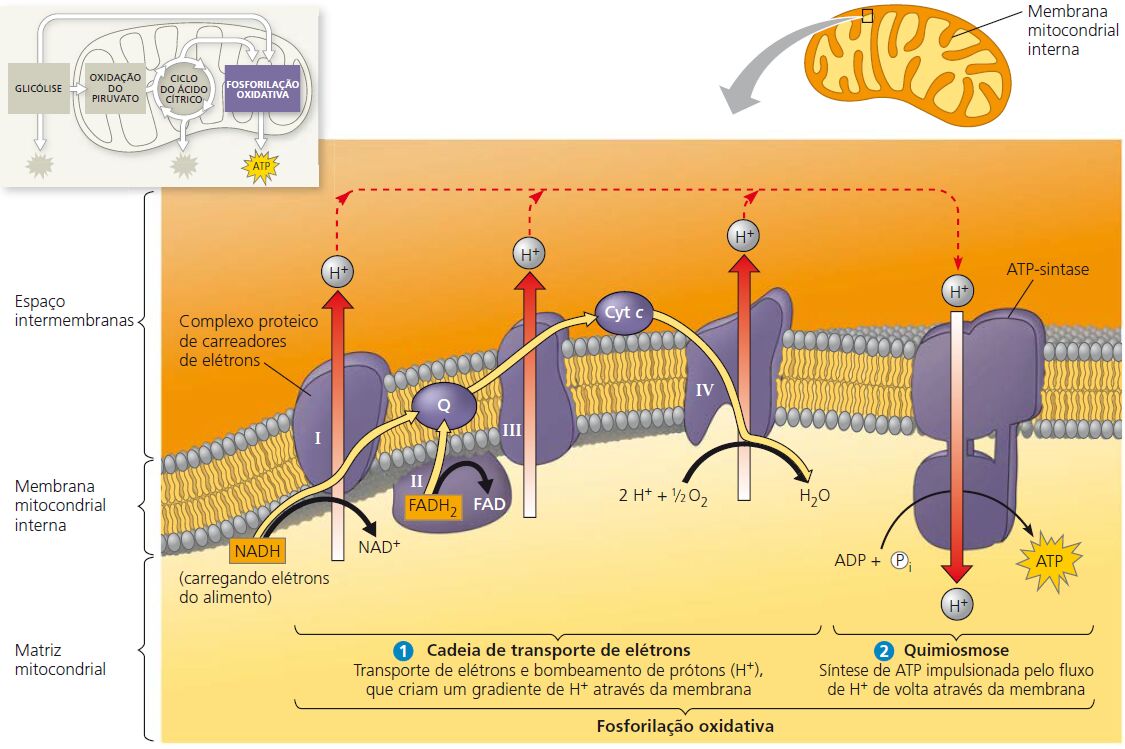
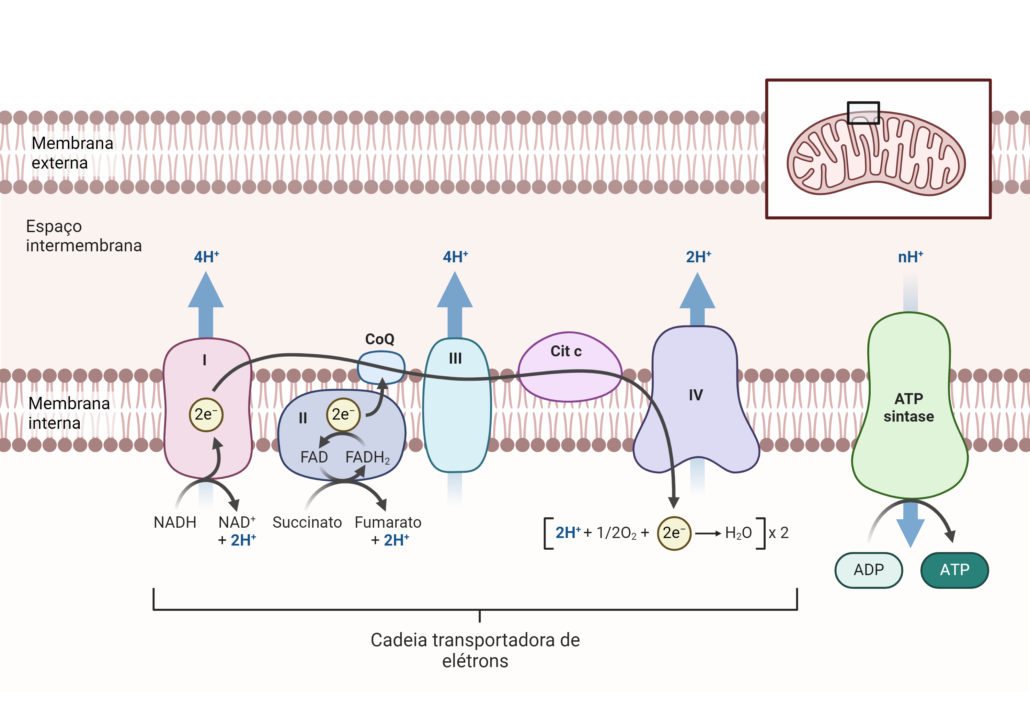
A cadeia transportadora de elétrons é um conjunto de complexos proteicos e moléculas carreadoras alojados na membrana interna das mitocôndrias (ou na membrana plasmática de bactérias), e ela existe para transformar energia de elétrons de alta energia em um gradiente de prótons que a ATP sintase converte em ATP. Parece simples quando se lê isso num livro, mas o funcionamento real é bem mais chato do que a ilustração colorida de Vea mostra. Tem gente que ainda acha que são "etapas" separadas com nomes bonitos, como se cada complexo parasse pra descansar entre si. Não funciona assim. O que acontece é fluxo contínuo de elétrons passando por portadores redox, cada um com seu potencial de redução diferente, e o movimento desses elétrons bombeia prótons ativamente através da membrana. O gradiente eletroquímico resultante (p) é o verdadeiro produto, não ATP diretamente. A ATP sintase é um motor rotativo que só gira quando há suficiente força próton-motriz. Sem gradiente, nada. Fim.
Como montar e interpretar a cadeia transportadora de eletrons em laboratório ou na prática
Se você está estudando isso para uma prova ou tentando entender dados experimentais, o primeiro erro que vejo todo mundo cometer é memorizar a ordem dos complexos sem entender por quê. O potencial padrão de redução aumenta conforme os elétrons avançam: NADH (E°' -0,32 V) passa para o Complexo I, depois ubiquinona (E°' +0,045 V), Complexo III, citocromo c (E°' +0,254 V), Complexo IV, e finalmente oxigênio (E°' +0,82 V). Essa sequência não é arbitrária — é termodinâmica pura. Elétrons fluem naturalmente do potencial mais negativo para o mais positivo. Se um potencial não está nessa ordem, a reação é energeticamente desfavorável e não acontece espontaneamente. Na prática, ao trabalhar com isolados mitocondriais ou membranas, você vai usar substratos específicos para ativar ramificações diferentes. Succinato ativa só o Complexo II (entrada via FADH2, sem bombeamento no Complexo I). Glicerol-3-fosfato entra pela desidrogenase do citoplasma e pula o Complexo I também. Isso altera o rendimento de ATP porque menos prótons são bombeados. Alguém que use succinato como substrato espera um quociente P/O de cerca de 1,5, não 2,5 como no NADH. Se seus números não batem, provavelmente está usando substrato errado ou o isolamento mitocondrial tá comprometido. Outro detalhe que ninguém ensina direito: inibidores não funcionam como nos diagramas didáticos. Antimicina A inibe o Complexo III bloqueando o ciclo Q, o que para o transporte de elétrons inteiro a montante e a jusante. Monocarbina inibe o Complexo IV. Cianeto faz o mesmo. Mas o interessante é que oligomicina não inibe a cadeia diretamente — ela bloqueia a ATP sintase. Quando você aplica oligomicina, o gradiente de prótons sobe rapidamente, e a cadeia para sozinha por retroalimentação (respiração controlada por demanda). Isso é algo que eu descobri na marra quando estava otimizando um protocolo de respirometria com células Permeabilizadas. Minha taxa de consumo de oxigênio (OCR) não caía quando eu adicionava oligomicina no volume certo, e levei três dias pra perceber que a concentração de saponina pra permeabilizar tá superestimada, destruindo a integridade da membrana interna. Reduzi de 50 g/mL pra 25 g/mL e a resposta à oligomicina ficou limpa de cara.
Se você está analisando dados de clamps ou experimentos com drogas, preste atenção em três coisas que a maioria ignora: Primeiro, a eficiência do desacoplamento. DNP (2,4-dinitrofenol) e FCCP tornam a membrana permeável a prótons, dissipando o gradiente sem produzir ATP. A cadeia funciona no máximo, consumindo substrato rapidamente, mas sem síntese de ATP. Em cultura celular, isso se traduz num pico de OCR seguido de colapso energético. Se você vê OCR subir sem aumento correspondente de consumos de glicose ou gluta, o composto pode ser um desacoplante. Teste com BSA (ácido graxo livre quelante) pra confirmar — se o efeito some, era ácido graxo agindo como desacoplante endógeno. Segundo, a questão dos elétrons que "vazam". Cerca de 1-3% dos elétrons na cadeia escapam prematuramente e reduzem oxigênio diretamente a superóxido (O•), principalmente nos Complexos I e III. Isso não é defeito, é característica. O Complexo I gera superóxido quando o NAD está muito reduzido e a ubiquinona muito reduzida (Q pool esgotado). O Complexo III gera no lado da matriz durante o passo Qn (semiquinona) e no lado da interface durante o passo Qp. Se você está medindo espécies reativas de oxigênio, saber de onde elas vêm muda completamente a interpretação. Superoxido dismutase mitocondrial (SOD2) é a principal defesa, mas se ela estiver saturada ou com atividade comprometida, o dano oxidativo aparece rápido.

Terceiro, a variação isoforma dos citocromos. Em tecidos com alta demanda energética (coração, músculo esquelético), o citocromo c pode ter variações pós-traducionais que afetam a cinética de transferência de elétrons pro Complexo IV. Eu vi laboratórios inteiros perderem semanas achando que o Complexo IV estava deficiente porque a atividade citocromo c oxidase media não batia com o esperado pro tecido — e era só um isoforma com Km diferente pro citocromo c. A correção foi refazer a curva dose-resposta com citocromo c puro e ajustar a equação de Michaelis-Menten pro Ks específico do isoforma presente naquele tecido. Há também o caso dos ácidos graxos de cadeia muito longa. Em condições normais, a beta-oxidação gera NADH e FADH2 que entram diretamente na cadeia. Mas em certos erros inatos do metabolismo, como a deficiência de CPT1 ou de translocase de acil-carnitina, os ácidos graxos não entram na mitocôndria. O resultado é uma cadeia transportadora funcionando perfeitamente com substratos alternativos, mas o organismo inteiro entrinqueca porque não há fonte alternativa de acetil-CoA. Em testes laboratoriais, isso se manifesta como hipoglicemia severa com cetose ausente ou baixa, enquanto a capacidade respiratória mitocondrial medida diretamente parece normal. O problema não tá na cadeia, tá na entrada de substrato. Se você precisa de dados quantitativos confiáveis sobre a cadeia transportadora de eletrons, a respirometria de alta resolução (como sistemas O2k ou Seahorse) é o padrão-ouro. Mas cuidado com artefatos: temperatura não controlada varia a taxa enzimática em ~Q10 de 2x, concentração de cálcio extramitocondrial afeta a desidrogenase do piruvato, e a qualidade do meio de suspensão (mangani, ferro disponível) pode limitar a montagem dos centros ferro-enxofre dos complexos. Um meio mal preparado pode fazer parecer que há deficiência no Complexo I quando na verdade é só carença de cofatores.
Para quem trabalha com modelos celulares ou teciduais, saiba também que a cadeia não é estática. Ela se organiza em estruturas chamadas supercomplexos ou respirassomas — Complexo I+III+IV associadas fisicamente. Isso não é só estética; reduz a difusão livre da ubiquinona e do citocromo c entre os complexos, aumentando a eficiência de transferência e minimizando o vazamento de elétrons. Isolações mitocondriais agressivas com detergentes fortes destroem esses supercomplexos, e atividades medidas isoladamente podem superestimar ou subestimar a capacidade funcional real. O ideal é usar detergentes não iônicos suaves (como digitonina) se o objetivo for preservar a arquitetura nativa.
Galeria
-

Metabolismo de Carboidratos: CADEIA TRANSPORTADORA DE ELÉTRONS -

CADEIA TRANSPORTADORA DE ELÉTRONS E FOSFORILAÇÃO OXIDATIVA Esses dois ... -
Bacterias Da Cadeia Transportadora De Eletrons -
Cadeia Transportadora de Elétrons e ATP | PDF | Respiração celular ...

