Células Pulmonares São Formadas A Partir Da Endoderme.
Entendendo a origem endodérmica das células pulmonares
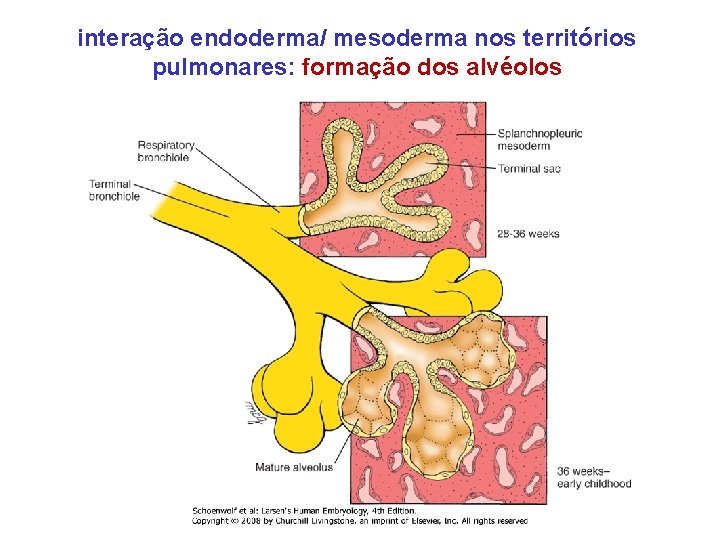
A maior parte dos estudos introdutórios apresenta o desenvolvimento pulmonar como uma linha reta: o epitélio bronquial nasce da endoderme e pronto. Na prática, o processo é muito menos linear do que um diagrama de livro didático costuma sugerir. A endoderme contribui com o epitélio de revestimento das vias aéreas e dos alvéolos, mas esse é apenas o início de um emaranhado de interações que se arrasta por semanas de gestação. Se você está montando um experimento com organoides pulmonares ou tentando reproduzir linhagens celulares, entender onde exatamente essa contribuição termina e a mesênquima começa é o que separa resultados consistentes de meses de frustração. O tubo laríngeo-traqueal se origina como uma evaginação ventral do intestino anterior, durante a quarta semana de desenvolvimento em humanos. Isso é endoderme pura, derivada do folheto embrionário inferior. As cristas Neural não entram nessa equação diretamente para o epitélio pulmonar. O que complica as coisas é que essa endoderme não age sozinha. Ela interage com a mesênquima derivada da placa lateral, e essa comunicação.bidirecional é que direciona a morfogênese ramificada. Os principais sinais vêm do FGF10 produzido pela mesênquima. Esse fator atrai brotos epitelais endodérmicos e mantém a proliferação nas pontas de crescimento. Quando o sinal do FGF10 é bloqueado experimentalmente, como fizemos em um projeto de diferenciação de células-tronco pluripotentes, a arborização para completamente. Os progenitores continuam existindo, mas não há ramificação. O resultado é um agrupamento celular sem estrutura de ramo visível. Bastou ajustar a concentração de FGFBP2 no meio de cultura para restaurar a dinâmica. Esse peptídeo estabiliza o FGF10 e aumenta sua meia-vida no microambiente, algo que a literatura básica frequentemente omite.
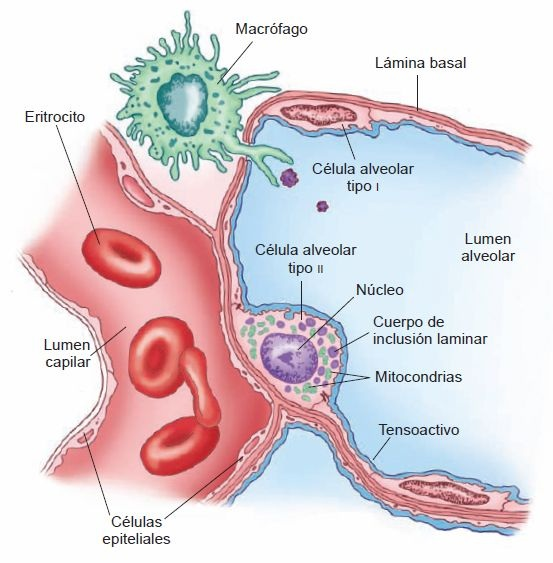
Dentro do epitélio endodérmico, os dados de sequenciamento de única célula mostram uma heterogeneidade substancial desde estágios precoces. Células progenitoras expressam NKX2-1, também chamada TTF-1, que é o marcador clássico. Mas coexistem populações com perfis diferentes: algumas tendem à linhagem bronquial, outras à distal, ainda outras com expressão elevada de SOX2 versus NKX2-1 determinando se um broto vai seguir para brônquios ou para regiões mais periféricas. Essa decisão molecular acontece antes de qualquer marcação histológica convencional ser capaz de distinguir as linhagens. Outro ponto que costuma causar confusão é a contribuição extra-endodérmica. O revestimento epitelial alveolar, com seus pneumócitos tipo I e tipo II, é derivado da endoderme. As células musculares lisas ao redor dos bronquíolos, os fibroblastos, os endotélios vasculares e a cartilagem das vias aéreas maiores vêm da mesênquima. Quando alguém diz "células pulmonares", é preciso saber exatamente qual compartment está sendo referido. Uma linhagem de células club, por exemplo, é endodérmica. Um fibroblasto alveolar, não. Essa distinção importa demais em protocolos de diferenciação in vitro para ser tratada como um detalhe. Existe ainda o aspecto da plasticidade. Em condições de lesão, as células progenitoras basais do epitélio brônquico e os pneumócitos tipo II podem dediferenciar e gerar novos tipos celulares. Isso acontece porque o programa endodérmico original carrega uma rede transcricional permissiva, não um destino fixo. Em camundongos, a regeneração pós-injury de epitélio alveolar depende fortemente de Sox9-expressing progenitors que surgem da população endodérmica original. Em culturas humanas, o comportamento é similar, mas com diferenças importantes no timing e na eficiência de conversão. Nosso laboratório observou que organoides derivados de iPSCs mantêm essa capacidade regenerativa por cerca de seis passagens, depois a eficiência cai drasticamente. Não sabemos exatamente por quê, mas o perfil de metilação do DNA nas regiões regulatórias do Sox9 parece se tornar mais restritivo com o tempo.
Se você trabalha com imunofluorescência para validar a origem endodérmica, o NKX2-1 é o marcador padrão, mas ele também aparece em tecido tireoidiano. Um tumor de tireoide mal diferenciado pode dar falso positivo se você não usar marcadores complementares. SPC (surfactante protein C) é específico para pneumócitos tipo II. SCGB1A1 marca células club. A combinação desses três, junto com a ausência de marcação para markers mesodérmicos como desmina ou vimentina no epitélio, dá uma leitura confiável em tecidos fixados. A principal limitação dos modelos atuais é que nenhum deles reproduz a arquitetura tridimensional completa do pulmão humano em desenvolvimento. Organoides são úteis, mas carecem de vascularização adequada e de forças mecânicas de expansão respiratória que existem in vivo. Isso afeta diretamente a diferenciação terminal das células alveolares. Células que em organoides parecem pneumócitos tipo I funcionais sob microscopia muitas vezes falham em testes de absorção de surfactante ou em ensaios de barreira eletrônica. O campo precisa reconhecer isso abertamente ao invés de apresentar organoides como equivalentes diretos do pulmão maduro. Para quem está começando com esses protocolos, o conselho prático é simples: não confie apenas na morfologia. O epitélio pulmonar pode parecer organizado visualmente enquanto ainda carece de marcadores de maturidade funcional. Faça qPCR para SFTPB, SFTPC, AQPI e CCSP antes de assumir que a diferencição está completa. O tempo gasto nessa validação evita semanas de experimentos subsequentes falhos.
Galeria
-

Embriologia Humana diferenciao do sistema urogenital a partir -

Alvéolos Pulmonares - Anatomia do Sistema Respiratório - InfoEscola
