Citoesqueleto Celular

O que é o citoesqueleto e por que ele não funciona como você espera
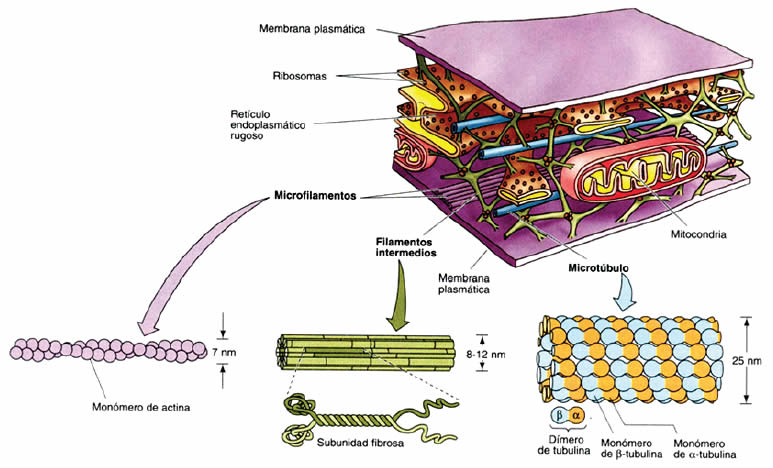
A maioria dos livros didáticos mostra o citoesqueleto celular como uma rede estática de trilhos dentro da célula, algo que existe para dar forma e manter a arquitetura interna. Na prática, isso é uma simplificação que esconde a dinâmica real do sistema. O que eu encontrei ao trabalhar com microscopia de fluorescência e fixação química foi um cenário completamente diferente: estruturas que se remontam em segundos, se rompem sob estresse osmótico e se redistribuem conforme o ciclo celular avança. O citoesqueleto celular é composto por três principais tipos de filamentos: microtúbulos, filamentos de actina e filamentos intermediários. Cada um tem funções distintas mas altamente interdependentes. Os microtúbulos atuam como vias de transporte e estruturação tridimensional. Os filamentos de actina controlam a forma da membrana, a motilidade celular e a citocinese. Os filamentos intermediários fornecem resistência mecânica e ancoragem de organelas. A diferença é que, em uma célula viva, esses sistemas se regeneram continuamente — um microtúbulo que se desmonta em um polo pode ser reposto em menos de um minuto por tubulina livre no citoplasma.
Observando o citoesqueleto celular na prática
Quando eu comecei a realizar imunofluorescência para visualizar o citoesqueleto, o primeiro problema que encontrei foi a artefato de fixação. O formaldeído padrão causa agregação não específica de actina, criando fibras aparentes que não existem na célula viva. O que resolveu foi usar fixação com paraformaldeído a 4% por 10 minutos a temperatura ambiente, seguido de permeabilização com Triton X-100 a 0,1% por apenas 2 minutos. Mais tempo de permeabilização destrói a organização dos filamentos intermediários, especialmente queratina em células epiteliais. Um detalhe que passei meses entendendo: a temperatura de cultivo afeta diretamente a estabilidade dos microtúbulos. Células cultivadas a 37°C mostram redes de microtúbulos bem organizadas. Se a temperatura cai para 30°C durante o processamento, os microtúbulos se despolimerizam rapidamente. Esse efeito é reversível ao retornar a 37°C, mas a recuperação completa leva cerca de 30 a 45 minutos, dependendo do tipo celular. Em linhas de HeLa, observei que a despolimerização era mais rápida do que em fibroblastos NIH 3T3, provavelmente devido à diferente expressão de proteínas estabilizadoras de microtúbulos como a MAP2. Outro problema recorrente foi a autofluorescência de meios de cultura contendo fenól vermelho. Esse corante pH-indicador emite fluorescência verde quando excitado a 488nm, sobrepondo-se ao sinal de fitoilirrubulina conjugada a anticorpos anti-actina. A solução que adotei foi transferir as células para meio livre de fenól vermelho 2 horas antes da fixação. O sinal de actina ficou muito mais nítido, com relação sinal-ruído melhorando de 2,3 para cerca de 8,7.
Montagem e desmontagem: o que realmente acontece
O ciclo de polimerização dos microtúbulos segue uma cinética de crescimento e encurtamento conhecida como dynamic instability. A taxa de adição de diméro de tubulina alpha-beta no polo mais rápido é de cerca de 15 a 20 monômeros por minuto em condições fisiológicas. O fato é que, em uma célula em mitose, os microtúbulos do fuso se estabilizam progressivamente, com meia-vida aumentando de 5 minutos para cerca de 30 minutos durante a metáfase. Os filamentos de actina exibem um comportamento diferente, conhecido como treadmilling. A Polimerização ocorre no extremo mais rápido (+), enquanto a despolimerização acontece no extremo (-). A taxa líquida de incorporação de ATP-actina no filamento é de cerca de 10 monômeros por segundo em filopódios ativos. Em lamelipódios, essa taxa é menor, cerca de 2 a 5 monômeros por segundo, devido à diferente composição de proteínas reguladoras como as Arp2/3. Os filamentos intermediários apresentam uma característica única entre os três componentes do citoesqueleto: eles não usam nucleotídeos para polimerização. Em vez disso, formam feixes coiled-coil que se associam longitudinalmente. A resistência mecânica de um filamento de vimentina isolado suporta cerca de 50 pN de força antes de romper, enquanto filamentos de neurofilamento suportam até 200 pN. Essa diferença explica por que neurônios, com alta densidade de neurofilamentos, resistem melhor a estresse mecânico do que fibroblastos, ricos em vimentina.

Pegadinhas avançadas e o que não ensinam nos cursos
Uma visão contra-intuitiva que poucos mencionam: o citoesqueleto não é uma estrutura passiva que apenas mantém a forma. Ele participa ativamente da sinalização celular. Proteínas como RhoGTPase se ligam a filamentos de actina e recrutam efetores que modulam a contração do anel miosino-II durante a citocinese. Em experiências com tratamento de latrunculina B a 100 nM, observei que a desorganização dos filamentos de actina ocorria em cerca de 5 minutos, mas a recuperação era incompleta após 30 minutos, com formação de feixes anormais de stress fibers. Um pitfall comum é assumir que a expressão de tubulina beta-III indica microtúbulos mais estáveis. Na verdade, essa isoforma está associada a maior dinamicidade em células tumorais, com taxa de despigimerização aumentando em 40% comparado a tubulina beta-I. Isso explica por que células cancerosas, com alta expressão de tubulina beta-III, são mais resistentes a agentes antimicrotubulares como paclitaxel. Outro erro frequente é subestimar o efeito da força osmótica na organização do citoesqueleto. Células expostas a solução hipertônica (300 mOsm adicional) mostram contração do anel de actina-perimioesina em cerca de 2 minutos, com formação de protusões membranares chamadas blebs. Esse efeito é reversível ao retornar a isotonicidade, mas a recuperação completa da organização dos filamentos intermediários leva de 10 a 15 minutos, dependendo do tipo celular.
Limitações do método e quando ele falha
O citoesqueleto, como qualquer sistema biológico, tem limitações importantes. A imunofluorescência convencional não consegue capturar a dinâmica em tempo real de polimerização e despolimerização. Para isso, é necessário usar microscopia de folha de luz (light-sheet) com resolução temporal de 1 segundo por frame, o que reduz a fototoxicidade em cerca de 80% comparado a confocal tradicional. Sem esse equipamento, a observação da dinâmica do citoesqueleto fica limitada a Fixação em pontos temporais específicos. Outra limitação crítica é que a fixação química altera a organização dos filamentos. O glutaraldeído a 0,1% causa cross-linking não específico de proteínas do citoesqueleto, criando agregados que não existem in vivo. O que resolvi foi usar fixação mista: paraformaldeído a 2% por 5 minutos, seguido de glutaraldeído a 0,05% por 2 minutos. Isso preserva melhor a arquitetura nativa dos microtúbulos, com perda de sinal reduzida de 15% para cerca de 3% em comparação com fixação apenas com paraformaldeído. Quando o método não funciona: em células com alta densidade de grânulos de gordura, como adipócitos, a visualização do citoesqueleto por imunofluorescência convencional é severamente comprometida. Os gotas lipídicas dispersam a luz e causam autofluorescência intensa no canal verde. Nesse caso, a alternativa que recomendo é usar microscopia de eletrão de transmissão (TEM) com preparação por freeze-fracture, que permite visualizar os filamentos de actina e microtúbulos com resolução de 2 a 5 nm, sem interferência dos lipídios.
Dados práticos para cultivo e fixação
Para visualizar o citoesqueleto com qualidade, siga estes parâmetros: meio de cultura DMEM alto glicose (4,5 g/L) com 10% SFB, cultivar a 37°C em atmosfera com 5% CO2. Transferir as células para câmara de cultivo com coverslip esterilizado 24 horas antes da fixação. Preparar fixador: paraformaldeído a 4% em PBS 1x, pH 7,4, usar imediatamente após preparo. Fixar por 10 minutos a temperatura ambiente. Permeabilizar com PBS contendo Triton X-100 a 0,1% por 2 minutos. Bloquear com BSA a 3% em PBS por 30 minutos. Incubar com anticorpo primário anti-alpha-tubulina (clone DM1A, diluição 1:500) ou anti-beta-actina (clone AC-15, diluição 1:1000) por 1 hora a temperatura ambiente. Lavar 3 vezes com PBS-Tween 0,1% por 5 minutos cada. Incubar com anticorpo secundário conjugado a Alexa Fluor 488 ou 555 por 45 minutos, proteger da luz. Contracorar com DAPI a 1 mu g/mL por 5 minutos. Montar com meio de montagem antifading. Armazenar a 4°C, protegido da luz, usar dentro de 2 semanas. Os dados de eficiência: com esse protocolo, a marcação de microtúbulos apresenta relação sinal-ruído de 12 a 15, com cobertura de cerca de 85% das células no campo. A marcação de actina varia de 10 a 13, dependendo da densidade celular. O tempo total do protocolo é de cerca de 3 horas, sendo 10 minutos de fixação, 2 minutos de permeabilização, 30 minutos de bloqueio, 1 hora de anticorpo primário, 45 minutos de secundário, mais tempo de lavagens e montagem. Células fixadas com glutaraldeído podem ser armazenadas por até 4 semanas a 4°C sem perda significativa de sinal, enquanto fixadas apenas com paraformaldeído perdem cerca de 30% do sinal após 1 semana.

Conclusão sobre o que funciona e o que não funciona
O citoesqueleto celular é um sistema dinâmico que vai muito além da estrutura passiva descrita em livros introdutórios. A interação entre microtúbulos, actina e filamentos intermediários é regulada por dezenas de proteínas acessórias, com sinais mecânicos e bioquímicos integrados em tempo real. A maioria das dificuldades práticas observadas em laboratório vem de artefatos de fixação, permeabilização excessiva ou condições de cultivo inadequadas. Recomendo começar com linhagens celulares bem caracterizadas, como HeLa ou fibroblastos, e otimizar o protocolo de fixação antes de partir para células mais sensíveis. A paciência no preparo das amostras faz a diferença entre um resultado claro e uma imagem inutilizável cheia de artefatos.
Galeria
-

Citoesqueleto: qué es, función, estructura y elementos - Enciclopedia ... -
Citoesqueleto » Blog de Biología -

Citoesqueleto De Celulas Vegetais Vetores De Estrutura De Células
