Citoesqueleto Funcao
A arquitetura invisível que mantém suas células de pé
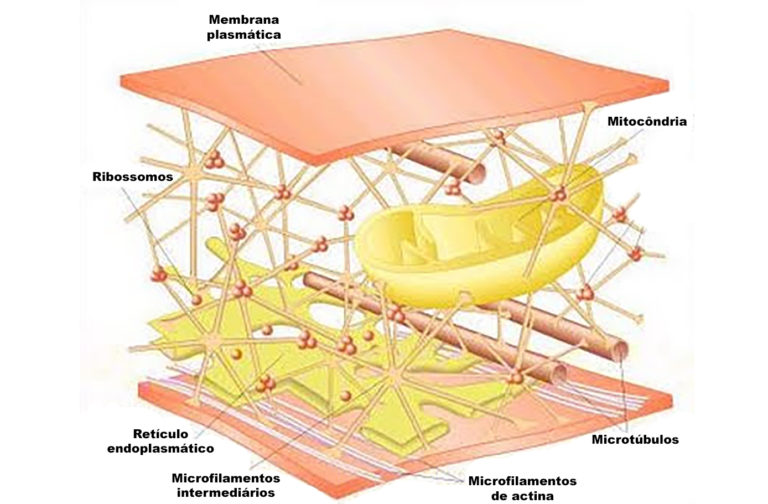
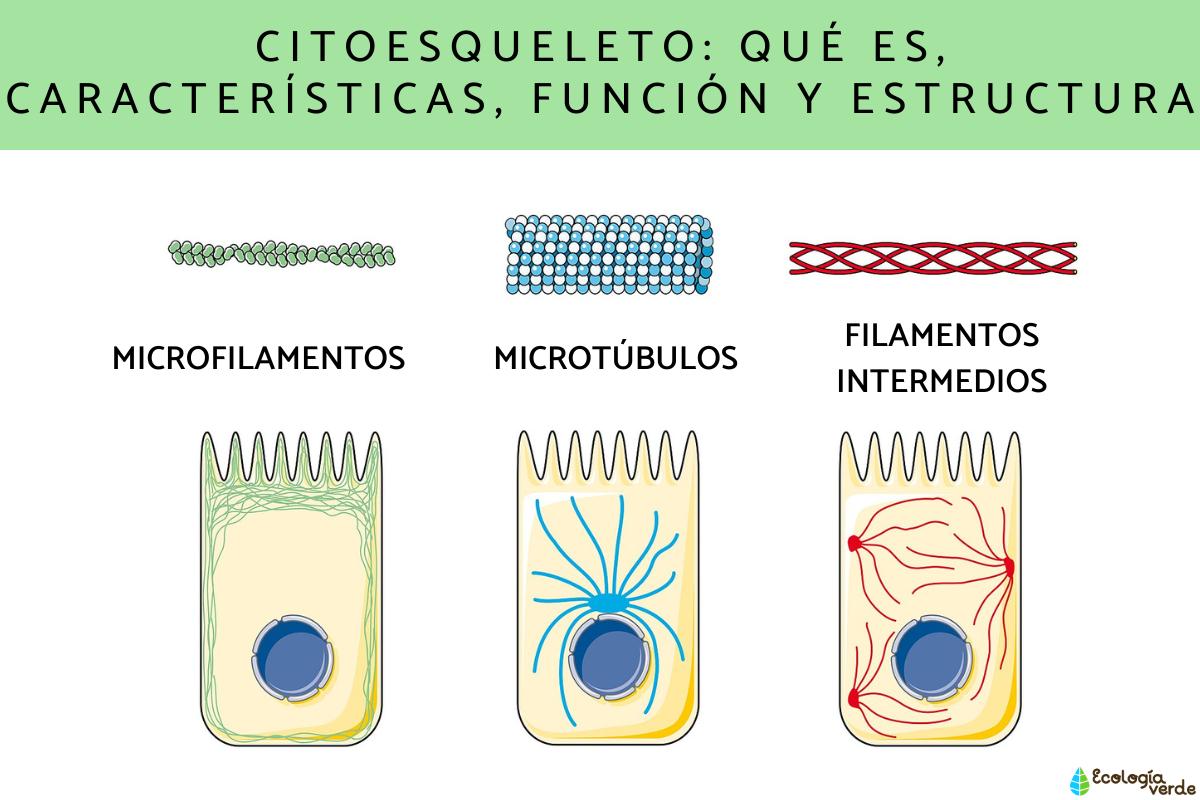
Você já deve ter ouvido falar que o citoesqueleto é como um esqueleto interno, mas essa analogia é limitada demais. Ele não só dá forma — ele anda, contrai, organiza organelas e resolve problemas mecânicos em tempo real. Vou explicar direto como funciona na prática, porque a teoria de livro didático nem sempre casa com o que acontece no microscópio de fluorescência. No sentido restrito, citoesqueleto funcao se resume a três sistemas de filamentos que se sobrepõem e se comunicam: microtúbulos, filamentos de actina e filamentos intermediários. Cada um tem proteínas estruturais distintas, dinâmicas de polimerização diferentes e funções específicas que raramente atuam isoladamente. Os microtúbulos são os trilhos para transporte axonal e formam o fuso mitótico. A actina controla a corticalidade da membrana, formação de lamellipodia e a contracção do anel miótico. Os filamentos intermediários — queratina, vimentina, desmina, neurofilamentos — são os cabos de tracção que resistem a tensão mecânica sem mostrar dinâmica rápida. A parte que os manuais costumam pular: esses três sistemas não trabalham emParallel. Eles se cruzam, se ancoram e se regulam mutuamente através de proteínas de conexão como a sinemin, a spectrina e as proteínas da família ENSA/ENSA-like. Quando você trata uma célula com taxol para estabilizar microtúbulos, a actina cortical responde em minutos reorganizando-se — isso não é efeito colateral, é sinalização física direta entre os citosqueletos.
Como eu aprendi isso na prática, e onde os protocolos falham
Eu comecei a trabalhar com citoesqueleto há uns anos fazendo imunofluorescência de rotina. O problema que ninguém conta: a fixação com formaldeído a 4% destrói parte da arquitetura de actina se você não usar pH bem tamponado e temperatura controlada. Nos meus primeiros meses, perdi semanas achando que os filamentos de actina que via eram reais, quando na verdade eram artefactos de precipitação. A virada foi passar a usar fixação com paraformaldeído novo, tamponado com fosfato a pH 7,4, e adicionar 0,1% de glutaraldeído apenas para estruturas mais resilientes como os microtúbulos. Outro ponto prático: se você quer visualizar citoesqueleto funcao em células vivas usando fluorescência de vida longa, não use apenas GFP-actina. A superexpressão de actina marcada perturba a dinâmica normal porque saturar o pool livre de actina G altera o equilíbrio de polimerização. Eu resolvi isso usando linhas BAC que expressam actina sob o promotor nativo, numa cópia por genoma, o que mantém a concentração próxima do fisiológico e preserva a dinâmica de turn-over real.
Dinâmica dos microtúbulos: o que realmente importa
Microtúbulos não são varas rígidas. Eles mostram crescimento, encurtamento, catástrofe e resgate — e esses parâmetros mudam conforme a concentração de tubulina, a presença de proteínas associadas e o estado de fosforilação. A polimerização típica em extracto de célula de neurónio ou em extracto de ovo de Xenopus mostra growth rate de 10–20 µm/min para extremidades mais, com frequência de catástrofe que aumenta quando há alta concentração de kinesin-13 ou quando a energia celular (razão GTP/GDP local) cai. O detalhe que muitos protocolos ignoram: a estabilização de microtúbulos com taxol a 10 µM em cultura de células não é uniforme. Camadas centrais de confluência alta ficam menos penetradas, e você acaba comparando células com estado de microtúbulos diferente sem perceber. Eu padronizo usando tempo de tratamento fixo de 1 hora a 37 °C, lavagem dupla e visualização imediata, porque o efeito é dinâmico e reversível com washing demorado.

Filamentos de actina: contra-intuitivo e crítico
Um erro comum é achar que estabilizar actina com phalloidina preserva a arquitectura completa. A verdade é que phalloidina liga filamentos F-actina mas não impede a despolimerização indireta induzida por mudanças de osmolaridade ou por manipulação mecânica. Se o seu objetivo é preservar a corticalidade para microscopia de super-resolução, o fixador ideal é o 4% PFA com 0,1% saponina e depois staining com phalloidina conjugada a Alexa em buffer com 150 mM KCl — isso mantém a tensão cortical sem colapsar a rede. Aqui vai um insight que raramente aparece em revisão: a organização da actina cortical não é apenas estrutural, é mecanossensitiva. Células em substratos rígidos (>30 kPa) espessam os stress fibers e aumentam a actividade de ROCK; em substratos moles (
1 kPa), a actina se redistribui para a periferia em forma de anel. Isso significa que o citoesqueleto funcao varia conforme o contexto mecânico, não apenas conforme o sinal bioquímico.
Filamentos intermediários: os menos amados, mas insubstituíveis
Os filamentos intermediários são os que menos dinâmica mostram, mas isso não significa que sejam inertes. Eles respondem a tensão mecânica e a sinais de dano celular. Em hepatócitos, a vimentina se reorganiza rapidamente após lesão por isquemia-reperfusão; em neurónios, os neurofilamentos definem o calibre axonal e afetam directamente a condução do impulso. A desmina, presente em músculo esquelético e cardíaco, forma redes que alinham os miofibrilos e resistem à contração cíclica. O problema que encontro na prática: a detecção de filamentos intermediários por imunofluorescência é frequentemente problemática porque muitos anticorpos reconhecem epitopos ocultos em conformações específicas. Eu tenho tido melhor resultado com anticorpos que reconhecem o domínio central rod-like, usando permealização com 0,1% Triton X-100 por 5 minutos a temperatura ambiente. Para tecido fixado em parafina, a recuperação antigénica com citrato pH 6 funciona melhor que com Tris-EDTA pH 9, porque preserva a conformação do domínio central.
Interconexões e sinalização cruzada
Um aspecto subestimado é a comunicação mecânica entre os três sistemas. Proteínas como a formin, aascin e a ERM (ezrina-radixin-moesina) ligam actina a membrana e, por extensão, a microtúbulos que crescem ao longo de complexos de adesão. Quando microtúbulos atingem uma junção adhesiva, eles entregam cargas de integrinas e proteín de sinalização; isso regula a maturação do focal adhesion e, por consequência, a tensão cortical. Eu observei experimentalmente que, ao inibir a polimerização de microtúbulos com colchicina, a actina cortical responde com aumento de tensão e formação de stress fibers em 30 minutos. Isso não é um artefacto de morte celular — é realocação de força. A célula compensa a perda de suporte interno redistribuindo carga para a rede de actina. Esse efeito é mensurável com traction force microscopy e mostra que o citoesqueleto funcao é uma rede integrada, não um conjunto de componentes independentes.
Limitações e armadilhas comuns
O principal problema ao estudar citoesqueleto é que a preparação da amostra altera drasticamente a arquitectura observada. Fixadores, permealizadores, condições de staining e até a rigidez do substrato durante a imagem podem produzir artefactos que parecem biológicos. Microtúbulos podem se desorganizar com variações de temperatura durante o montagem; a actina cortical pode colapsar com excesso de permealização; filamentos intermediários podem se agregar em resposta a estresse osmótico. Alternativas válidas existem quando a imunofluorescência clássica não basta. Microscopia de força atômica (AFM) permite medir elasticidade cortical sem fixação; FRAP (fluorescence recovery after photobleaching) dá dados quantitativos de turnover; e a microscopia de super-resolução com PALM/STORM revela nanodominíos que a difracção limita. Nenhuma delas substitui a fluorescente convencional, mas todas complementam quando a pergunta exige resolução temporal ou espacial além do limite de Abbe. Se você precisa de um protocolo confiável para citoesqueleto funcao em células aderidas, o que funciona para mim é: fixação 4% PFA 10 minutos, permealização 0,1% Triton 5 minutos, bloqueio com 3% BSA + 5% soro normal 30 minutos, staining primário overnight a 4 °C, wash com PBS-T 0,05% três vezes, counterstain com DAPI ou Phalloidin-Alexa conforme o alvo, e montagem em meio anti-fade com n-propilgalato. Imagem dentro de 24 horas para evitar fade significativo. Para células suspensas, a centrifugação em spin chamber com 500 g por 5 minutos antes da fixação preserva a polaridade melhor que a suspensão livre.
Resumindo sem resumir: o citoesqueleto é uma rede dinâmica, mecanossensitiva e interconectada. Ele responde a sinais químicos, mecânicos e energéticos, e qualquer leitura isolada de um componente perde parte do contexto. A citoesqueleto funcao só faz sentido quando vista como sistema, não como catálogo de peças.

Galeria
-

Citoesqueleto - microtubulos e microfilamentos - Biologia Celular ... -

citoesqueleto, biologia & enem | Carboidratos bioquimica, Biologia ...
