Como As Aves Migratórias Podem Se Orientar Durante Os Deslocamentos
A orientação das aves migratórias é um sistema redundante, não um único mecanismo
A maioria dos textos que você encontra por aí vai te dizer que as aves usam o campo magnético terrestre. Isso está correto, mas é como se você dissesse que um aviador usa o painel de controle sem mencionar que ele também consulta os mapas, olha para o sol e usa pontos de referência visuais. As aves migratórias cruzam rotas de milhares de quilômetros usando múltiplos sistemas sensoriais em paralelo, e a beleza disso está justamente na redundância. Se um canal falha, os outros assumem. O que acontece na prática é que o mecanismo principal varia conforme a luz disponível. Durante o dia, o sol funciona como bússola, mas não uma bússola simples. A ave precisa compensar o movimento aparente do sol ao longo do tempo, o que exige um relógio biológico sincronizado com o fuso horário. Sem esse ajuste, a navegação solar produziria erros de dezenas de graus a cada hora de voo. À noite, elas usam as estrelas. Estudos clássicos com corujas-em-cinzas em planetários móveis mostraram que as aves aprendem a orientação estelar durante a primeira primavera de vida, e se o firmamento for deslocado artificialmente, elas viram na direção errada proporcionalmente ao desvio imposto.
Como as aves migratórias podem se orientar durante os deslocamentos: os pilares técnicos
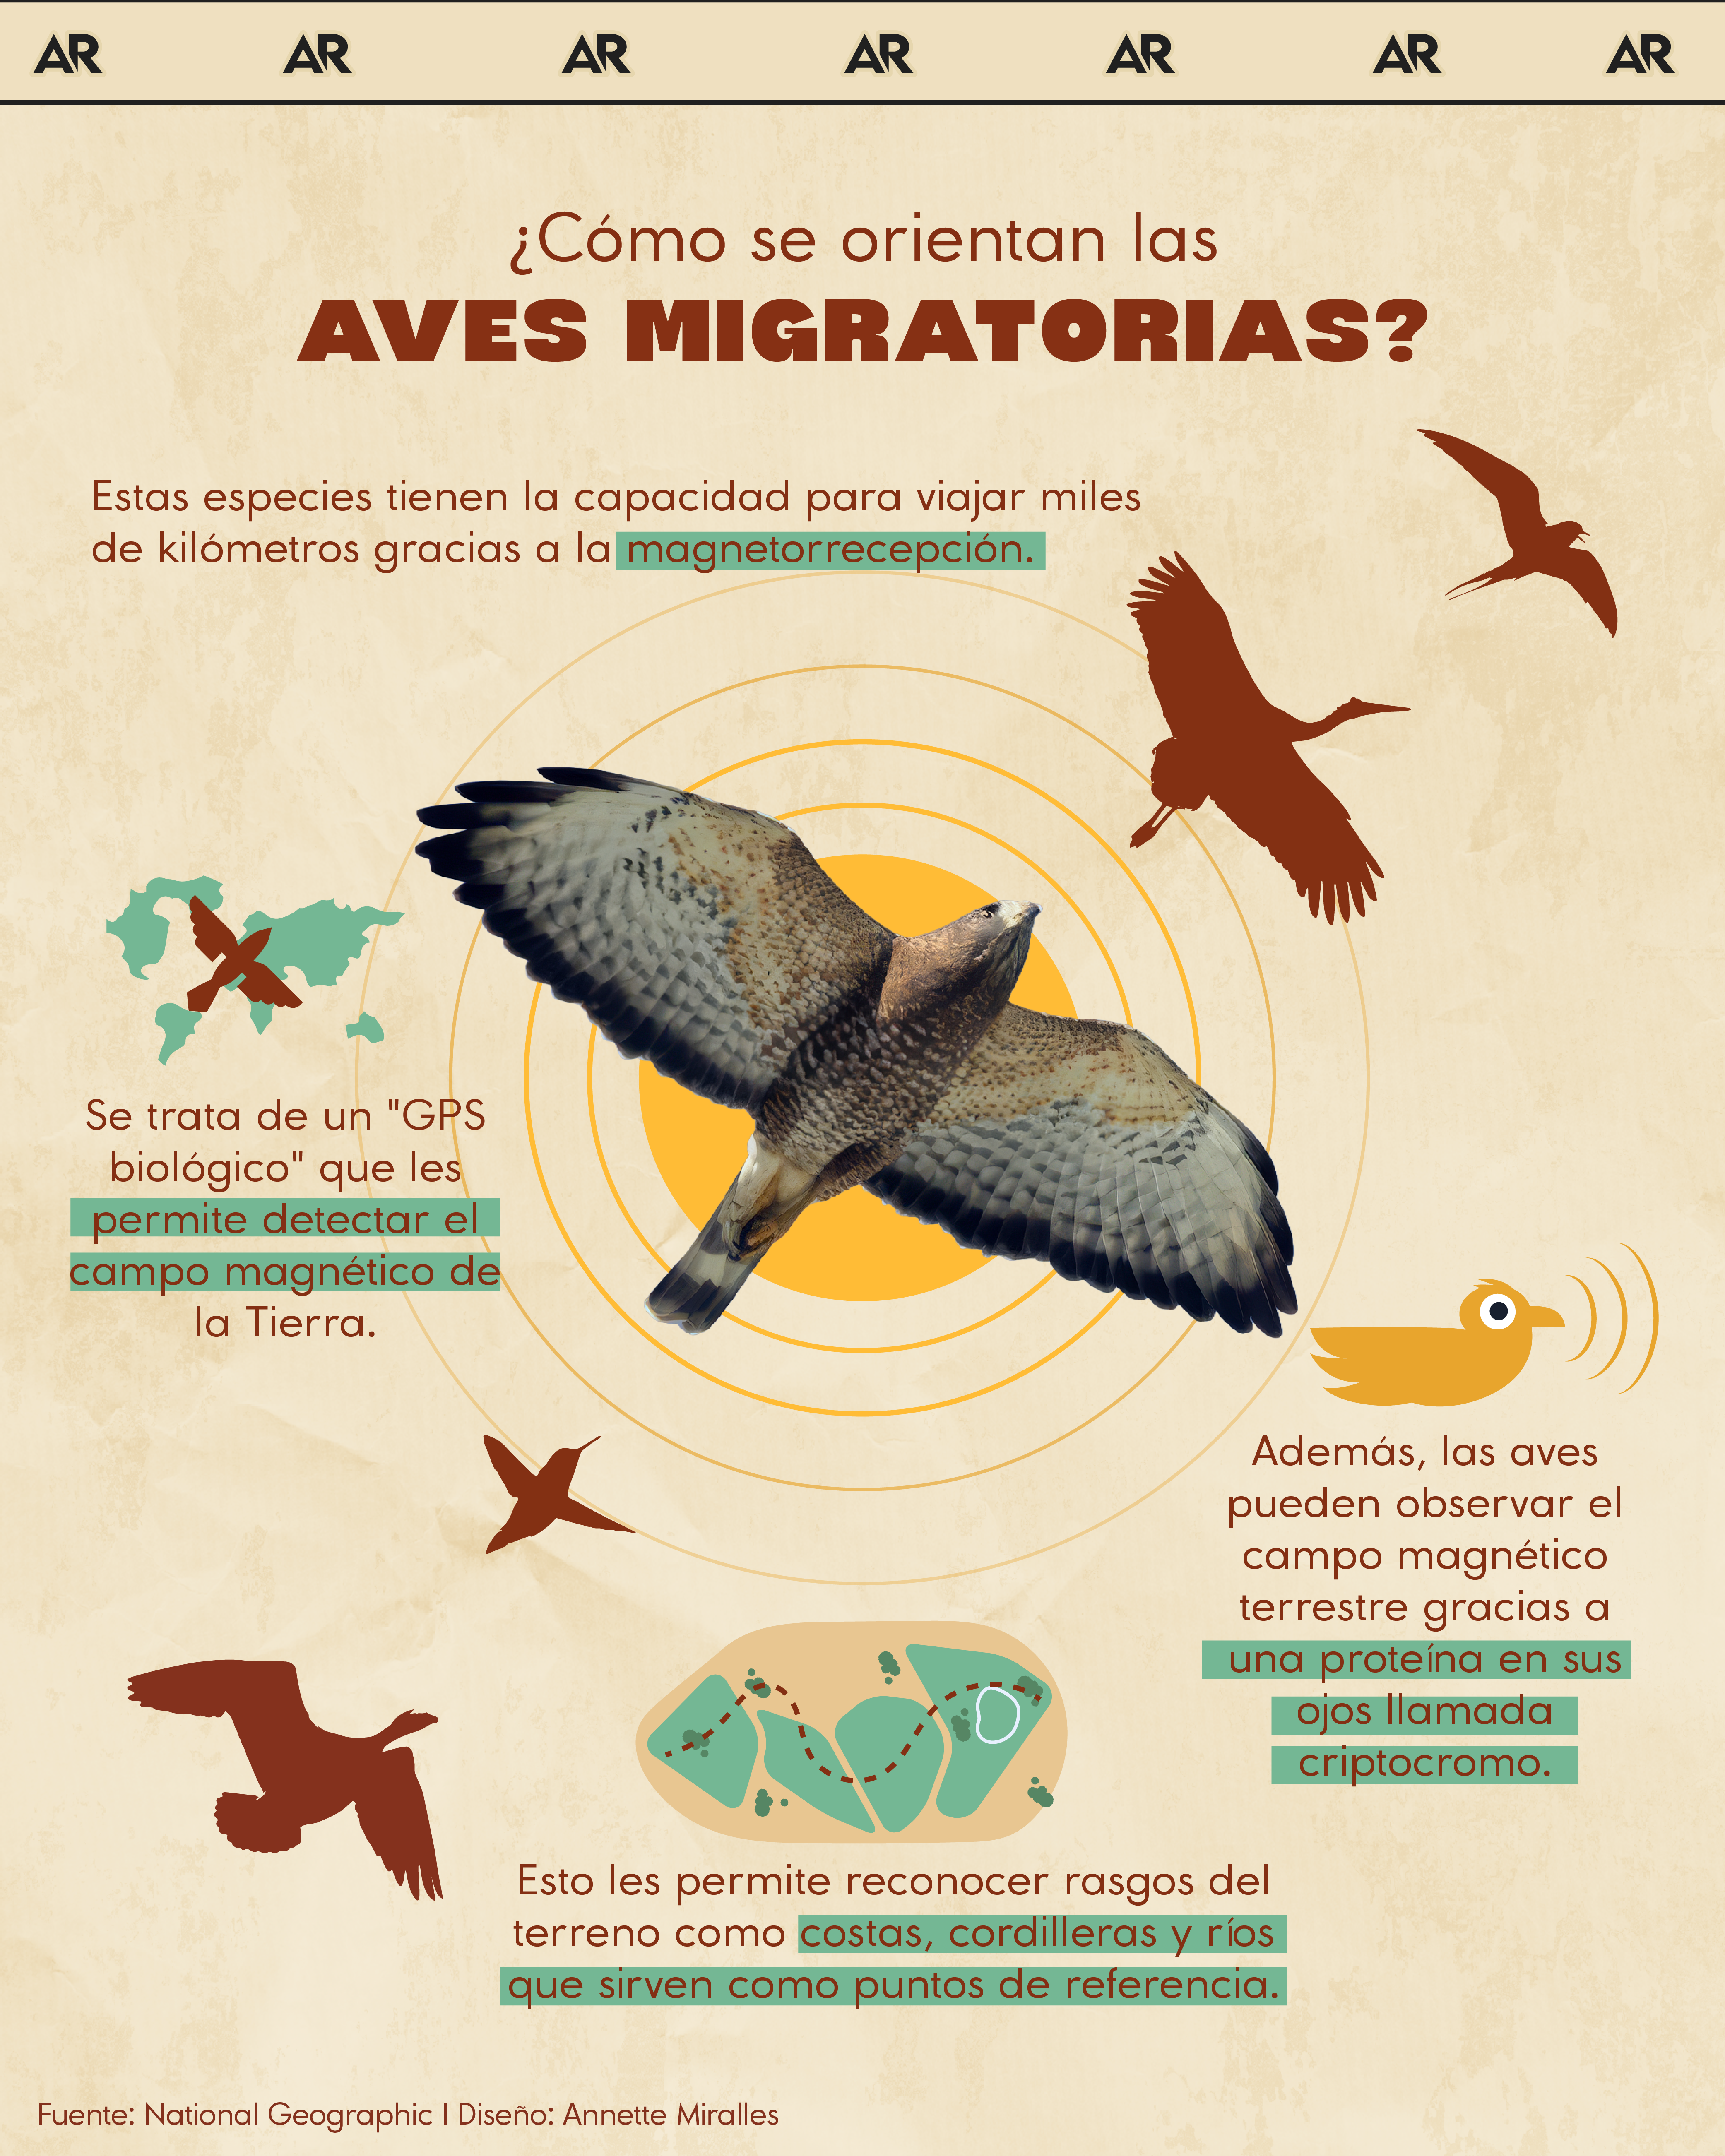
O sistema magnetorreceptivo é o mais discutido e também o mais complexo de entender em nível fisiológico. A hipótese predominante hoje envolve criptocromos na retina, proteínas sensíveis à luz azul-verde que, quando excitadas, geram pares de radicais cujos estados quânticos são influenciados pelo campo magnético local. Isso cria um padrão visual que a ave percebe como uma sobreposição ou brilho diferencial no campo de visão, essencialmente uma bússola interna ancorada na cabeça. Outro mecanismo proposto, ainda sob investigação ativa, envolve magnetitas em células nervosas do bico e do septo nasal, funcionando como sensores de intensidade campo-magnética em vez de direção. O que poucos mencionam é a diferença entre inclinação magnética e intensidade total do campo. Aves como o melro-comum e espécies similares usam a inclinação das linhas do campo — o ângulo entre a linha do campo e a superfície terrestre — como direção, não os polos magnéticos norte e sul da forma como entendemos uma bússola comum. Isso significa que um pássaro no hemisfério norte sabe que está "mais perto do polo" quando as linhas do campo apontam para baixo, mas a informação é qualitativa, não numérica. Já a intensidade do campo fornece informações de latitude, funcionando como um termômetro indireto da posição geográfica. A altitude da ave não interfere nesses dados, mas a atividade solar e as tempestades geomagnéticas sim. Durante eventos de tempestade magnética forte, observamos desorientação documentada em colônias de andorinhas e em rotas de passeriformes noturnos, com aumentos de até 40 por cento em taxas de deriva da trajetória em relação ao normal. A navegação por relevo e costeiro é a camada mais óbvia, mas também a mais mal compreendida. Aves costeiras como os maçaricos utilizam linhas de costa, rios e cadeias montanhosas como corredores visuais. O problema é que isso só funciona onde o relevo é pronunciado e visível. Sobre oceanos abertos, desertos e tundras sem marcações, esse sistema simplesmente não existe. Nesses trechos, a orientação celeste e magnética é obrigatória. Aí entra a questão da calibração cruzada: o sistema solar ou estelar precisa ser periodicamente calibrado contra o campo magnético local, e o campo magnético, por sua vez, recebe ajustes finos a partir de mapas de intensidade conhecidos. Esse processo de calibração não é instantâneo. Observações em gaiolas de treinamento com rotatórios show que aves jovens levam entre três e cinco noites para ajustar o defeito angular introduzido experimentalmente, e aves adultas ajustam mais rápido, mas ainda levam cerca de uma noite de testes práticos.
O olfato também entra nessa equação de forma contraintuitiva. Pesquisas com pombos-correio e com fragatas demonstraram que o cheiro do vento carrega informações de gradiente ambiental que permitem a construção de um mapa olfativo tridimensional. Quando o odor foi mascarado com zircônio em experimentos controlados, a precisão de retorno aos ninhos caiu significativamente, especialmente em dias com vento fraco e baixa turbulência atmosférica, onde outras pistas visuais eram escassas. Isso não significa que todas as aves migram cheirando o caminho. A importância relativa do olfato varia entre espécies. Passeriformes como as toutinegras dependem menos dele que columbiformes, mas mesmo nessas espécies ele contribui como backup, não como sistema primário.
Erros comuns ao estudar como as aves migratórias podem se orientar durante os deslocamentos
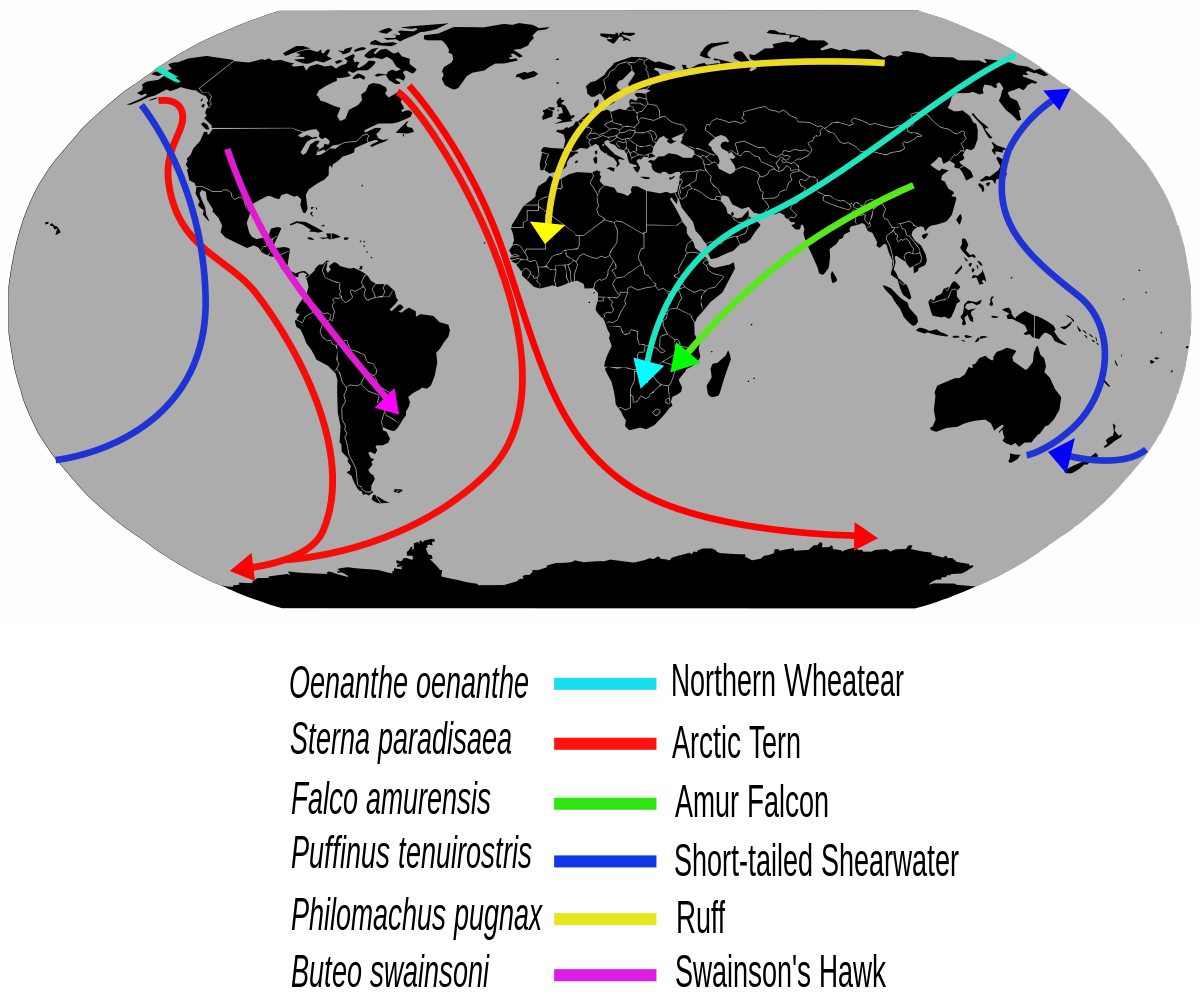
O erro mais frequente é tratar a orientação como se fosse um único sentido fixo. Ela não é. É um conjunto de procedimentos que a ave seleciona dinamicamente conforme a disponibilidade de luz, condições climáticas, fase do ciclo migratório e experiência individual. Uma ave jovens na primeira migração confia mais em pistas globais como o campo magnético e a posição do sol. À medida que acumula experiência, passa a integrar sinais locais de menor escala, como padrões de vento dominantes e odores regionais. Esse amadurecimento sensorial é gradual e varia dentro de populações, o que explica por que estudos que generalizam resultados de uma única espécie para ordens inteiras costumam falhar. Outro erro crasso é assumir que a declinação magnética é constante. Ela muda ano a ano em escalas de graus, e algumas regiões passam por variações mais abruptas durante movimentos de pontos de equilíbrio do campo. Aves que vivem décadas e cruzam rotas fixas precisam ajustar seus mapas internamente. Estudos de marcação com anéis e rastreamento por geolocalizadores mostram que populações de andorões-dos-poeiros que invernam na África e reproduzem na Europa mantêm trajetórias consistentes apesar das mudanças anuais de declinação, sugerindo algum tipo de recalibração contínua ou uso de referenciais que não dependem diretamente da bússola magnética bruta. Quando se trata de aplicar esse conhecimento na prática, seja para monitoramento, conservação ou modelagem de rotas, o obstáculo não é teórico. É metodológico. Geolocalizadores de luminosos, por exemplo, estimam latitude e longitude a partir da duração do crepúsculo, mas produzem erros sistemáticos em épocas de solstício e em latitudes altas, onde o sol demora mais para se pôr. Eu já passei semanas tentando conciliar dados de rotas de testudos-comuns com previsões baseadas apenas em inclinação magnética, e o descompasso era de mais de cem quilômetros. A solução foi incorporar dados de intensidade do campo magnético do modelo World Magnetic Model na versão mais recente, cruzar com temperaturas de superfície do mar e ajustar com observações de vento em altitude do reanálise do ERA5. O resultado reduziu o erro médio da trajetória projetada para cerca de quarenta quilômetros, o que faz diferença real quando se tenta prever áreas de parada migratória para fins de proteção.
Se você está lendo isso com interesse em modelagem ou conservation planning, preste atenção a um detalhe prático: aves costeadoras que seguem vales fluviais e linhas de costa tendem a desviar drasticamente quando ocorrem tempestades frontais ou nebulosidade persistente por dias seguidos. Nesse cenário, a perda de referenciais visuais combinada com ventos adversos força o uso exclusivo de navegação celeste e magnética, e é exatamente aí que erros de calibração se tornam visíveis nos rastreamentos. A recomendação é não confiar em modelos que usem apenas campo magnético como variável única. Inclua cobertura de nuvem, velocidade do vento em múltiplas altitudes, topografia e sazonalidade luminosa. Sem esses fatores, a previsão de rotas tem margem de erro que pode superar duzentos quilômetros em condições adversas.
Limitações reais do que sabemos
O mecanismo molecular exato da magnetorrecepção em aves ainda não foi mapeado com a precisão que gostaríamos. Os criptocromos são candidatos fortes, mas ainda não conseguimos isolar a resposta celular completa em tecido vivo de ave migratória. Já o sistema de magnetitas no bico encontrou contestação crescente: estudos posteriores não conseguiram replicar de forma consistente a presença de corpúsculos magnéticos funcionais nas proporções necessárias parasensoriamento direcional. Isso significa que parte do que está em livros didáticos pode estar sendo revisada nos próximos anos. A navegação por olfato é comprovada em pombos, mas seu papel em passeriformes de longa distância permanece em discussão. Experimentos com mascaramento olfativo em campos controlados produzem resultados mistos quando replicados com espécies diferentes. Não há consenso. Da mesma forma, a ideia de um "mapa" cognitivo inato versus aprendidos varia entre populações. Algumas populações de marrecos-real exibem rotas hereditárias fixas, enquanto outras linhagens adaptam rotas anualmente conforme condições de vento e disponibilidade de recursos. Tratar tudo como se fosse genético ou tudo como se fosse aprendido é simplificação perigosa. O que funciona bem para prediction em curto prazo e para compreensão ecológica básica é usar modelos multi-canal que agregam magnetometria, astronomicidade, relevo, cobertura de nuvens e dados de vento. Modelos puramente geomagnéticos falham em contextos de tempestade solar ou em voos noturnos sobre oceanos sem referências visuais. Modelos puramente astronômicos falham em céus encobertos. O caminho mais produtivo atualmente, e o que tem produzido os melhores resultados em estudos aplicados de conservação, é a integração desses sinais com dados empíricos de rastreamento real, porque só assim conseguimos capturar a flexibilidade comportamental que as aves demonstram nos registros de campo.
Galeria
-
O Dia Mundial das Aves Migratórias 🌍 celebra-se anualmente, no segundo ... -
Cinco fatos curiosos sobre as aves migratórias - Fauna News -
Aves migratorias: cómo sobreviven en un mundo antrópico

