Como Funciona A Bomba De Sodio E Potassio
A bomba de sódio e potássio na prática
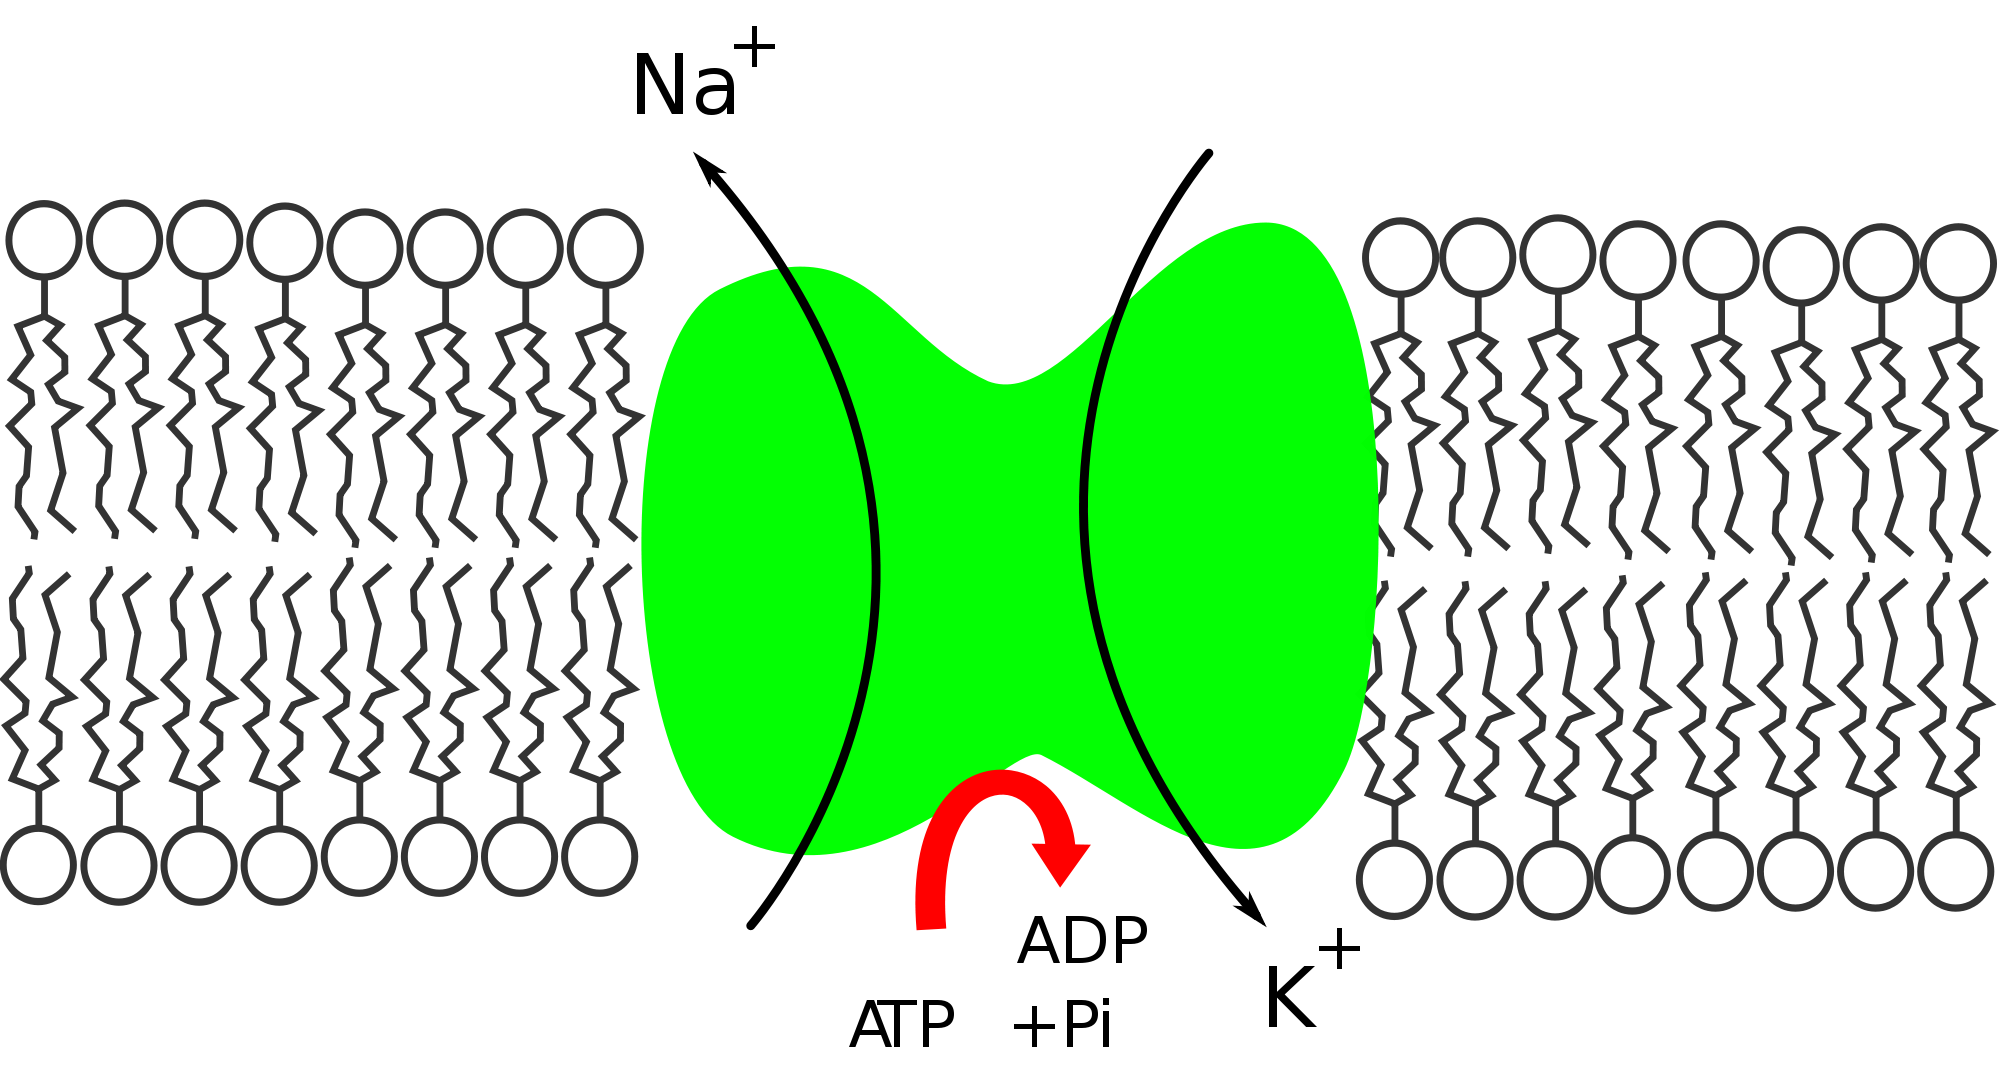
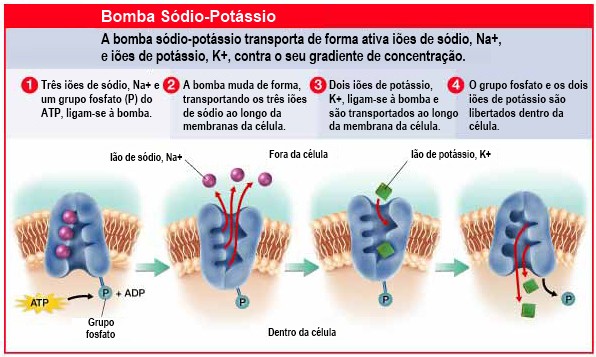
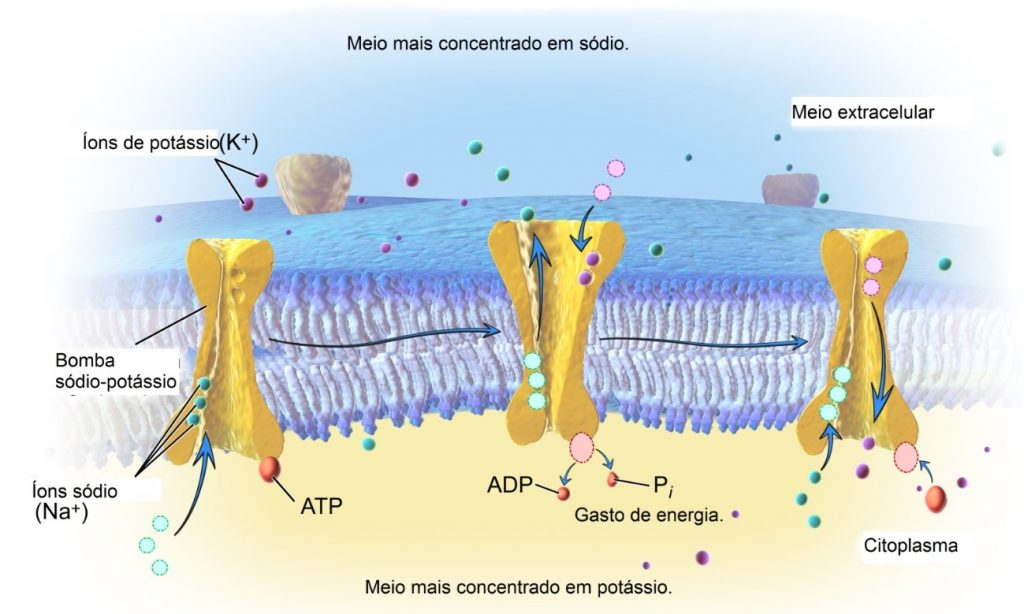
O primeiro erro que vejo todo mundo cometer é tratar a bomba de sódio e potássio como se fosse só um detalhe da aula de biologia. Ela é o motivo pelo qual seu nervo consegue disparar um potencial de ação depois de uma refeição salgada sem entrar em colapso. Sem ela, o gradiente que mantém o interior da célula negativo desaparece em minutos. A célula incha, perde a capacidade de comunicação e para de funcionar. A mecânica é direta quando você para de olhar só o diagrama colorido do livro. A proteína transmembrana, chamada formalmente de Na+/K+-ATPase, usa um ATP por ciclo. Ela abre para o citosol, captura três íons sódio, hidrolisa o ATP, muda de conformação, solta os sódios lá fora, captura dois potássios do meio extracelular, libera-os dentro da célula e volta ao estado original. Três saem, dois entram. Isso gera uma saída líquida de carga positiva, o que contribui diretamente para o potencial de membrana em repouso, que em neurônios típicos fica na faixa de menos 70 milivolts. O detalhe que a maioria não vê é que a bomba não é só um mecanismo de manutenção. Ela é o motor primário que sustenta todos os outros transportadores secundários da membrana. O cotransportador SGLT1 de glicose no intestino, o trocador Na+/Ca2+ no miocárdio, o sistema de captação de GABA nos terminais sinápticos — tudo isso roda no gradiente de sódio que a bomba cria. Se você tirar a bomba do quadro, nenhum desses sistemas sobrevive mais do que alguns segundos.
Num ciclo completo, a hidrólise do ATP leva cerca de 10 milissegundos. A bomba opera em torno de 100 a 200 ciclos por segundo em tecidos com alta demanda, como néfrons nos rim e células da mucosa intestinal. Isso representa algo em torno de 20 a 40 por cento do consumo total de ATP de uma célula típica. Em neurônios, o número sobe porque o retomo dos neurotransmissores e a restauração dos gradientes após cada potencial de ação exigem trabalho contínuo. Um ponto que ninguém menciona o suficiente: a bomba é sensível à temperatura e à concentração intracelular de sódio de forma não linear. Quando o sódio interno sobe, a afinidade da bomba pelo substrato aumenta, e a taxa de transporte acelera. É um mecanismo de retroalimentação natural. Mas se o potássio extracelular ultrapassar certos limiares, como acontece em insuficiência renal avançada, a bomba entra em confusão. Ela continua tentando manter o gradiente, mas o potássio extra se acumula e começa a despolarizar a membrana de forma crônica. O resultado prático é fadiga muscular, arritmias e, em casos graves, parada cardíaca. Eu já vi isso no laboratório quando estávamos monitorando fibras musculares esqueléticas isoladas em soluções com potássio progressivamente mais alto. A gente pensava no início que o problema era a despolarização passiva da membrana. Quando registramos o fluxo direto de sódio e potássio usando eletrodos seletivos de íons, ficou claro que a bomba estava tentando compensar até o limite operacional dela. A partir de certo ponto, elevar a concentração externa de K+ para 15 milimoles por litro fez a bomba travar parcialmente porque a direção de gradiente do potássio mudou. A gente teve que trocar a solução e adicionar ouobaina em concentração controlada só para confirmar que a despolarização residual vinha mesmo da bomba e não de canais vazando. Esse foi o momento em que eu percebi que a literatura simplify demais o papel da bomba e ignora situações onde ela deixa de ser a solução e passa a ser parte do problema.
Digoxina e ouobaina inibem a bomba ao se ligarem ao domínio extracelular da subunidade alpha. Isso é usado clinicamente na insuficiência cardíaca porque, ao reduzir a atividade da bomba, o sódio intracelular sobe, o trocador Na+/Ca2+ opera de forma diferente, e o cálcio intracelular no músculo cardíaco aumenta, gerando contratilidade maior. O efeito é real e mensurável. O risco também é. A janela terapêutica é estreita. Um excesso de inibição desidrata a célula, altera a condução elétrica e pode provocar arritmias ventriculares fatais em horas, não em dias. Outro aspecto negligenciado é a distribuição heterogênea da bomba entre tipos celulares. Neurônios e túbulos renais concentram a proteína em regiões específicas da membrana, como a borda em escova do epitélio tubular proximal. Células de Purkinje no cerebelo têm densidades diferentes nas dendrites versus no soma. Isso significa que a bomba não age uniformemente. Em condições patológicas como isquemia, as regiões com maior densidade de bomba mantêm o gradiente por mais tempo, enquanto outras áreas colapsam primeiro. A consequência prática é que o dano isquêmico não é homogêneo, e isso influencia diretamente a janela de intervenção em AVCs e infartos. Se você está estudando isso para prova ou para aplicação clínica, o caminho mais direto é deixar de lado a ideia de que a bomba é apenas um bomba de íons. Ela é um regulador central do volume celular, do potencial de membrana, do transporte secundário e da sinalização intracelular de cálcio. Ignorar essa interconnectedness é o motivo pelo qual tanta gente entende a teoria mas não consegue prever o que acontece num paciente com hiponatremia grave ou num tecido submetido a hipóxia prolongada.

A parte mais útil na prática é lembrar que qualquerthing que altere o ATP celular — hipóxia, toxinas mitocondriais, deficiências de magnésio — atinge a bomba primeiro. O magnésio em particular é cofator obrigatório para a ATPase. Sem magnésio suficiente, a bomba nunca hidrolisa o ATP corretamente, independentemente da disponibilidade de sódio ou potássio. Isso explica casos clínicos onde os níveis séricos de sódio e potássio parecem normais mas a função celular está comprometida. O problema não é o substrato. É o cofator.
Galeria
-
Bomba de Sódio e Potássio - Análises Clínicas.com -
Transporte ativo na membrana plasmática: bomba de sodio e potássio -

Explique porque a bomba de sodio e potassio e transporte ativo e ... -

Bomba de sódio e potássio: o que é, função - Brasil Escola
