Componente Do Nucleo Celular

Componentes do núcleo celular: o que realmente importa na prática
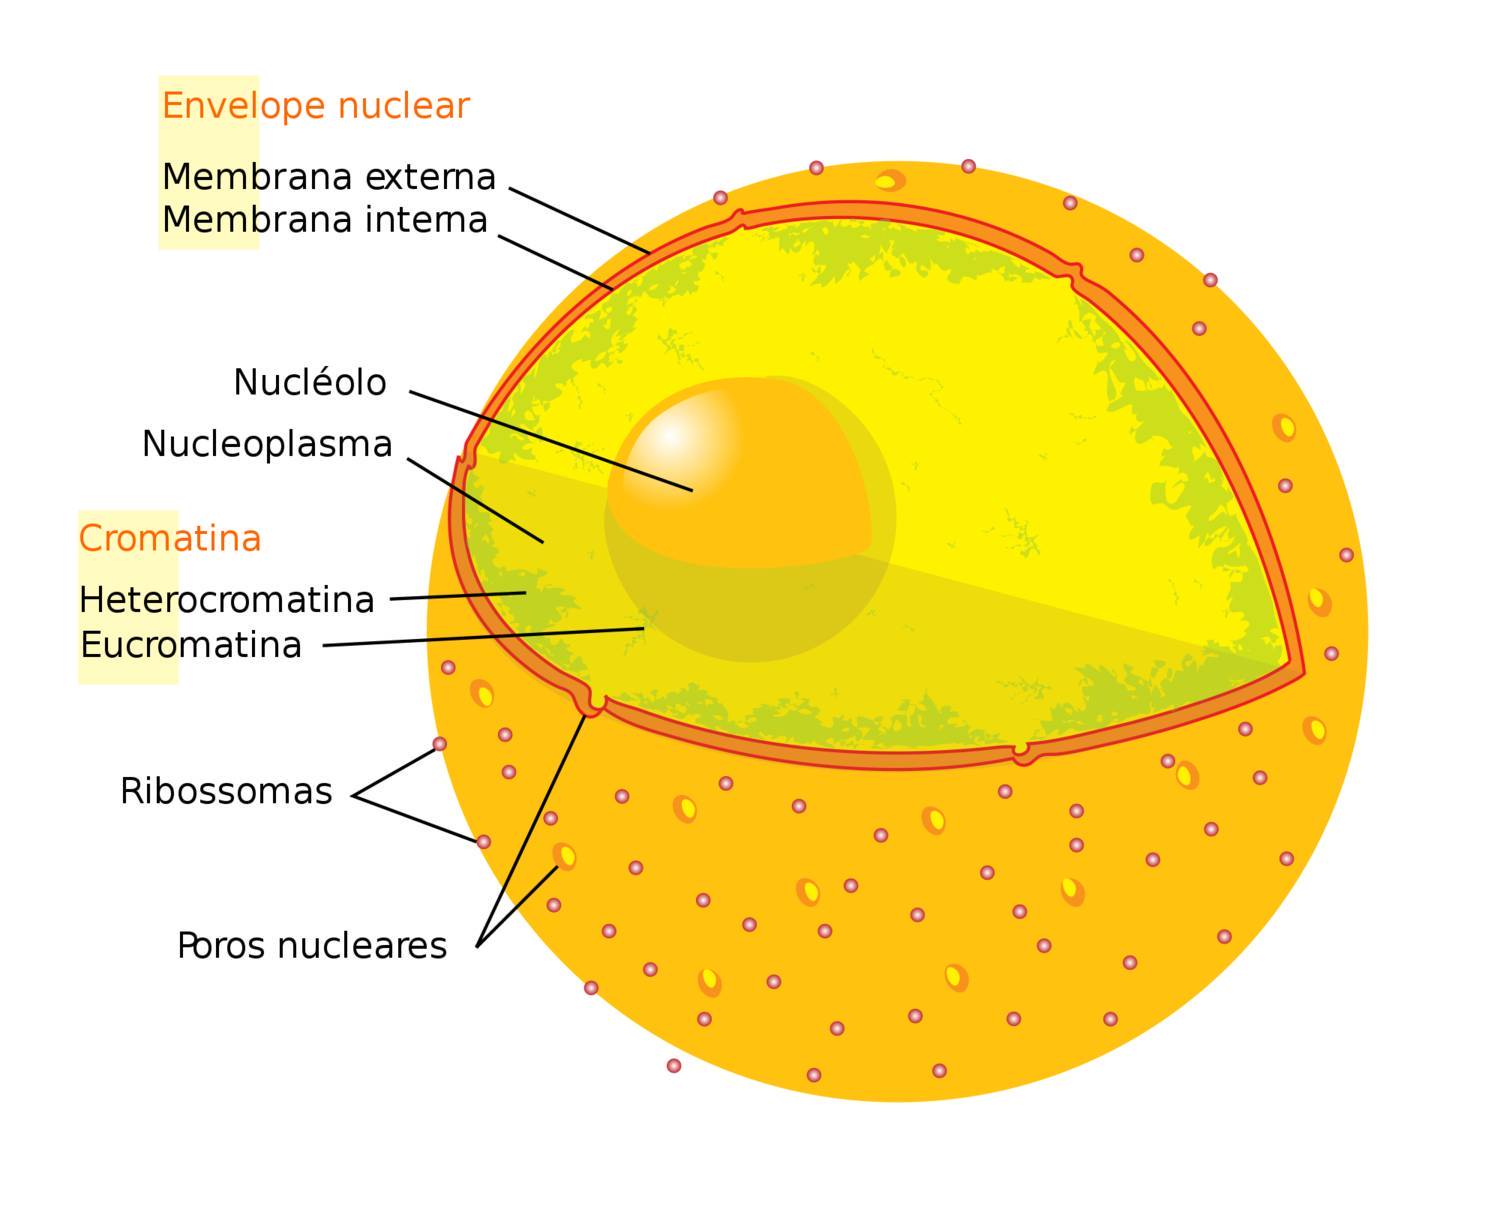
Achei que saber a lista de organelas era suficiente para trabalhar com biologia celular. Aprendi rápido que não era. Quando você começa a manusear núcleos isolados, fazer FRAP em proteínas nucleares ou interpretar imagens de microscopia de super-resolução, percebe que o núcleo é muito mais do que um saco de cromatina. Cada componente tem propriedades físicas que complicam a vida quem está na bancada. O núcleo não é homogêneo. Ele tem membrana dupla com poros, nucleoplasma, cromatina organizada em eucromatina e heterocromatina, nucléolos, corpos de Cajal, nuCleoli subcomponentes como a zona fibrilar central e o componente granuloso, e uma rede de lâmina nuclear por dentro. Esses componentes não flutuam livres — eles se organizam por separação de fases líquida-líquida e por interações com a lâmina. Entender isso muda completamente como você planeja um experimento. O que a maioria dos protocolos ignora é que a composição do nucléolo varia conforme o ciclo celular e o estado metabólico da célula. Células em crescimento rápido têm nucléolos grandes e ativos. Células estressadas ou em quiescência reduzem o nucléolo drasticamente. Se você está fazendo imunofluorescência e acha que seu anticorpo não está funcionando, olhe primeiro se as células estão no estado certo.
A membrana nuclear também não é um envelope passivo. Os complexos do poro nuclear têm uma permeabilidade seletiva baseada em tamanho e em sinais de localização nuclear. Moléculas abaixo de cerca de 40 kDa passam livremente. Acima disso, precisa de importina e GTP hidrolisado. Na prática, isso significa que a microinjeção de proteínas fluorescentes no núcleo depende completamente do tamanho de fusão que você escolheu. Já fiz a experiência errada una vez injetando uma GFP sola achando que entrava sozinha. Não entrava. A proteína ficava citoplasmática e eu gastei três dias tentando entender o que estava errado antes de perceber o erro básico. O nucleoesqueleto, muitas vezes chamado de nucleosquelto ou matriz nuclear, é outro ponto que causa confusão. Ele não é uma estrutura rígida como o citoesqueleto. É uma rede dinâmica de proteínas como emarina, laminas e proteínas associadas à cromatina que dá suporte mecânico e organiza domínios topológicos. Quando você trata células com dragundomycina ou bxolticina para desenmascarar a matriz, os resultados mudam dependendo do tipo celular. Células epiteliais são mais resistentes do que linhagens hematopoéticas, por exemplo. Os corpos de Cajal são menores e frequentemente esquecidos, mas relevantes se você trabalha com snRNP e processamento de RNA. Eles concentram enzimas de modificação de snoRNA e snRNA. Se seu foco é splicing ou modificação de RNA, ignorar os corpos de Cajal é perder informação importante sobre onde as reações acontecem de fato.
A heterocromatina pericentromérica e a heterocromatina constitutiva também se comportam de formas distintas. A primeira pode ser dinâmica em certos contextos de diferenciação. A segunda é mais estável. Diferenciar uma da outra no laboratório exige marcadores adequados — H3K9me3 para heterocromatina constitutiva e H3K27me3 para a facultativa, basicamente. Usar apenas DAPI e assumir que regiões mais escuras são necessariamenteheterocromatina é um erro comum que vi muitos colegas cometerem.

Problema real que encontrei e como resolvi
Trabalhando com CUT&RUN para mapear associação de proteínas à cromatina, tive um problema recorrente com núcleos rompendo durante a step de incubação com anticorpo. Os núcleos pareciam intactos após a homogeneização, mas durante a centrifugação para remover detritos citoplasmáticos, a fração nuclear perdia integridade. O resultado era sinal de fundo altíssimo e perda de resolução. A solução foi ajustar dois parâmetros que raramente são discutidos em manuais: a concentração de MgCl no buffer de lavagem e o tempo de homogeneização. Reduzir o Mg² de 2 mM para 1 mM e adicionar 0,1% de BSA no buffer de corte ajudou a estabilizar a membrana nuclear. O tempo de homogeneização com Dounce também precisou ser reduzido de 25 para 15 passadas no pestelo A, porque linhagens celulares diferentes respondem de forma distinta ao cisalhamento. Com esses ajustes, o sinal de fundo caiu cerca de 70% e a relação sinal-ruído melhorou significativamente. Outro detalhe prático: sempre verifique a pureza nuclear com azul de tripan ou com DAPI e contagem em câmara de Neubauer antes de prosseguir. Núcleos contaminados com mitocôndrias ou fragmentos de membrana plasmática comprometem qualquer ensaio downstream. Leva dois minutos e evita horas de frustração.
O que os livros não mostram sobre isolamento nuclear
Isolar núcleos puros parece simples até você tentar com tecidos difíceis. Fígado, músculo cardíaco e tecido conjuntivo exigem tratamentos enzimáticos prévios antes da homogeneização. Colagenase e tripsina em concentrações adequadas ajudam a dissociar a matriz extracelular. Mas o excesso de enzima danifica a membrana nuclear diretamente. O equilíbrio é fino e depende do tempo de incubação, da temperatura e da densidade celular inicial. A purificação por gradiente de sacarose é o padrão-ouro, mas tem limitações práticas. Gradientes de 1,7 M sobre 2,3 M funcionam bem para a maioria das linhagens, mas núcleos de células vegetais ou de organismos com parede celular exigem abordagens completamente diferentes. E núcleos de células adiposas flutuam de forma imprevisível devido ao conteúdo lipídico residual. Nesses casos, uma filtração em nylon de 30 µm antes do gradiente melhora muito a recuperação. Também é importante notar que o protocolo de lise suave com Triton X-100 a 0,1% não remove apenas o citoplasma. Ele também solta proteínas nucleoplasmáticas periféricas que podem contaminar preparações se você precisa de núcleos limpos para ensaios bioquímicos. Se o seu objetivo é estudar a lâmina ou proteínas estruturais, considere uma lavagem adicional com alta salinidade para remover componentes aderentes sem romper a membrana.
Pegadinhas comuns ao estudar componente do nucleo celular
A primeira pegadinha é confiar cegamente em anticorpos para marcação de componentes nucleares. Anticorpos anti-lamina frequentemente apresentam reatividade cruzada com filamentos intermediários citoplasmáticos em células de certos tipos. Sempre faça um controle de knockout ou knockdown quando possível. Um silenciamento de LMNA deve abolir o sinal nuclear esperado; se não abolir, o anticorpo não é específico. A segunda pegadinha diz respeito à fixação. Fixação com PFA a 4% por 10 minutos preserva bem a arquitetura geral, mas pode mascarar epítopos importantes. Fixação com metanol a -20°C por 5 minutos melhora a penetração de anticorpos, mas distorce a forma dos nucléolos. Não existe fixação perfeita. Escolha com base no que você quer visualizar e aceite as perdas. Testar ambos os métodos em paralelo e comparar leva cerca de uma hora e resolve muita dúvida. A terceira pegadinha envolve a interpretação de FRAP. Recuperar 80% do sinal em dois minutos não significa necessariamente que a proteína é altamente móvel. Pode significar que há um grande pool ligado que se desliga lentamente. Incluir um controle de fotobranqueamento completo e um modelo de difusão livre versus ligação reversa no ajuste é essencial para não tirar conclusões equivocadas.
Quando abandonar o método padrão
Nem todo componente nuclear se comporta conforme o esperado em protocolos convencionais. A cromatina muito compacta em heterocromatina constitutiva responde mal à digestão por micrococca nuclease em ensaios de acessibilidade. O enzyme corta regiões abertas rapidamente, mas as regiões fechadas permanecem protegidas por longos períodos. Se você precisa mapear acessibilidade em regiões heterocromáticas, considere ATAC-seq em vez de MNase-seq. O Tn5 transposase lida melhor com a compactação e exige menos material de partida. Outro caso onde protocolos padrão falham é o estudo de componentes do poro nuclear em células com alteração na expressão de nucleoporinas. Linhagens com downregulação de NUP98, por exemplo, apresentam poros estruturalmente defeituosos que ainda permitem passagem seletiva. Microscopia eletrônica é necessária para confirmar a integridade morfológica. Imunofluorescência sozinha não revela o defeito. E quando o tecido de partida é escasso, como em biópsias pequenas ou células primárias raras, a recuperação nuclear pode ser insuficiente para análise multiplex. Nesse cenário, métodos amplificados como seqFISH ou MERFISH permitem visualizar RNAs nucleares específicos com sensibilidade muito maior do que técnicas baseadas em hibridização convencional. O custo é maior em tempo de preparação e em análise computacional, mas a sensibilidade compensa quando o material é limitado.
O núcleo celular continua sendo uma das estruturas mais complexas da célula e a dificuldade prática está justamente em conciliar a teoria com o que acontece no tubo de ensaio. Os componentes existem, as ferramentas melhoram, mas a variabilidade biológica e as armadilhas metodológicas estão sempre presentes. Anotar detalhes como concentração de Mg², tempo de homogeneização e lote de anticorpo no caderno de laboratorio faz mais diferença do que muitos sabem.
Galeria
-

Núcleo Celular: Funciones, Estructura Y Características – TYURTU -
Núcleo celular -

Núcleo Celular | Biologia celular, molecular e genética
