Conjunto De Reações Químicas Que Ocorrem Nos Seres Vivos

O que acontece quando você tenta entender metabolismo de verdade
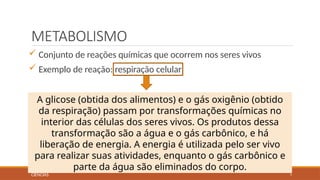
A maioria dos livros define metabolismo de forma simplista, e isso cria uma visão completamente equivocada de como as células realmente funcionam. Um conjunto de reações químicas que ocorrem nos seres vivos não é apenas um catálogo de vias metabólicas organizadas em diagramas bonitos de livro didático. Na prática, é um sistema dinâmico onde cada reação depende de dezenas de outras, e pequenos desvios em uma única enzima podem derrubar todo o equilíbrio. Eu já passei por isso na bancada quando trabalhava com cultures celulares e medições de consumo de oxigênio em tempo real. O metabolismo divide-se basicamente em catabolismo e anabolismo, mas essa divisão é mais útil para estudar do que para descrever o que acontece dentro de uma célula. Em qualquer momento, as mesmas vias que quebram glicose para gerar ATP também fornecem precursores para síntese de aminoácidos e nucleotídeos. A separação é artificial. O que importa mesmo são os pontos de controle: as reações irreversíveis catalisadas por fosfofrutocinase, piruvato quinase e citrato sintase, por exemplo. Elas são os gargalos reais do sistema. Uma coisa que poucos mencionam é que a regulação alostérica não funciona como um interruptor ligar-deslig. Ela opera como um sistema de amortecimento. Quando você aumenta a concentração de ATP na mitocôndria, a citrato sintase não para imediatamente. Ela desacelera progressivamente conforme o potencial de membrana muda. Isso significa que medir o metabolismo com base apenas na concentração de metabólitos finais dá uma imagem muito distorcida do que está acontecendo.
Eu tive um problema específico há alguns anos. Estávamos medindo a taxa glicolítica em linhagem de hepatócitos isolados e os dados simplesmente não fechavam. A teoria previa um consumo de glicose de cerca de 2 nmol por minuto por 10^6 células, mas o que registrávamos era quase metade disso. Passamos duas semanas revisando protocolos, testando diferentes lotes de meios de cultura, verificando a viabilidade celular. Nada resolvia. A resposta foi mais simples do que parecia: o pH do meio estava levemente ácido devido ao acúmulo de CO na estufa, e a anidrase carbônica endógena estava deslocando o equilíbrio dos bicarbonatos. Isso afeta diretamente a atividade da piruvato desidrogenase. A correção foi usar um meio tampado com HEPES e trabalhar fora da estufa, em câmara com atmosfera controlada. O consumo de glicose imediatamente subiu para o esperado.
As vias principais e como elas se conectam na prática
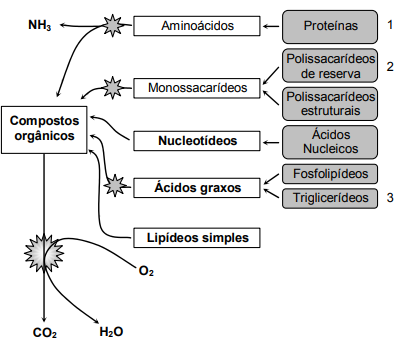
Glicólise, ciclo de Krebs e cadeia transportadora de elétrons formam o tripé energético, mas a gliconeogênese, a via das pentoses fosfato e a beta-oxidação não são caminhos paralelos. Elas são redes de contingência. Quando a glicose escasseia, a célula não simplesmente "liga" a gliconeogênese como se fosse um modo alternativo. Ela desliga a fosfofrutocinase via frutose-2,6-bisfosfato e simultaneamente ativa a frutose-1,6-bisfosfatase. Se uma dessas regulções falhar — e falham com frequência em condições de estresse oxidativo —, você tem um ciclo futile gastando ATP sem produzir nada útil. A via das pentoses fosfato é outro caso onde a interpretação errada é comum. Muita gente encara ela como fonte secundária de NADPH ou de ribose-5-fosfato. Na verdade, em células com alta demanda redox, como macrófagos ativados ou células epiteliais intestinais, essa via pode representar mais de 30% do consumo de glicose. E o NADPH produzido ali não serve apenas para defesa antioxidante. Ele é substrato direto para citocromo P450 no fígado e para síntese de ácidos graxos no tecido adiposo. O ciclo de Krebs em si é frequentemente ensinado como uma rota linear, mas ele opera como um conjunto de braços cruzados. O oxaloacetato entra reagindo com acetil-CoA, mas também é produto da conversão de aspartato via aspartato aminotransferase. Quando a célula precisa de biossíntese, o citrato é exportado para o citosol e clivado por ATP-citrato liase, gerando acetil-CoA citosólico. Esse passo consome ATP e gera NADPH, então ele não é gratuito. Em condições de rápida proliferação, como em linhagens cancerígenas, esse mecanismo é frequentemente sobrecarregado e o citrato acaba sendo reduzido a isocitrato e reciclado de volta à mitocôndria via citrato málico, consumindo ainda mais energia.
Erros comuns ao analisar metabolismo e como evitá-los
O primeiro erro que vejo é confiar em medições pontuais de metabólitos sem considerar o turnover. Saber que uma célula tem 5 mM de ATP diz pouco. O que importa é a taxa de renovação, que em células proliferando ativamente pode ser de segundos. Uma amostra colhida tarde demais ou processada de forma inconsistente perde completamente a informação cinética. Outro erro frequente é assumir que inibir uma enzima chave produz o efeito esperado em toda a via. A hexoquinase, por exemplo, é frequentemente alvo de estudos inibitórios, mas quando você a bloqueia, a glucocinase no fígado pode compensar parcialmente, e o fluxo redirecionado para a via das pentoses fosfato pode aumentar a produção de espécies reativas de oxigênio. O resultado líquido muitas vezes se opõe ao que se espera. Se você está começando a trabalhar com análise metabólica, o instrumento mais útil não é um espectrofotômetro de última geração. É um medidor de pH e pO de boa qualidade, calibrado antes de cada leitura. A razão é simples: quase todas as reações metabólicas produzem ou consomem prótons, e a menor variação de pH altera a cinética enzimática de forma não linear. Eu já vi dados ruins serem corrigidos simplesmente melhorando a estabilidade do tampão durante o experimento.
Quando o metabolismo convencional não explica o que você vê
Existem condições em que as vias clássicas não rendem. Células em hipóxia intensa, como tumor sólida em regiões necróticas, passam a depender fortemente da lactato desidrogenase não apenas para regenerar NAD+, mas como via de sinalização. O lactato produzido não é apenas um resíduo. Ele é exportado e absorvido por células vizinhas, onde é convertido de volta a piruvato e entra no ciclo de Krebs. Esse shuttling lactato-piruvato pode representar uma fração significativa do combustível disponível em microambientes hipóxicos. Também vale notar que nem todo o NADH glicolítico entra na mitocôndria da mesma forma. O malato-aspartato shuttle e o glicerol-3-fosfato shuttle têm eficiências diferentes. O primeiro transfere aproximadamente 2,5 ATP por NADH, o segundo cerca de 1,5. Células com alta taxa respiratória, como cardiomiócitos, priorizam o primeiro. Células que precisam de resposta rápida, como neutrófilos, usam mais o segundo. Escolher o modelo errado ao interpretar seus dados pode levar a conclusões invertidas sobre a eficiência energética. Nenhuma abordagem de análise metabólica é perfeita. Ensaios colorimétricos de metabolitos são rápidos e baratos, mas carecem de resolução temporal e são propensos a interferências de outros compostos na amostra. A espectrometria de massas com isótopos estáveis é muito mais precisa, mas exige equipamento caro, familiaridade com análise de fragmentação e tempo de processamento que pode levar dias. Se o seu objetivo é apenas saber se uma via está ativa ou não, o ensaio enzimático rápido basta. Se você precisa mapear fluxos, aí a RMN de carbono-13 ou a tracer com marcada é o caminho, mesmo com o custo e a complexidade envolvidos.
O metabolismo não é um conjunto fixo de reações. Ele se adapta, se redireciona e, em certas condições, quebra as regras que você aprendeu no manual. O importante é entender quais variáveis você consegue controlar e quais vai ter que simplesmente observar e registrar.
Galeria
-
Reações químicas: entenda o que são e como aparecem no Enem e ... -
Composição Química dos Seres Vivos | PDF | RNA mensageiro | Enzima -
Reações Químicas nas Células e Enzimas | PDF | Enzima | Reações químicas


