Considerando Se Seus Diferentes Destinos O Piruvato É Convertido Em

Para onde vai o piruvato quando a célula precisa decidir
O piruvato é um ponto de branch metabolicamente desonesto. Ele chega no final da glicólise e a célula simplesmente olha para ele sem muita clareza. O que acontece depois depende de oxigênio, da carga energética, do tecido e de sinais hormonais que muitas vezes se contradizem. Eu passei horas ajustando condições de cultura celular porque o piruvato estava sendo redirecionado de forma imprevisível, e a maior parte do problema era que ninguém estava medindo o que estava acontecendo com ele de fato. O piruvato pode seguir basicamente cinco rotas principais, e cada uma delas é ativada por condições bem específicas. A rota mais conhecida é a conversão em acetil-CoA pela piruvato desidrogenase. Isso acontece na matriz mitocondrial, requer cofatores como TPP, lipoato, FAD, NAD+ e CoA, e é um passo irreversível sob condições fisiológicas normais. A PDH é regulada por fosforilação: quando os níveis de ATP e acetil-CoA estão altos, a PDH quinase é ativada e desliga a via. Quando o NAD+ e o ADP estão disponíveis, a PDH fosfatase reativa a enzima. Em termos práticos, isso significa que em células com alta demanda oxidativa, como miócitos e neurônios, essa conversão é praticamente onipresente.
Quando o oxigênio falta ou a cadeia transportadora de elétrons está comprometida, o piruvato vai para a lactato desidrogenase. O NADH gerado na glicólise precisa ser reoxidado de alguma forma, e a redução do piruvato a lactato faz exatamente isso. Isso é o que acontece no músculo esquelético durante esforço intenso, mas também em células tumorais via efeito Warburg. O lactato não é apenas um resíduo metabólico: ele pode ser secretado e usado por tecidos vizinhos como combustível, o que torna essa rota mais importante do que muitos livros didáticos deixam transparecer. A conversão em oxaloacetato pela piruvato carboxilase é um caminho aniplerótico. Essa enzima é ativada por acetil-CoA, então quando há excesso de acetil-CoA entrando no ciclo de Krebs, a piruvato carboxilase é silenciada. Quando o acetil-CoA está baixo, ela converte piruvato em oxaloacetato, que pode repor intermediários do ciclo ou servir como precursor para gliconeogênese. Fígado e rins são os principais tecidos que dependem disso. Um detalhe que poucos mencionam: a piruvato carboxilase precisa de biotina, e deficiências nutricionais dessa vitamina podem comprometer severamente essa via sem que os sintomas sejam óbvios inicialmente. O piruvato também pode ser convertido em alanina pela alanina aminotransferase. Isso é especialmente relevante no ciclo glicose-alanina entre músculo e fígado. O piruvato acepta um grupo amino do glutamato, formando alanina, que é transportada pelo sangue até o fígado, onde é reconvertida a piruvato e entra na gliconeogênese. Em condições de jejum prolongado, essa rota pode representar uma contribuição significativa para a produção hepática de glicose.
A última rota significativa é a conversão em acetato via piruvato desidrogenase quinase, que gera acetil-CoA livre para síntese de ácidos graxos. Isso acontece no citosol de tecidos lipogênicos, principalmente fígado e tecido adiposo, quando há excesso de carboidratos e Insulina alta. O acetil-CoA mitocondrial não atravessa a membrana mitocondrial interna diretamente, então o citrato é formado, exportado para o citosol e clivado pela ATP-citrato liase, liberando acetil-CoA citosólico para a lipogênese.

Como prever qual destino predomina na prática
O problema é que nenhum desses caminhos funciona isoladamente. Na minha experiência com experimentos de metabolismo celular, a variável que mais causa confusão é o gradiente NADH/NAD+. Se esse gradiente está alterado, todas as rotas que dependem de NAD+ ou NADH são deslocadas simultaneamente. Eu já vi culturas de hepatócitos em isolamento preferirem a via do lactato mesmo com oxigênio suficiente porque o NAD+ citosólico estava depletado por outras atividades enzimáticas concorrentes. Outro fator subestimado é a disponibilidade de substratosidores. O oxaloacetato, por exemplo, pode ser consumido na gliconeogênese, na síntese de aspartato, ou no ciclo de Krebs. Quando múltiplas vias puxam o mesmo intermediário, a distribuição do piruvato se torna imprevisível sem medição direta dos fluxos. Isótopos marcados com carbono-13 são o padrão-ouro para rastrear esses fluxos, mas equipamentos de RMN ou espectrometria de massas limitam o acesso a laboratórios maiores. Para quem trabalha com culturas celulares e não tem acesso a essas técnicas, uma abordagem pragmática é medir os metabólitos extracelulares no meio de cultura em intervalos de tempo. Lactato, alanina, glutamato e corpúsculos cetônicos no meio dão uma ideia bastante clara de para onde o piruvato está indo. A taxa de consumo de glicose combinada com a taxa de produção de lactato permite calcular o fluxo glicolítico aproximado com razoável precisão.
Parmetros que voce deve monitorar
Se você está tentando controlar ou entender o destino do piruvato em algum sistema, os parâmetros mais úteis são: razão ATP/ADP, razão NADH/NAD+, concentração de acetil-CoA livre, pH intracelular, disponibilidade de oxigênio real (não apenas a concentração no meio), e a expressão relativa das enzimas-chave de cada via. APDH, lactato desidrogenase, piruvato carboxilase e alanina aminotransferase podem ter suas atividades reguladas pós-traducionalmente de formas diferentes em cada tecido, então perfiles de expressão gênica nem sempre refletem a atividade enzimática real. Um ponto que merece atenção especial é o pH. A conversão de piruvato a lactato libera um próton, então a acumulação de lactato acidifica o citosol. Em sistemas fechados como biorreatores, isso pode criar um ciclo de retroalimentação negativa onde a acidificação inibe a glicólise e altera a distribuição dos destinos do piruvato de maneiras que não seriam previstas apenas pelas concentrações de substrato. Eu perdi duas semanas de experimento sem entender por que a produção de um metabólito específico tinha parado de subir, até perceber que o pH do meio havia caído para 6,8 e estava desativando enzimas glicolíticas clave.
Limitações que ninguém gosta de admitir
O modelo clássico de ensino simplifica demais a rede metabólica do piruvato. Na realidade, muitas das enzimas envolvidas formam complexos multienzimáticos que canalizam substratos diretamente entre si, reduzindo a difusão para o pool citosólico geral. Isso significa que medir concentrações livres de piruvato ou lactato pode não refletir adequadamente o fluxo real através das vias. O piruvato pode estar sendo convertido diretamente em acetil-CoA sem nunca atingir o citosol livre, e o mesmo vale para a via da alanina. Além disso, diferentes isoformas enzimáticas existem em diferentes tecidos com propriedades cinéticas distintas. A lactato desidrogenase tem quatro isoformas que formam cinco isozimas, com preferências diferentes por piruvato versus lactato. A piruvato quinase tem isoformas M1 e M2 comRegulação alostérica completamente diferente. Ignorar essas diferenças é uma fonte comum de erro em modelos metabólicos simplificados. Se o seu objetivo é manipular o destino do piruvato de forma precisa, a abordagem mais confiável envolve modulação combinada de múltiplos fatores: ajuste de disponibilidade de oxigênio, controle estrito de pH, suplementação de cofatores como biotina e tiamina, e uso de inibidores específicos quando necessário. Nenhum único fator determina o destino do piruvato, e tentar simplificar isso em uma única variável controlável raramente funciona fora de sistemas extremamente reduzidos.
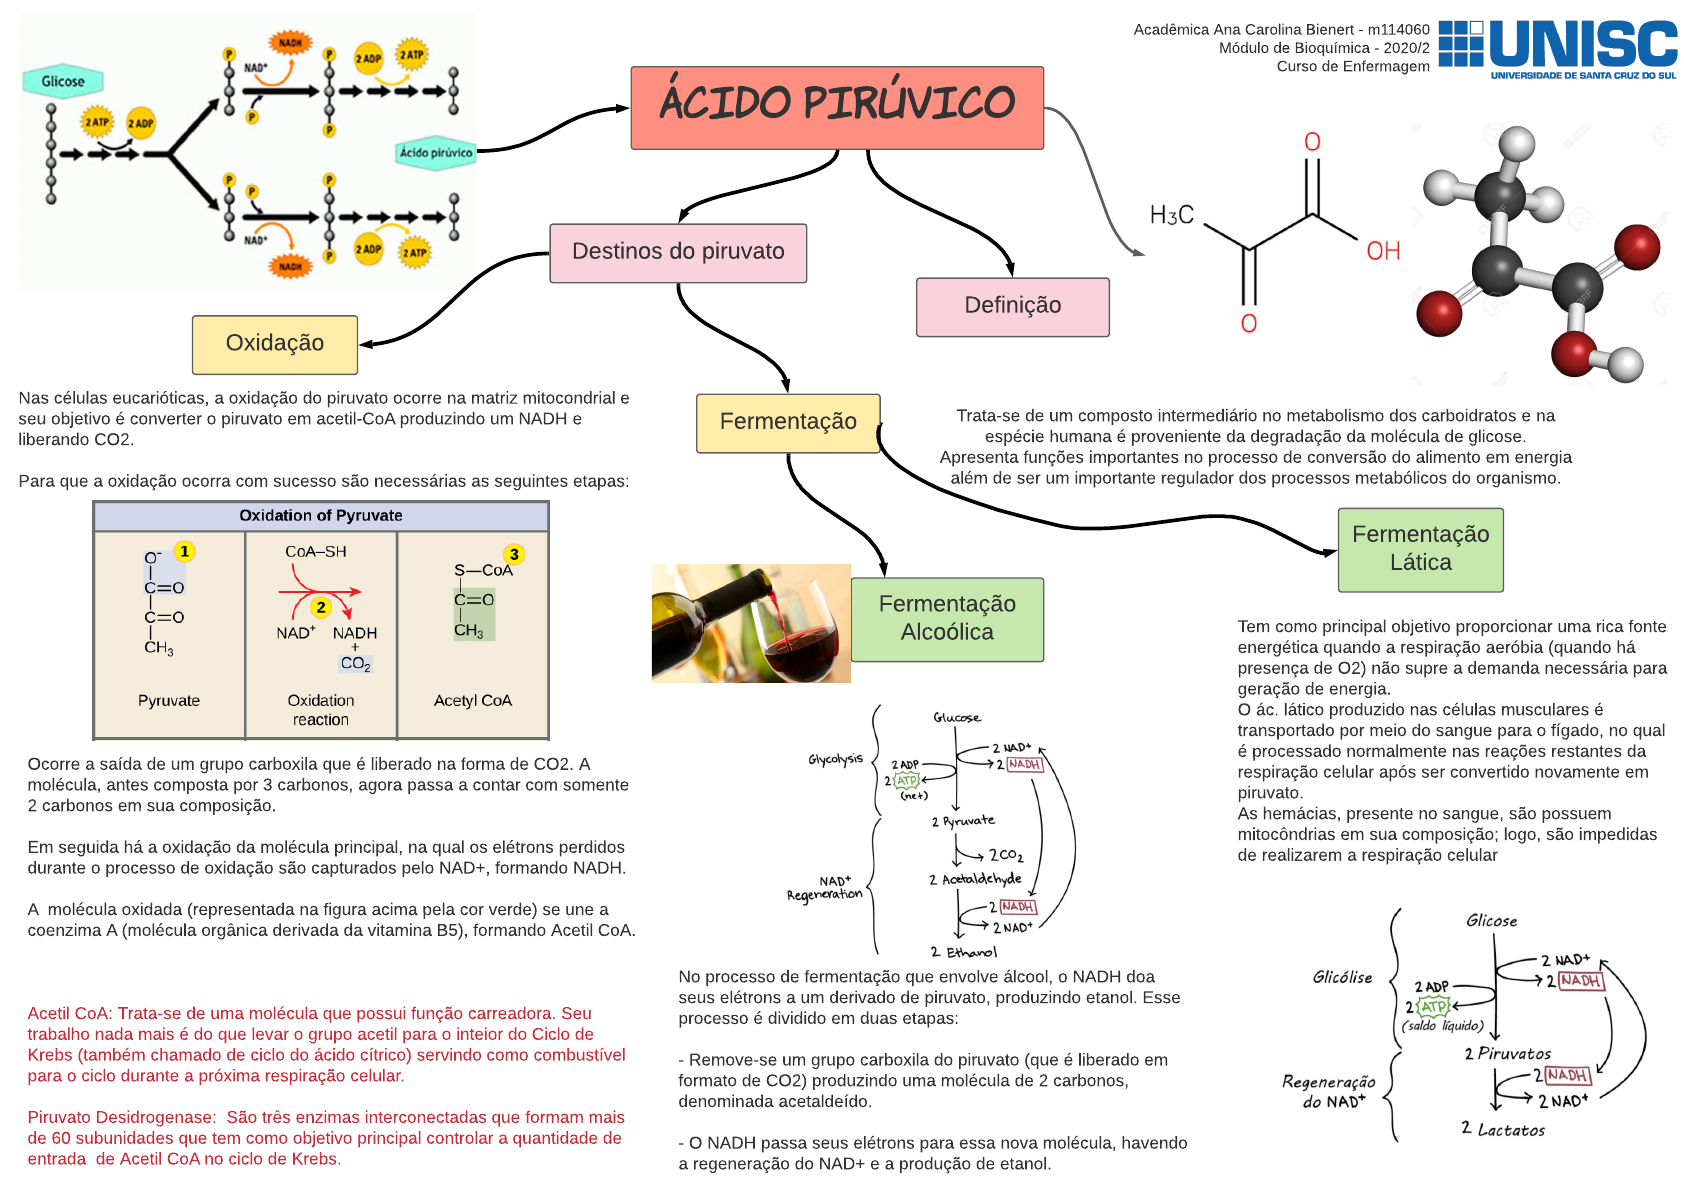
Em resumo, o piruvato é um nó metabólico onde decisões instantâneas da célula se refletem em diferentes produtos finais, e entender isso exige considerar o contexto fisiológico completo em vez de apenas as reações isoladas.
Galeria
-
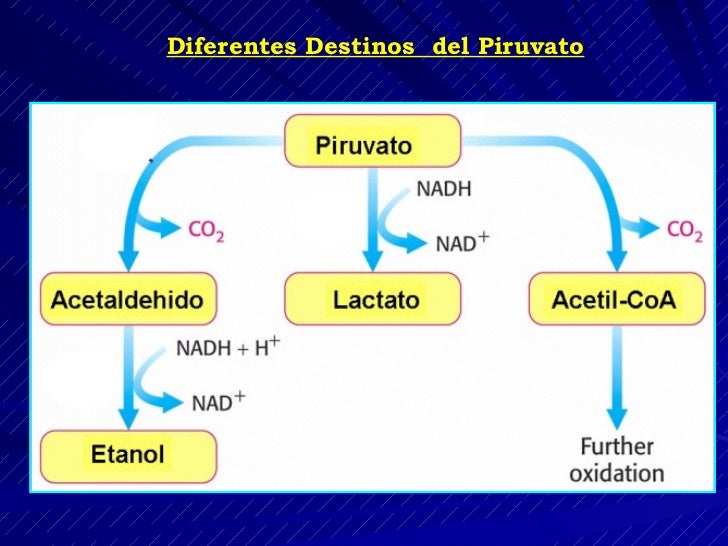
Clase 13 Destinos Del Piruvato Y Gluconeogenesis -
Destinos Do Piruvato | PDF | Ácido pirúvico | Fermentação -

AURORA DE LA BIOQUIMICA: TRES DESTINOS DEL PIRUVATO

