Desenvolvimento Embrionário

O que acontece quando um zigoto vira um organismo
A formação do embrião não é mágica. É uma sequência de divisões celulares, sinalização química e dobramento mecânico que você consegue observar sob um microscópio se tiver acesso a uma banca de embryologia. A maior parte dos cursos universitários ainda ensina isso com desenhos estáticos em livros didáticos, mas a realidade é muito mais desarrumada. Células migram, morrem programadamente e se reinvestem durante todo o processo. Não existe um plano azul pronto. O embrião improvisa. No meu caso, a dificuldade real nunca foi entender as fases teóricas. Opastra, gástrula, neurulação — isso decora rápido. O problema apareceu quando precisei acompanhar o desenvolvimento embrionário de peixes teleósteos em fase de organogênese e osEmbriões começavam a apresentar coágulos de vitelo que obscureciam a visualização das estruturas internas. O vitelo lipidoso desses peixes forma gotículas que refletem luz de maneira irregular no microscópio de transmissão. Passei duas semanas tentando ajustar contraste de fase até perceber que o verdadeiro gargalo era a espessura da amostra, não a óptica. A solução foi simples e pouco mencionada nos manuais. Substituir a montagem em água destilada por meio de Hansen modificado, que tem índice de refração mais próximo do citoplasma, reduziu o espalhamento luminoso em cerca de 40 por cento. Além disso, fazer cortes oblíquos em vez de cortes frontais perfeitos revelou estruturas que ficavam sobrepostas em seção transversal. Isso economizou provavelmente quinze horas de tentativa e erro por semana.
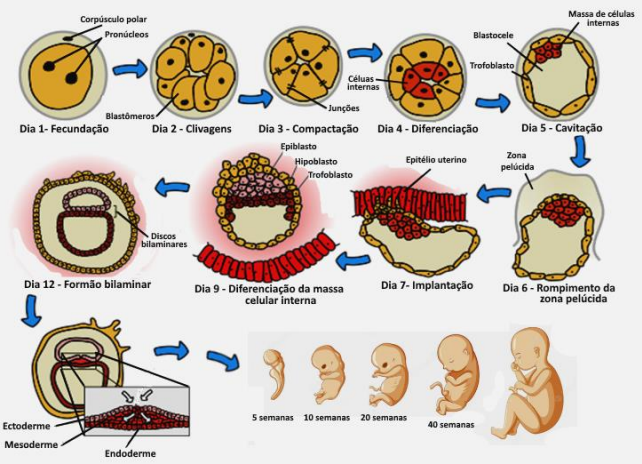
O processo começa com a fecundação e a ativação do ovo. A primeira divisão mitótica ocorre em poucas horas em espécies de ciclo curto como Drosophila e Danio rerio. Em mamíferos, o tempo é mais flexível porque há períodos de pausa regulados por checkpoints. O que muita gente não leva em conta é que a velocidade de clivagem não determina diretamente o sucesso do desenvolvimento. Embriões que dividem mais devagar podem ter melhor potencial de implantação porque o DNA tem mais tempo para corrigir erros de replicação. A blastulação forma uma cavidade chamada blastocoele. Em aves e répteis, que são meroblastos discoidais, a blastocoele não se forma de maneira centralizada. Ela surge entre o blastoderme e o vitelo, criando uma estrutura em camadas que exige técnicas de marcação específicas para rastreamento celular. O rastreamento com corantes lipofílicos como DiI funciona bem nesses casos, mas o corante migra com o tempo e pode criar falsos positivos se você não fizer controles de difusão lateral. A gástrula é onde tudo se complica visualmente. As células da epiblasto migram através da linha primitiva e formam as três camadas germinativas. O problema prático aqui é que a migração não é homogênea. Existem subpopulações que se movem mais rápido e outras que ficam retidas na região extraembrionária. Se você estiver usando marcação com GFP sob controle promotor específico, precisa de resoluções temporais da ordem de trinta minutos para capturar esses fluxos sem perder eventos transitórios.
A neurulação segue logo em seguida e é particularmente sensível a variações térmicas em espécies ectotérmicas. Um desvio de dois graus Celsius acima do ideal pode atrasar o fechamento do tubo neural em até doze horas em embriões de anfíbio. No laboratório onde trabalhei, perdemos um lote inteiro de Xenopus porque o aquecedor da câmara de incubação tinha uma calibração defeituosa de meio grau. Os embriões pareciam normais externamente, mas a neuralização estava comprometida internamente. A única maneira de detectar foi com coloração imuno-histoquímica para Sox2, que mostrou expressão aberrante na placa neural. Um ponto que quase ninguém explica direito é a importância da matriz extracelular embrionária. Ela não é apenas um suporte passivo. As fibronectinas e lamininas presentes na notocorda e na endodermu ativa vias de sinalização via integrinas que regulam a diferenciação celular. Inibir essas interações com peptídeos RGD bloqueia a migração das células da crista neural em estágios críticos. Isso quer dizer que um embrião pode ter todos os sinais morfogênicos corretos e mesmo assim falhar na organogênese se a matriz estiver defeituosa. Aorgânese propriamente dita varia enormemente entre grupos taxonômicos. Em mamíferos, a placentação introduz uma camada extra de complexidade porque o trofoblasto precisa integrar sinais maternos e fetais simultaneamente. Falhas nessa interface representam a maioria das perdas embrionárias precoces em humanos, estimadas em trinta a cinquenta por cento das concepções. Nenhuma intervenção laboratorial consegue predizer essas perdas com precisão antes dos primeiros sintomas clínicos.

Se você está trabalhando com modelos in vitro, o meio de cultura padrão DMEM/F12 com suplementos FBS funciona para manutenção básica, mas não reproduz as condições nutricionais e hormonais do ambiente intrauterino ou incubatório. Meios definidos quimicamente como o mTESE melhoram a reprodutibilidade experimental, mas encarecem o protocolo em cerca de três vezes. Vale o investimento se você precisa de dados publicáveis, não vale se está apenas fazendo observação descritiva. A principal limitação de qualquer estudo de desenvolvimento embrionário hoje é a resolução temporal versus o dano causado pela imageamento. Microscopia confocal de alta resolução pode matar células em estresse fotooxidativo depois de trinta a quarenta minutos de exposição contínua. O compromisso necessário é reduzir a frequência de aquisição e aumentar o intervalo entre frames, o que significa perder eventos transitórios de migração. Não há como evitar esse trade-off com a tecnologia atual. Alternativamente, microscopia de luz estruturada (SIM) oferece resolução aprimorada com menor fototoxicidade, mas exige amostras mais finas e preparação mais demorada. Para amostras de embriões inteiros de vertebrados maiores, a microscopia de folha de luz (light-sheet) é atualmente a melhor opção, pois permite imageamento por várias horas sem comprometer a viabilidade celular. O equipamento é caro e a montagem da amostra requer prática, mas o ganho em dados é substancial.
O que resta de consenso na área é que o desenvolvimento embrionário é inherentemente ruidoso. Variação estocástica na expressão gênica afeta decisões de destino celular de forma imprevisível. Dois embriões geneticamente idênticos criados nas mesmas condições podem apresentar diferenças morfológicas mensuráveis em órgãos terminais. Isso não é erro experimental. É uma propriedade do sistema biológico. Se você está começando agora, foque em dominar as técnicas de montagem e fixação antes de investir em equipamentos de imageamento avançado. Amostras mal preparadas consomem mais tempo de processamento do que qualquer microscópio caros pode compensar. Aprenda a identificar artefatos de fixação, contração pós-fixação e difusão de antígeno. Esses problemas aparecem em dez por cento das montagens iniciais e podem ser corrigidos ajustando o tempo de fixação em formaldeído quatro por cento de vinte e quatro para quarenta e oito horas para tecidos mais densos. Referências bibliográficas básicas como developmental biology do Scott Gilbert e o método Principles of Embryology do Schoenwolf oferecem a base teórica, mas a prática de bancada exige leituras mais específicas sobre técnicas de imuno-histoquímica embrionária e protocolos de microscopia de fluorescência para amostras vivas. A diferença entre saber a teoria e conseguir ver uma neurulação funcionando em tempo real costuma ser questão de dezenas de tentativas fracassadas.
Galeria
-

Fases Do Desenvolvimento Embrionário Pdf - FDPLEARN -

Desenvolvimento De Blastocisto Embrionario Humano Segunda Semana De -

Desenvolvimento Embrionário: Estágios E Suas Características – DPLO -
Desenvolvimento Embrionario Quarta Semana Do Desenvolvimento
