Especiação Alopatrica
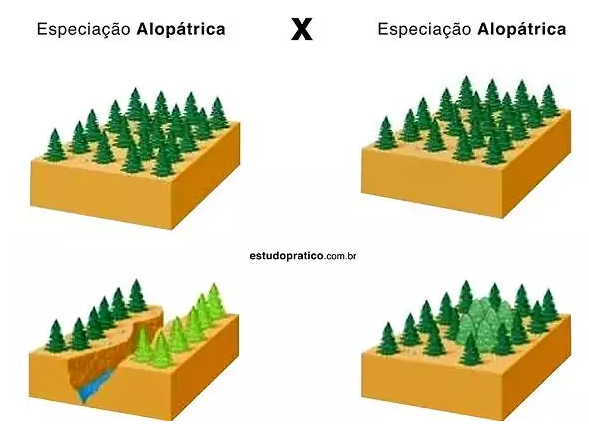
Como a especiação realmente acontece na prática
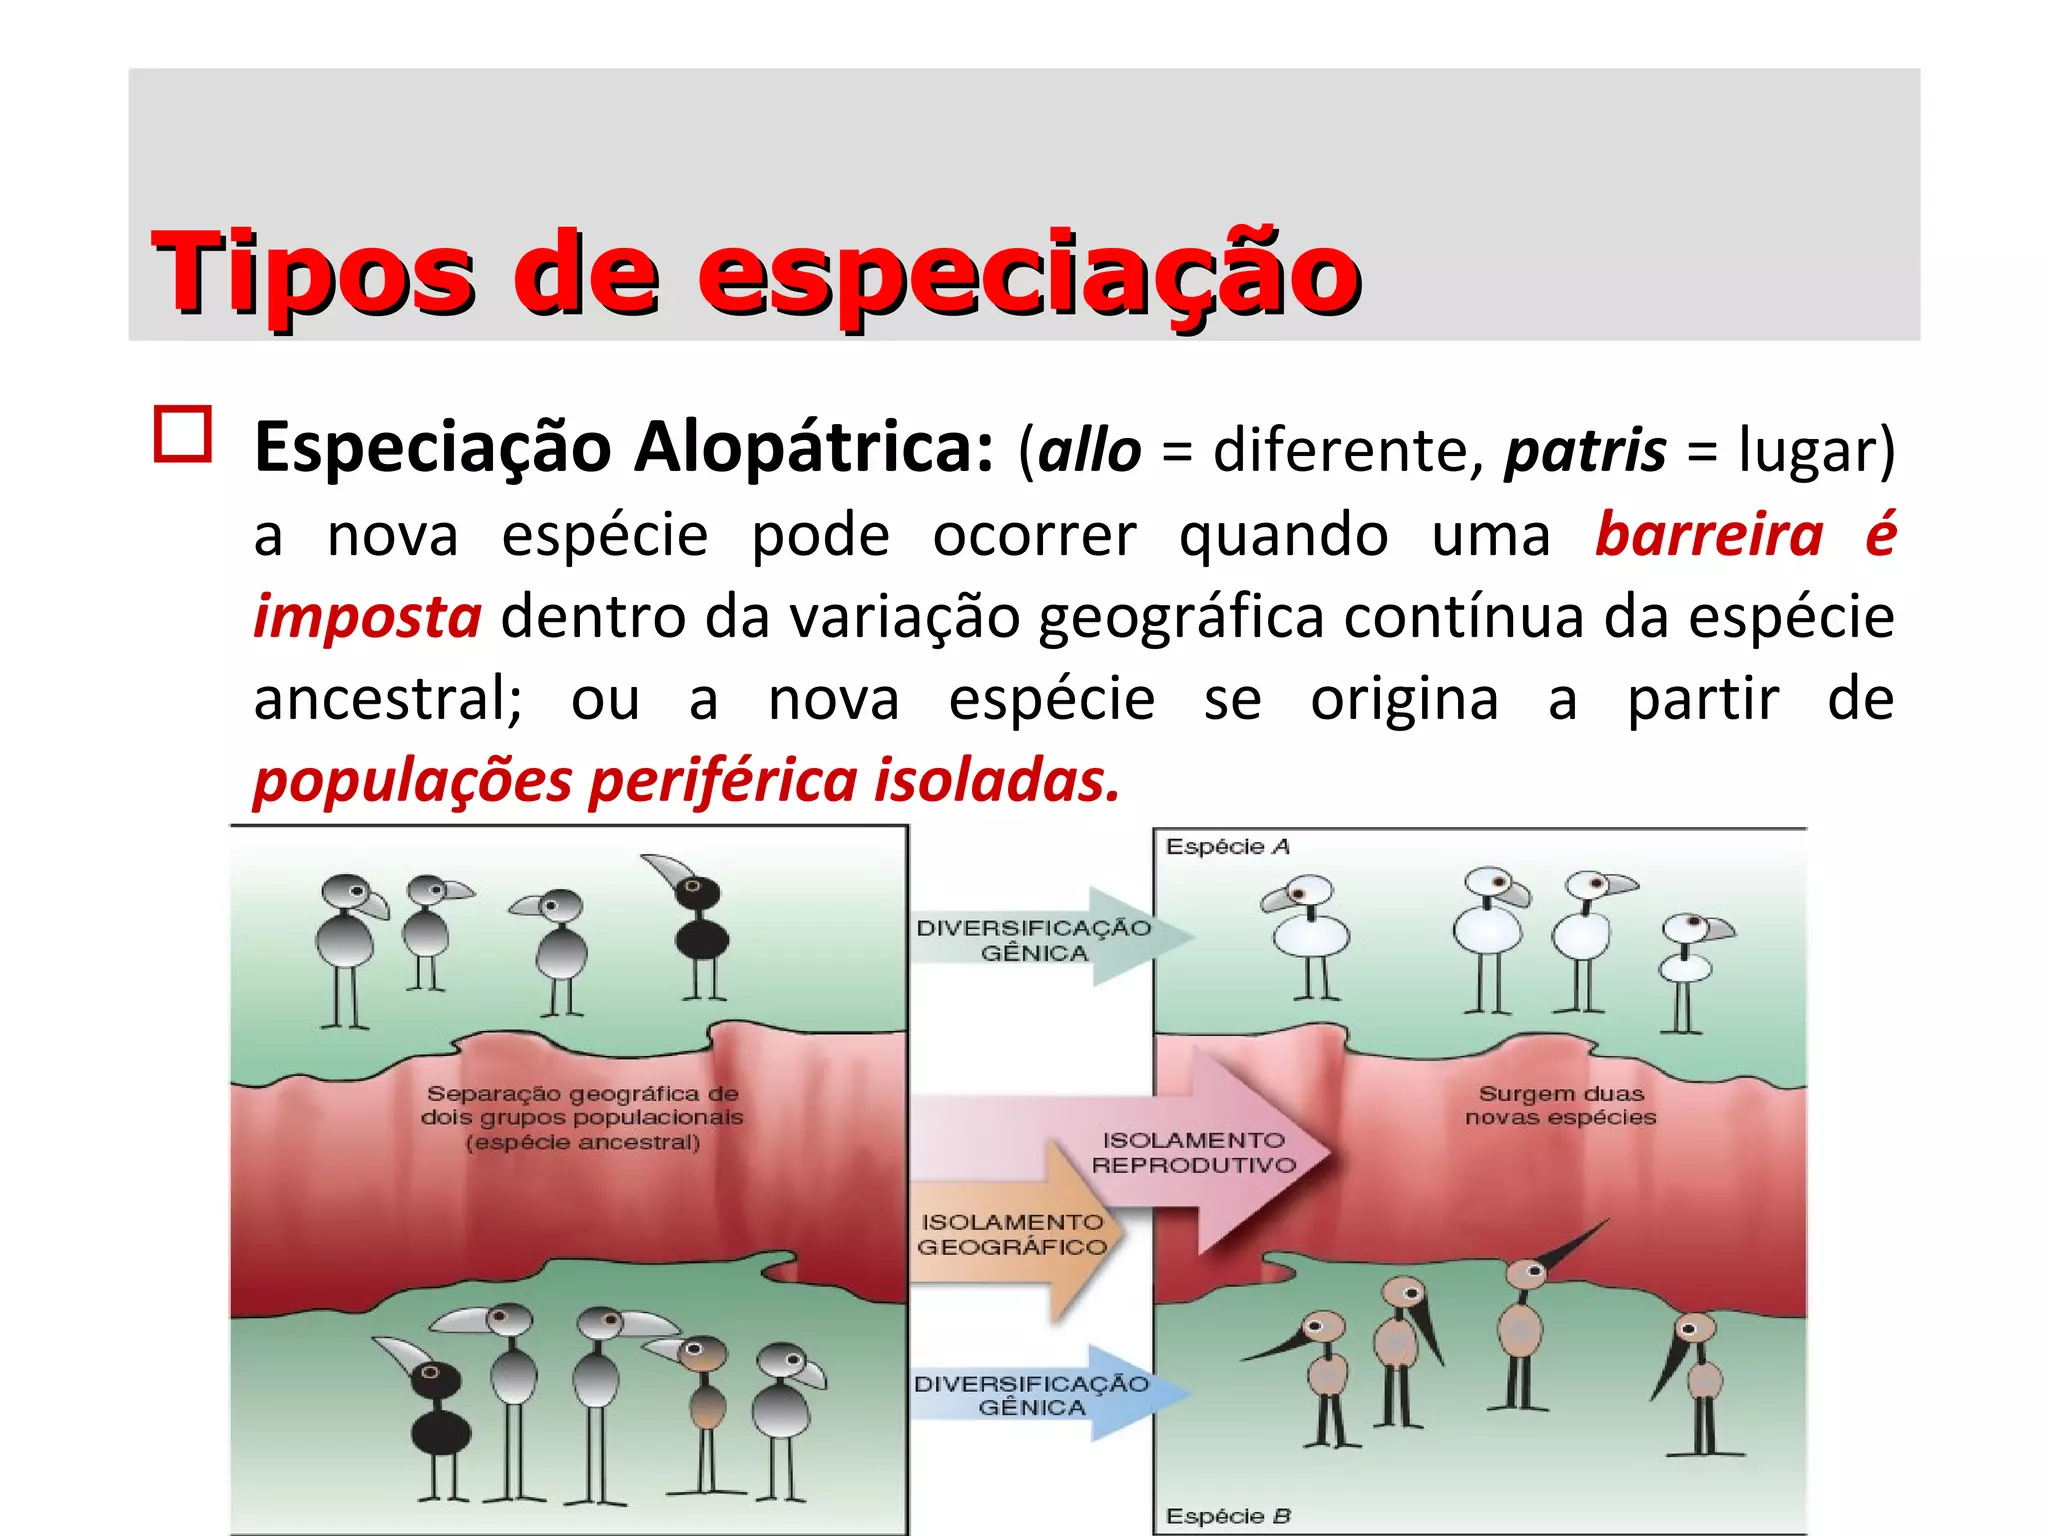
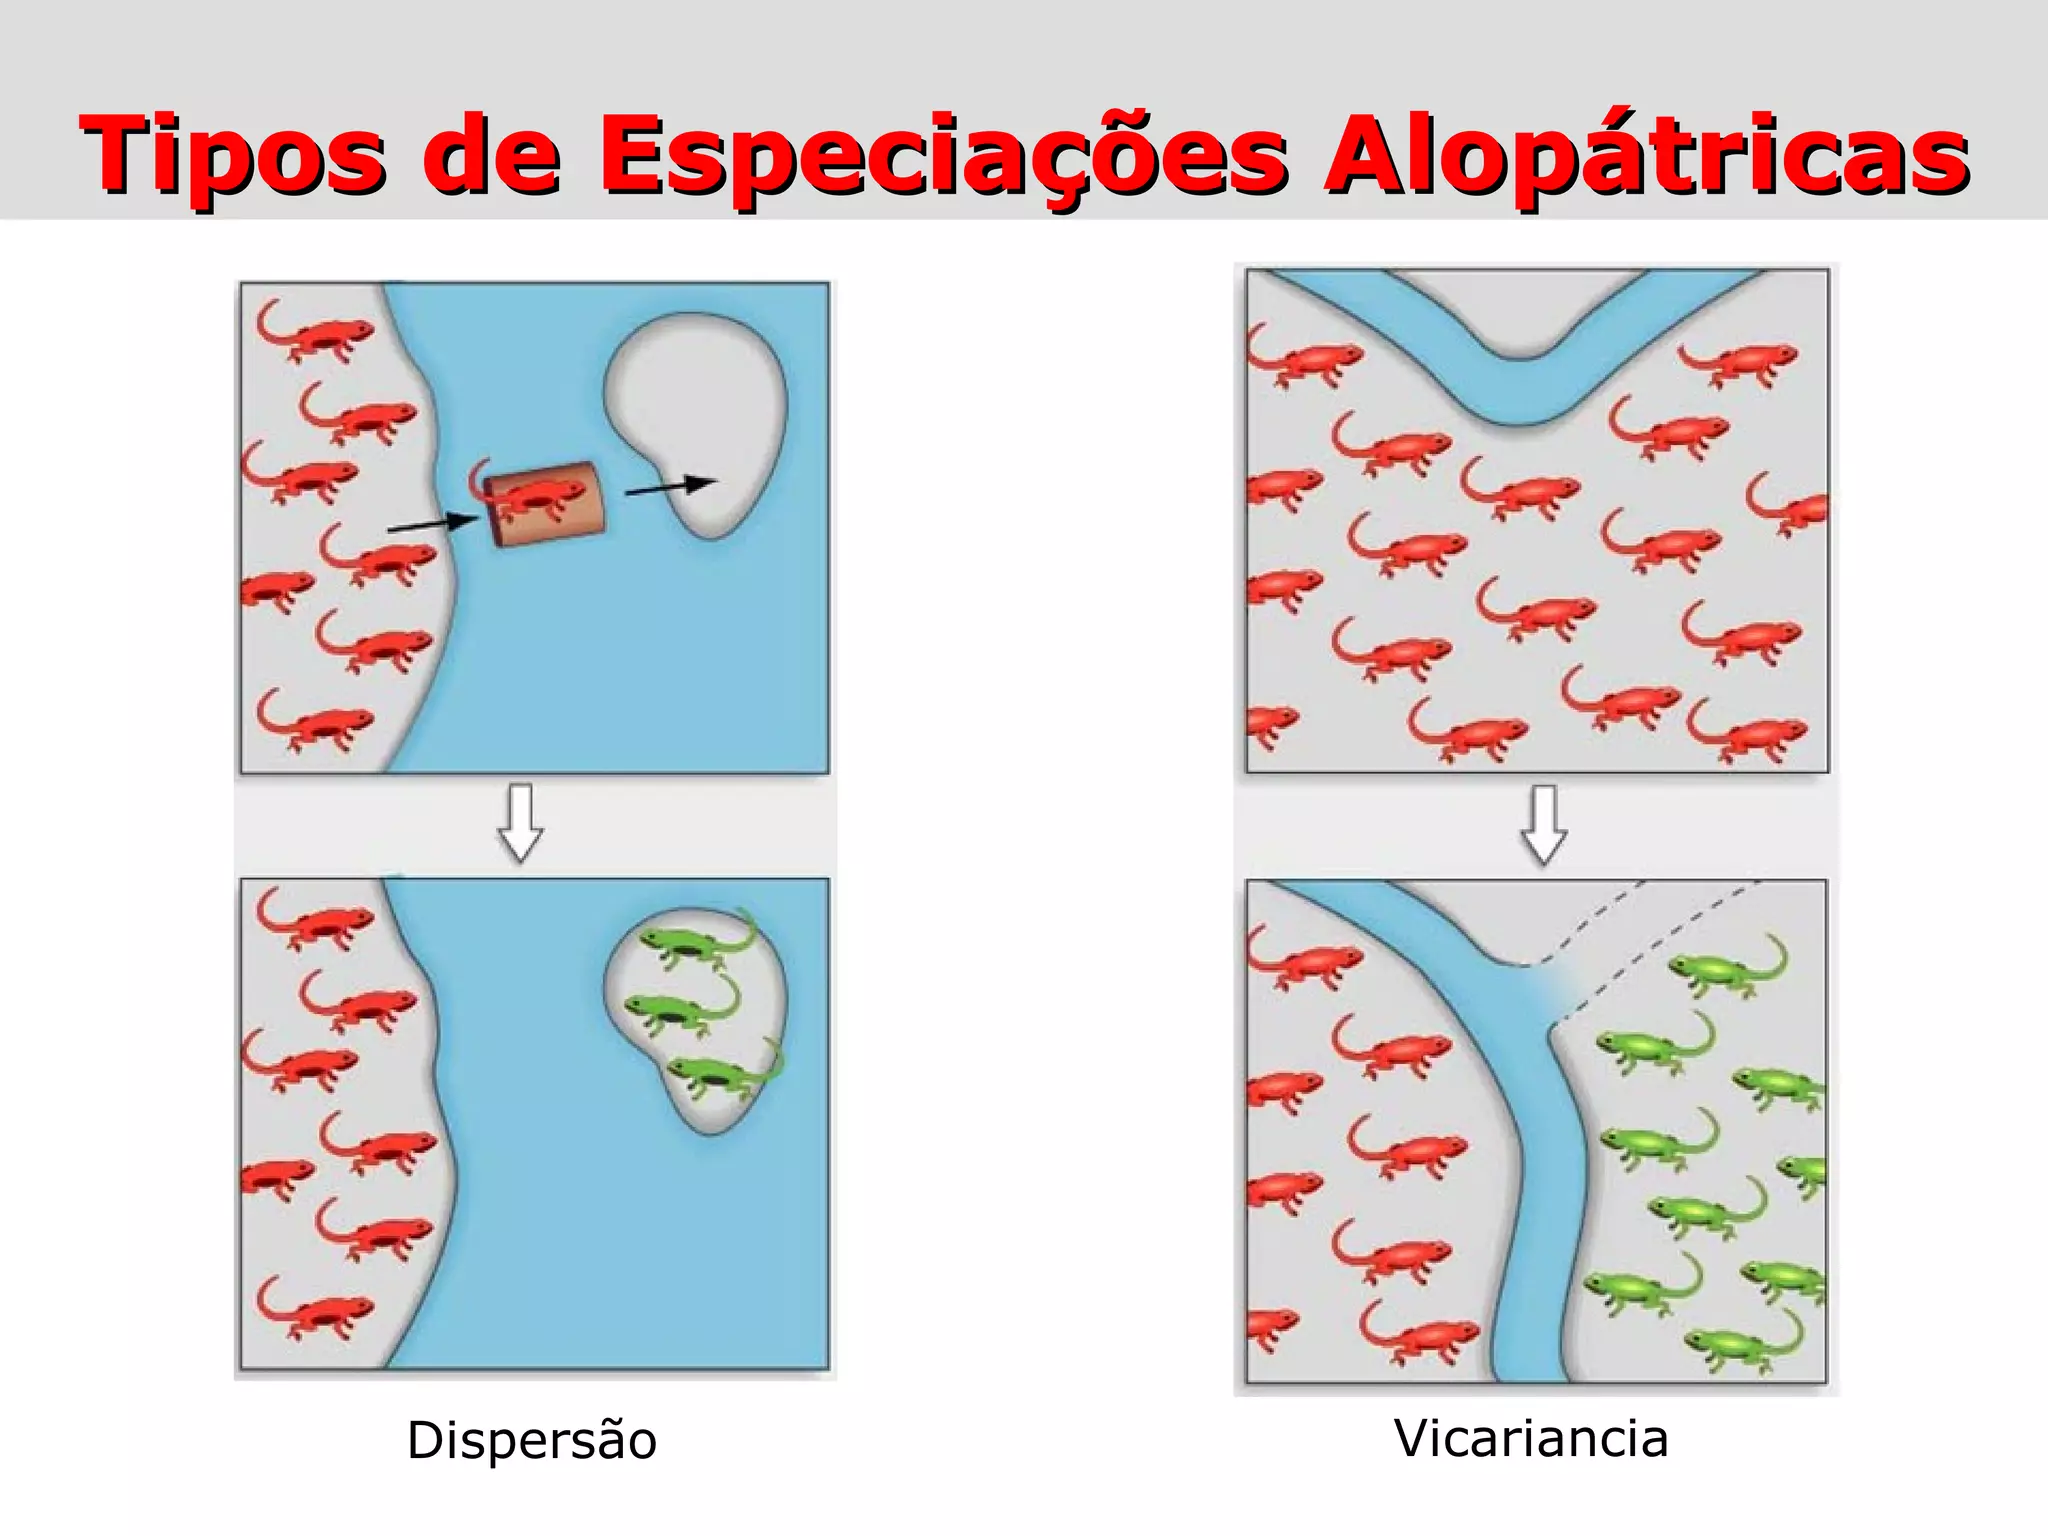
Você separa uma população em dois grupos usando um obstáculo físico — rio, montanha, deserto — e espera que com o tempo eles se tornem espécies diferentes. O mecanismo é simples na teoria. Na prática, as coisas raramente são tão limpas assim. A maior parte do trabalho é entender o que aconteceu depois da separação inicial, porque o cenário nunca é estático. O conceito básico é que isolamento geográfico impede fluxo gênico entre duas populações. Sem troca de genes, as mutações acumulam-se de forma independente. A seleção natural age de maneiras diferentes em cada ambiente. A deriva genética opera com intensidades distintas. Eventualmente, mesmo se a barreira desaparecer, os grupos não conseguem mais cruzar. Isso é a definição de livro-texto. O que os livros não dizem é que a barreira precisa ser eficiente. Um rio pode ser suficiente para pequenos roedores, mas para aves de médio porte ele é apenas uma linha no chão. A pergunta certa não é "existe uma barreira", é "essa barreira bloqueia o movimento dos indivíduos que eu estou estudando". A resposta determina tudo. Se os organismos ainda conseguem atravessar, você não tem isolamento reprodutivo, só redução de fluxo gênico. E isso muda completamente a interpretação dos dados genéticos.
Outro ponto que muita gente perde: a especiação nem sempre precisa de barreira geográfica completa. Populações adjacentes com diferentes pressões seletivas podem divergir mesmo com fluxo gênico baixo. Isso é especiação parapatrica. A diferença é sutil, mas crucial. Se você classifica errado o tipo de isolamento, toda a modelagem evolutiva posterior sai torta.
A mecânica do processo passo a passo
Tudo começa com a fragmentação de uma população contínua. O que causa isso varia. Aumento do nível do mar separa populações costeiras. Movimento tectônico ergue cadeias de montanhas. Mudanças climáticas expandem desertos. O importante é que o evento de fragmentação seja detectável. Você precisa saber quando e como a separação aconteceu para calcular taxas de divergência corretamente. Depois da separação, cada população evolui separadamente. A seleção natural atua sobre variações genéticas existentes. Novas mutações surgem aleatoriamente. Algumas são benéficas, outras prejudiciais, a maioria é neutra. Em populações pequenas, a deriva genética tem peso maior. Em populações grandes, a seleção domina. O resultado final depende dessa proporção. A frequência de alelos muda de forma diferente em cada grupo. O termo técnico importante aqui é isolamento reprodutivo pós-zigótico. Isso significa que mesmo se os indivíduos de populações diferentes cruzarem, os híbridos têm menor aptidão. Esterilidade em machos, viabilidade reduzida em descendentes, desvantagem ecológica. O mecanismo de isolamento pré-zigótico também aparece, mas geralmente de forma secundária. Comportamento reprodutivo diferente surge como consequência, não como causa inicial.

Quando a barreira desaparece, o teste real acontece. Se os grupos ainda cruzam e produzem descendentes férteis, a especiação não foi completada. Se eles não reconhecem uns aos outros como parceiros em potencial, ou se os híbridos são inviáveis, o processo está avançado. O problema é que você quase nunca testemunha esse momento de reencontro. Ele aconteceu no passado, e você está inferindo a partir de dados atuais.
Um caso específico e o que deu errado
Trabalhei com uma situação real que ilustra bem as dificuldades. Estava analisando populações de um pequeno mamífero florestal em uma região onde um rio parecia separar claramente dois grupos. A morfologia era distinta o suficiente para sugerir isolamento reprodutivo em andamento. Coleti amostras de tecido de ambas as margens do rio durante três estações de campo consecutivas. O plano era comparar estrutura genética usando microsatélites e analisar divergência morfológica com testes estatísticos padrão. O resultado foi problemático. Os dados genéticos mostraram estrutura populacional significativa, mas a posição genética das populações não correspondia à margem do rio. Fiz análise de componente principal, testei diferentes configurações de barreira com modelo de dispersão. Nada batia. Só depois de consultar dados geológicos Regionais descobri que o rio atual ocupa um leito muito mais recente. A barreira real era uma elevação antiga que fora erodida. O rio era consequência da erosão, não a causa do isolamento. A correção foi redesenhar o modelo de especiação com base na cronologia geológica. A separação populacional aconteceu quando a elevação se formou, não quando o rio mudou de curso. Isso mudou completamente a estimativa de tempo de divergência e a interpretação das pressões seletivas envolvidas. O erro comum seria aceitar a geografia atual como explicação sem questionar. Eu quase cometi isso.
O workaround prático que adotei depois disso foi simples e resolveu muitos problemas similares: antes de qualquer análise genética, fazer mapeamento detalhado da geomorfologia local com dados de satélite de alta resolução e informações geológicas Regionais. Isso leva cerca de uma semana adicional de trabalho, mas evita meses de interpretação equivocada. Vale muito a pena.

Aplicações e exemplos documentados
O exemplo clássico são os tentilhões de Darwin nas Galápagos. Populações isoladas em ilhas diferentes desenvolveram bicos adaptados a diferentes fontes alimentares. O cruzamento entre espécies próximas ocorre raramente em zonas de contato. A divergência morfológica e genética é bem documentada. Mas mesmo esse caso tem complexidades. Algumas ilhas se conectaram durante períodos de baixo nível do mar, permitindo contato temporário. A história evolutiva não é uma sequência simples de separação absoluta. Outro caso interessante envolve peixes de lagos glaciais. Após o recuo das geleiras, lagos isolados mantêm populações de peixes que divergiram rapidamente. O processo é particularmente visível porque a timeline geológica é conhecida com precisão. Você consegue correlacionar divergence genética com data de formação dos lagos. Isso é raro na biologia evolutiva. A maioria dos eventos de especiação não tem markers temporais tão claros. A aplicação prática mais útil desse conhecimento está em conservação. Identificar unidades evolutivamente significativas em populações ameaçadas depende de entender se o isolamento é recente ou antigo. Populações com divergência genética limitada há poucos séculos têm valor diferente de populações separadas por milênios. O manejo adequado exige essa distinção. Tratar todas as populações isoladas da mesma forma pode levar à perda de diversidade genética adaptativa importante.
Limitações e armadilhas comuns
O maior problema prático é que especiação alopatrica raramente é binária. É um espectro. Você raramente encontra populações perfeitamente isoladas ou completamente convergentes. O intermediário é a regra, não a exceção. Isso torna difícil classificar casos específicos. A decisão muitas vezes depende do threshold arbitrário que você escolhe para definir "isolamento suficiente". Outra limitação séria é a necessidade de dados temporais. Sem informação sobre quando a separação aconteceu, você não consegue estimar taxas de divergência. Modelos moleculares existem, mas dependem de calibração. Fósseis ajudam, mas são raros para a maioria dos grupos. A alternativa é usar eventos geológicos conhecidos como proxies. Isso funciona quando a geologia é bem estudada. Quando não é, a incerteza cresce exponencialmente. Populações pequenas apresentam comportamento particular. A deriva genética domina a evolução nesses casos. Divergência rápida pode ocorrer por acaso, não por adaptação. Isso significa que populações isoladas podem parecer distintas geneticamente sem vantagem seletiva real. O risco é classificar algo como especiação em andamento quando na verdade é apenas ruído neutro. Análises de seleção positiva são essenciais para distinguir os dois cenários.
Um cenário onde a abordagem falha completamente é quando a barreira é permeável. Fluxo gênico persistente, mesmo que baixo, mantém coesão populacional. A especiação não avança. O erro comum é assumir isolamento baseado apenas na presença de uma barreira geográfica. Testes estatísticos de fluxo gênico são necessários. Métodos como STRUCTURE, ADMIXTURE ou análises de parentesco individual identificam essa situação. Sem eles, a conclusão pode estar errada. A alternativa quando o isolamento geográfico não explica a divergência observada é especiação simpátrica. Isso acontece quando barreiras ecológicas ou comportamentais criam isolamento sem separação física. Exemplos incluem parasitas que mudam de hospedeiro ou insetos que se especializam em diferentes plantas. O estudo desses casos exige abordagem diferente, focada em seleção ecológica e divergência de nicho ao invés de geografia.

Análise prática de dados
Quando você tem amostras de duas populações isoladas, o primeiro passo é verificar a estrutura genética. Microssatélites funcionam para escalas temporais recentes. Sequenciamento de genome completo é preferível quando disponível. A análise de fluxo gênico com métodos como MIGRATE-N ou IMa2 fornece estimativas quantitativas de troca de genes. Se o fluxo for significativamente diferente de zero, o isolamento não é completo. Testes de divergência morfológica precisam considerar variabilidade dentro de cada população. Diferenças entre médias de grupos não são suficientes. Overlap de ranges morfométricos indica que a separação pode não estar avançada. Análises de discriminação funcional, como DFA, ajudam a quantificar o grau de separação. Mas o resultado sempre depende da amostragem. Populações com tamanho amostral pequeno geram conclusões instáveis. A cronologia do isolamento é obtida através de métodos como molecular clock. Taxas de substituição de nucleotídeos são calibradas com eventos geológicos conhecidos ou fósseis. A incerteza associada a essas estimativas deve sempre ser reportada. Intervalos de confiança estreitos são raros. Aceitar pontos específicos como verdadeiros sem mencionar a margem de erro é má prática científica.
O software disponível para análise inclui BEAST para datação, STRUCTURE para estruturação populacional, e AdmixtureGraph para modelos de história demográfica. Cada ferramenta tem pressupostos que precisam ser verificados. Executar um script sem entender o que ele assume leva a resultados enganosos. O custo de aprender a metodologia antes de aplicar é pequeno comparado ao tempo perdido corrigindo interpretações equivocadas depois.
Cenários onde especiação alopatrica não se aplica
Quando espécies vizinhas trocam genes regularmente, o conceito de isolamento geográfico perde relevância. Zonas híbridas são exemplos claros. Populações em contato próximo podem manter diferenças morfológicas e genéticas apesar do fluxo gênico. A seleção contra híbridos mantém a divergência. Isso é especiação parapatrica, não alopatrica. Casos de poliploidia em plantas representam exceção importante. Espécies podem surgir instantaneamente por duplicação cromossômica sem qualquer barreira geográfica. O isolamento reprodutivo é imediato. A classificação como especiação alopatrica não se encaixa. Outros mecanismos, como especiação por hibridização ou por mudança de hospedeiro em insetos, também escapam do modelo tradicional. O que permanece válido é que separação física promove divergência. Isso não significa que toda divergência venha de separação física. A relação é necessária mas não suficiente. Condições adicionais, como tempo suficiente e pressões seletivas distintas, são requeridas para completar o processo. Sem elas, populações isoladas podem permanecer geneticamente similares por milhões de anos.
Galeria
-
Especiação
