Estomatos Abertura E Fechamento

Como funciona o estômato quando ele abre e fecha de verdade
O estômato é uma estrutura bem simples na teoria, mas na prática tem detalhes que quem vê só nos livros didáticos nunca considera. Ele é formado por duas células-guarda que se movem por mudanças de pressão interna, e esse movimento abre ou fecha uma fenda chamada ostíolo. O processo depende de bomba de prótons, influxo de potássio, entrada de água por osmose e toda uma cascata hormonal que nem sempre age como todo mundo acha. A gente costuma aprender que luz azul ativa a bomba H+-ATPase, o potássio entra, o potencial de membrana despolariza e o estômato abre. Isso está certo. O que os livros não mostram é que o sinal luminoso precisa ser sustentado por alguns minutos até a resposta fisiológica completa aparecer, e que o timing importa mais do que a intensidade isolada. Se você iluminar uma folha por trinta segundos e desligar, o estômato mal começa a se mover. A resposta significativa aparece depois de dois a cinco minutos de exposição consistente à luz azul na faixa de 50 a 200 micromols por metro quadrado por segundo.
Estomatos abertura e fechamento: o que realmente controla o processo
Dos fatores que influenciam a dinâmica estomática, luz, CO2, turgor e ABA são os quatro principais. O efeito do CO2 é um dos mais contraintuitivos. Baixo CO2 no espaço intracelular promove abertura, sim, mas o mecanismo não é direto. A queda do pH do apoplasto e a dessensibilização de canais de potássio de saída são parte do caminho. Quando a concentração de CO2 sobe, as células-guarda recebem um sinal para fechar, independente da luz. Isso é importante porque muita gente assume erradamente que luz forte sempre significa estômato aberto. Em condições de alta luz e alta CO2, os estômatos ficam abertos, mas com velocidade reduzida em relação ao que a luz sozinho causaria. O ácido abscísico, o ABA, é outro ponto que gera confusão. A gente repete que ABA fecha estômato em seca, mas o detalhe que poucos incluem é que a sensibilidade ao ABA varia com a idade da folha, com o nível de turgor prévio e com o histórico recente de estresse hídrico. Uma folha que já passou por uma onda de déficit hídrico pode responder ao ABA com muito mais intensidade do que uma folha jovem que nunca senti restrição de água. O receptor PYL-PYR e a via PP2C-SNP dependem de proteínas que são remodeladas pelo tempo de exposição, então o efeito não é linear. Um problema que eu encontrei na prática foi com medidas de condutância estomática em campo usando difusômetros de tipo poroso. Você calibra o equipamento, faz a leitura em uma folha de feijão e o valor parece bom. Quando muda para uma planta com cutícula mais espessa, como algodão, a leitura cai artificialmente porque o sensor não faz bom contato com a superfície mesmo quando o estômato está aberto. A solução que funcionou foi aplicar uma fina camada de verniz ungueal no mesófilo para fazer uma réplica da epiderme, secar e medir a réplica dentro da câmara do difusômetro. Não é perfeito, mas evita o erro de achar que a planta fechou os estômatos quando na verdade foi só má aderência do sensor. Esse artifício economiza horas de reteste e evita conclusões erradas em artigos.
Mecanismo interno: pressão de turgor e íons
O mecanismo básico envolve ativação da H+-ATPase na membrana das células-guarda, hiperpolarização da membrana, abertura de canais de K+ de entrada, acumulação de K+ e anions orgânicos como malato, queda do potencial de membrana para valores mais negativos, entrada de água, aumento do volume celular e curvatura que separa as células-guarda. Quando o sinal é de fechamento, os canais de K+ de saída se abrem, os íons saem, a água segue por osmose, a pressão de turgor cai e o ostíolo se fecha. O que todo mundo subestima é o papel do cálcio intracelular. Um aumento de Ca2+ citosólico age como sinal negativo rápido para a abertura e como gatilho para o fechamento em resposta a estresses. A cinética do cálcio não é lenta. Em condições de fechamento induzido por ABA, picos de Ca2+ podem aparecer em menos de um minuto após a aplicação do hormônio. Isso significa que a resposta estomática pode começar antes mesmo da síntese de novos mensageiros secundários estar completa. Se você mede apenas variáveis lentas como condutância estomática de forma pontual, perde a janela onde a regulação mais intensa acontece. Outro detalhe técnico que causa erro frequente é a suposição de que todas as células-guarda de uma mesma folha respondem de forma sincronizada. Elas não respondem. Há um gradiente de abertura ao longo do eixo da folha, com os estômatos da base tendendo a permanecer um pouco mais abertos sob condições de luz moderada e déficit hídrico leve. Isso acontece porque a sinalização hidráulica e a distribuição de ABA não são uniformes. Se você faz médias de toda a lamina, a tendência é subestimar a variabilidade real. A solução prática é amostrar regiões específicas e registrar a posição no eixo da folha junto com os dados.
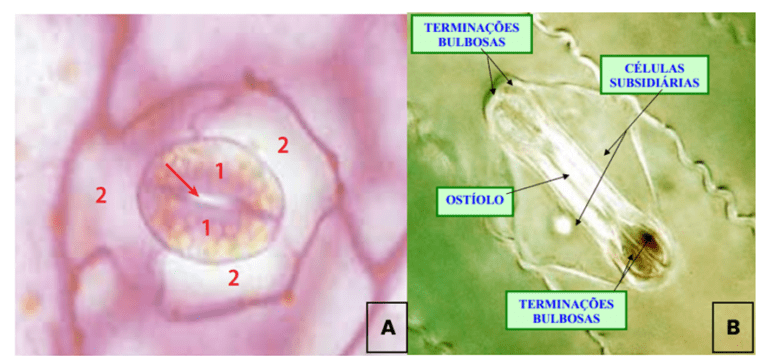
Como medir abertura e fechamento com precisão razoável
Existem três abordagens que eu uso com frequência e que cobrem a maioria das situações laboratoriais e de campo. A primeira é a medida de condutância estomática por infravermelho, usando gasômetros de fluxo contínuo. Ela exige equilíbrio térmico, controle de umidade relativa dentro da câmara e tempo de estabilização. Em condições normais, você leva de cinco a oito minutos para que a lectura se estabilize depois de colocar a folha na câmara. Se a temperatura da folha for maior do que a do ar ao redor, o erro decondutância pode ultrapassar quinze por cento em minutos. Controle a temperatura da lâmpada de iluminação e evite ventilação excessiva dentro da câmara. A segunda abordagem é microscopia direta das aberturas. Você faz preparados de epiderme ou usa câmara de fase com aumento suficiente para medir a largura do ostíolo em micrômetros. O problema aqui é que a preparação da amostra pode alterar artificialmente o estado estomático se você usar fixadores inadequados ou se a amostrasecar antes de ser observada. O workaround que eu adoto é cortar pequenos discos epidérmicos e mantê-los imersos em solução tampão leve por alguns minutos antes de montar a lameia, o que preserva o turgor por cerca de vinte minutos. Dessa forma, a medição reflete o estado fisiológico próximo do real. A terceira opção é usar sensores de vapor de água integrados a sistemas de trocas gasosas. Eles dão dados em tempo real de taxa de transpiração e, combinados com modelo de difusão, permitem estimar condutância estomática. Essa técnica funciona bem para monitoramento contínuo, mas tem limitações importantes quando a folha apresenta heterogeneidade regional de abertura ou quando há camadas de ar limite muito espessas devido a pelos ou irregularidades da superfície. Nesses casos, a estimativa de condutância tende a superestimar a abertura real em dez a vinte por cento.
Cenários práticos e erros comuns
Um erro frequente é tratar a resposta estomática como se fosse somente função da luz. Na realidade, a interação luz-CO2-umidade é o que define o comportamento. Em ambientes com baixa umidade relativa, mesmo com luz intensa, os estômatos podem fechar parcialmente para conservar água. Em cultivos protegidos, onde a CO2 é enriquecida, a resposta à luz muda de patamar. A abertura máxima pode ocorrer em intensidades menores do que a esperada, e o fechamento noturno pode ser mais acentuado do que em condições ambientas. Outro ponto que as pessoas costumam confundir é a diferença entre resposta rápida e resposta lenta. A resposta rápida ao ABA envolve canais iônicos e cálcio e pode durar segundos a poucos minutos. A resposta lenta envolve síntese de proteínas, remodelação do citoesqueleto e ajustes de expressão gênica que levam horas. Se você estiver analisando dados de campo collected ao longo do dia, está vendo principalmente a resposta lenta modulada pela luz e pelo balanço hídrico. Em experimentos de aplicação foliar de ABA, a resposta inicial que você registra nos primeiros cinco minutos é a rápida, que costuma ser menor em magnitude do que a resposta consolidada depois de meia hora. Se o objetivo é medir estomatos abertura e fechamento em condições de alto estresse hídrico, há uma limitação que vale anotar. Sob déficit severo, a condutância estomática pode cair a valores tão baixos que o ruído instrumental domina a leitura. Nesse regime, a incerteza relativa pode ultrapassar trinta por cento, e a interpretação fisiológica passa a depender mais da curva de calibração do equipamento do que da resposta real da planta. Nesses casos, o mais seguro é complementar com medidas de potencial hídrico da folha e com imagens de fluorescência da clorofila para confirmar se a queda na condutância corresponde a fechamento real e não a colapso estrutural do sistema.
A técnica de réplica com verniz também tem limite. Em folhas muito pubescentes ou com superfícies cerosas pronunciadas, a réplica pode capturar apenas a textura da cutícula e não a geometria real dos ostíolos. Aí o melhor é usar microscopia eletrônica de varredura ou microtomografia para validar a geometria em um subconjunto de amostras e calibrar o método indireto. Não é rápido, mas evita que você publique dados que parecem bonitos e não representam a realidade anatômica.

O que funciona quando o protocolo padrão falha
Quando a resposta estomática não segue o padrão esperado, como ocorre em variedades selecionadas para tolerância a seca com sensibilidade alterada ao ABA, o primeiro passo é verificar se a variável que você está acompanhando é a correta. Em muitas linhagens, a relação entre condutância estomática e eficiência do uso da água muda de patamar, e os modelos clássicos de optimality não se aplicam sem ajuste. A alternativa prática é usar dados de campo para calibrar um parâmetro de sensibilidade específico da cultivar antes de generalizar para outras condições. Outra situação em que o método padrão falha é quando há presença de patógenos que afetam diretamente as células-guarda. Alguns fitopatógenos manipulam a abertura estomática a favor da infecção, abrindo os estômatos para entrar pelos hidatódios ou fechando-os para evitar perda de água e facilitar a colonização. Se você estiver estudando respostas a estresses abióticos e notar comportamentos atípicos, verifique a saúde da planta antes de concluir que o mecanismo fisiológico está alterado. O problema pode ser biótico e não uma mudança no protocolo de abertura e fechamento. Em resumo, o tema exige atenção aos detalhes de medida, ao contexto fisiológico e às limitações instrumentais. A ciência do estômato não é apenas sobre luz, potássio e água. É sobre como esses fatores interagem em tempo real, sobre variações regionais na folha, sobre a história prévia da planta e sobre erros sistemáticos que aparecem em qualquer medição de campo ou laboratório. Se você levar isso em conta desde o início, os dados ficam mais confiáveis e as conclusões menos surpreendentes no final do experimento.
Galeria
-
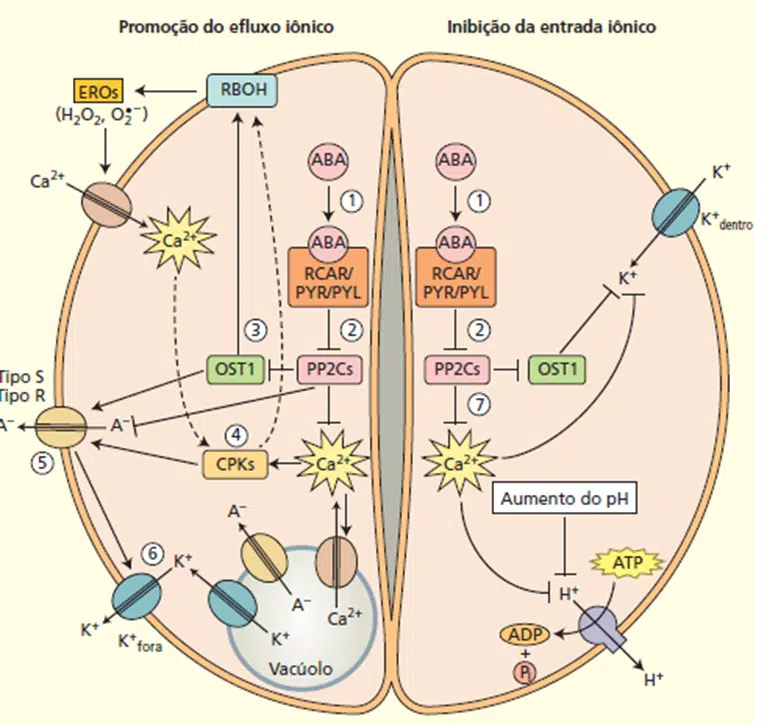
Mecanismo de abertura e fechamento dos estômatos -

Abertura e fechamento das células de guarda dos estômatos | Vetor Premium -

Estômatos - O que são, onde, para que servem, abertuda e fechamento
