Estrutura Do Nucleo

O que é o núcleo e por que ele se importa
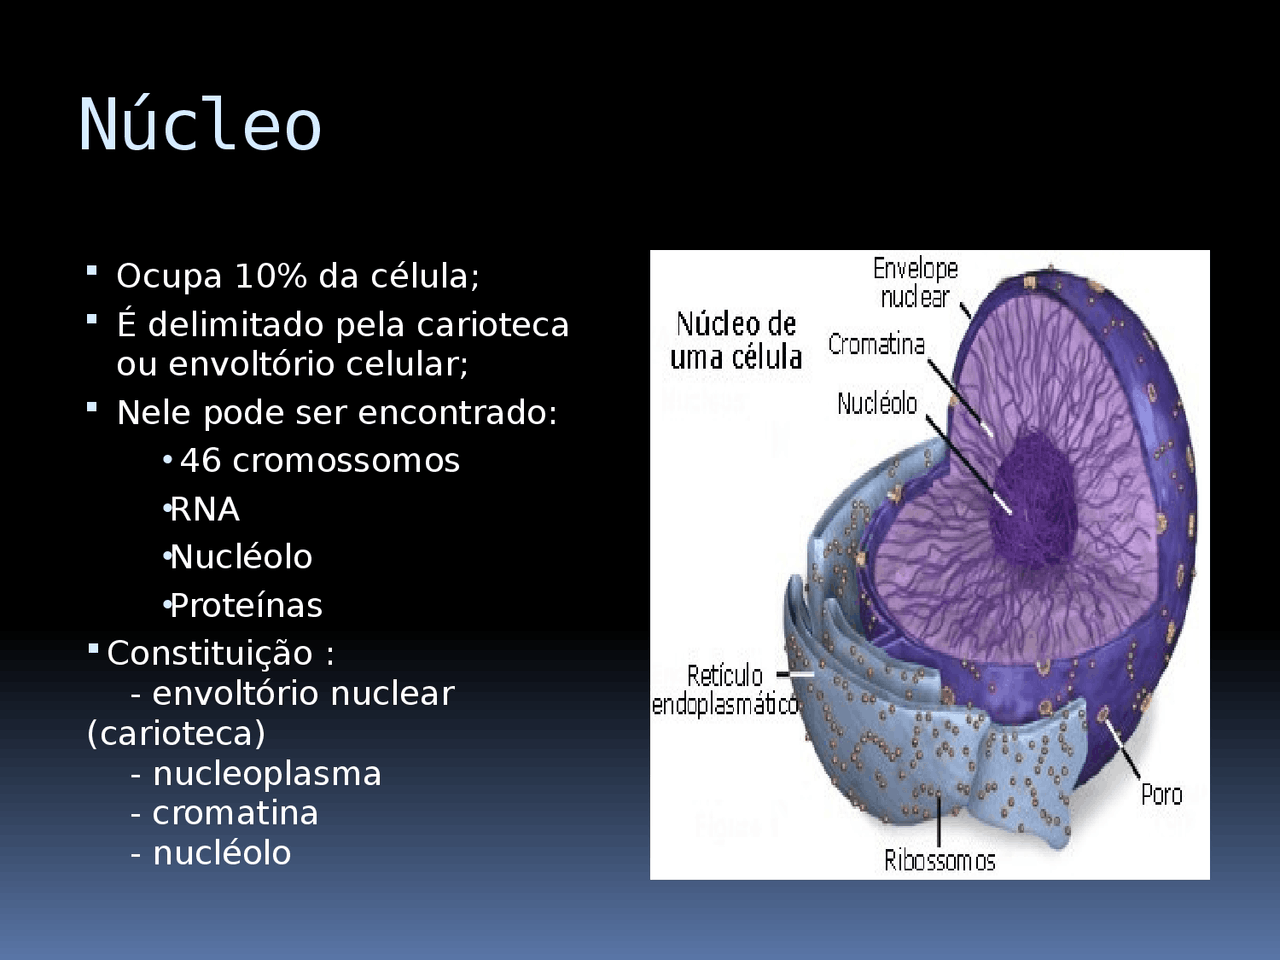
A estrutura do nucleo nada mais é do que a organização física e funcional do compartimento que concentra o material genético de uma célula eucariótica. Parece óbvio, mas a maioria dos tutoriais que você encontra na internet trata isso como se fosse apenas uma lista de partes com nomes bonitos. A realidade é que o núcleo é uma máquina dinâmica, e entender como ela funciona na prática exige ir além da ilustração do livro didático. O núcleo é delimitado por um envelope nuclear, que é uma bicamada lipídica dupla. A membrana nuclear externa continua diretamente com o retículo endoplasmático rugoso, e a interna fica voltada para o nucleoplasma. Entre essas duas membranas existe o espaço perinuclear, uma fenda de cerca de 20 a 40 nanômetros. A membrana interna possui proteínas de adesão específicas, como a Lamin B Receptor e a Emerina, que ancoram a lâmina nuclear e conectam o envoltório ao citoesqueleto. Dentro desse compartimento, a cromatina ocupa grande parte do volume. Ela não é um amontoado homogêneo. Existem regiões de euchromatina, que estão mais descondensadas e metabolicamente ativas, e heterocromatina, que é densa e geralmente silênciada transcriptionalmente. A heterocromatina pode ser constitutiva, encontrada permanentemente em regiões como os centrômeros e telômeros, ou facultativa, que muda de estado dependendo do tipo celular ou da fase do ciclo.
O nucleolo é outra estrutura crítica. Ele não possui membrana própria. É uma região onde ocorre a transcrição dos genes de RNA ribossômico, o processamento dessas transcrições e a montagem das subunidades ribossomais. Células com alta demanda proteica, como neurônios motores ou células da glândula salivar, possuem nucleolos grandes e visíveis. Células em repouso podem ter nucleolos praticamente invisíveis. Por fim, há os poros nucleares, complexos proteicos enormes que conectam o nucleoplasma ao citoplasma. Cada poro é formado por cerca de 30 tipos diferentes de proteínas, chamadas nucleoporinas, montadas em uma estrutura simétrica que forma um canal central com cerca de 9 nanômetros de diâmetro quando em estado aberto. Uma coisa que poucos explicam direito é a lâmina nuclear. Ela forma uma rede de filamentos intermediários feita de laminas A, B e C, situada logo abaixo da membrana nuclear interna. A lâmina dá suporte mecânico ao envelope e organiza a heterocromatina periférica. Quando ocorre a mitose na maioria das células animais, a lamina é fosforilada pela quinase CDK1, sofrendo despolimerização, o que permite a quebra do envelope nuclear. A reposição da lâmina só acontece quando a célula entra em G1 novamente. Isso é importante porque defeitos na síntese ou montagem da laminA estão ligados a várias doenças, entre elas a progeria de Hutchinson-Gilford, onde o acúmulo de uma forma truncada da laminA chamada progerina causa envelhecimento celular acelerado.
Como ler a estrutura do nucleo de verdade
Se você está tentando visualizar ou interpretar a organização nuclear em microscopia, aqui vai um problema real que eu encontrei na prática. Fiz imunofluorescência para visualizar a distribuição de heterocromatina usando anti-H3K9me3, e as imagens mostravam um padrão completamente inconsistente entre camadas de células no mesmo experimento. As células em monocamadaem manchas nucleares bem definidas, enquanto as que estavam parcialmente confluentes tinham distribuição difusa. O que acontecia é que o grau de confluência alterava a tensão mecânica transmitida pelo citoesqueleto de actina até o núcleo via complexos LINC. Células mais espaçadas eram menos tensionadas, o que desorganiza a ancoragem da heterocromatina na periferia nuclear. A solução foi normalizar todas as contagens celulares antes da fixação e padronizar o tempo de aderência para 24 horas. Sem esse controle, seus dados de organização nuclear vão variar sem motivo aparente. Outro detalhe que ninguém destaca é a relação entre tamanho nuclear e conteúdo de DNA. O volume nuclear não é proporcional à quantidade de cromatina de forma linear. Células aneuploides, comuns em linhagens cancerígenas, frequentemente apresentam núcleos aumentados desproporcionalmente ao ganho cromossômico. Isso acontece porque fatores de transcrição e componentes da maquinaria de splicing são recrutados em quantidades relativas, não absolutas, ao aumento do volume nuclear. Se você está medindo área nuclear como biomarcador em imagens de patologia, tome cuidado com essa armadilha. Um núcleo grande não significa necessariamente mais DNA, e pode indicar distúrbios na regulação do ciclo celular ou na integridade do envelope. A permeabilidade seletiva dos poros nucleares também é mais complexa do que parece. Moléculas com menos de 40 quilodaltons difundem livremente. Acima disso, é necessário um sinal de localização nuclear (NLS) e importinas para o transporte ativo. Mas o NLS por si só não garante entrada. A afinidade da importina pelo NLS e a concentração de RanGTP no lado oposto do poro determinam a eficiência do transporte. Eu já vi projetos inteiros falharem porque um construto de proteína de fusão tinha um NLS teórico que, na prática, estava mascarado por uma dobra proteica adjacente. O conserto foi adicionar um NLS exposto e acessível no termino C-terminal, separado da proteína de interesse por um peptídeo flexível de glicina e serina. Isso resolveu o problema de importação nuclear em cerca de uma semana de ensaios.

O nucleoplasma em si também merece atenção. Ele não é um meio aquoso qualquer. É viscoso, rico em proteínas, RNA e íons, e sua composição iônica é diferente do citoplasma. A concentração de magnésio no nucleoplasma é significativamente mais alta, o que influencia diretamente o empacotamento da cromatina e a atividade de polimerases. Se você está fazendo estudos de acessibilidade cromatínica ou ChIP, o pH e a concentração de magnésio do tampão de lise nuclear podem alterar drasticamente seus resultados. Um buffer com magnésio muito baixo pode causar desmontagem prematura de complexos de cromatina, enquanto níveis elevados podem promover agregação não específica.
Limitações que ninguém comenta
A estrutura do nucleo descrita acima é uma generalização baseada principalmente em células epiteliais cultivadas e linfócitos. Tecidos diferenciados como neurônios, miócitos e hepatócitos apresentam variações significativas. Neurônios, por exemplo, podem ter núcleos com invaginações profundas da membrana nuclear que alteram completamente a relação superfície-volume do envelope. Hepatócitos são frequentemente anucleados ou multinucleados em proporções altas. Aplicar modelos derivados de culturas celulares a esses tecidos leva a interpretações equivocadas. Outra limitação séria é que a microscopia de fluorescência convencional não consegue resolver detalhes abaixo de cerca de 200 nanômetros. Muitas estruturas nucleares, incluindo domínios de topologicamente associadas (TADs) e compartimentos A/B da cromatina, estão nessa faixa subdifrativa. Técnicas como super-resolução (STED, PALM, STORM) ou microscopia eletrônica são necessárias para imagens verdadeiramente precisas, mas cada uma delas introduz artefatos próprios. Fixação química pode induzir contração ou expansão artificial do núcleo. A preparação para microscopia eletrônica de cisão criogênica preserva melhor a morfologia, mas é muito mais cara e de execução complexa. O envelope nuclear também não é uma barreira estanque. Durante a migração celular através de espaços estreitos, como leucócitos passando por capilares ou células tumorais invadindo tecidos, o envelope pode sofrer rupturas temporárias. Essas rupturas permitem a mistura entre nucleoplasma e citoplasma e causam dano ao DNA. Células com defeitos nas proteínas de reparo de membrana nuclear, como as envolvidas no complexo ESCRT-III, acumulam rupturas críticas. Esse é um tópico quente em oncologia, mas ainda carece de métodos confiáveis para detecção em tecido tumoral humano.
Se o seu objetivo é apenas identificar a presença ou ausência de núcleo em uma amostra, técnicas simples como coloração com hematoxilina são suficientes. Para analisar organização interna, considere combinar immunofluorescência multiplex com análise quantitativa de imagem, em vez de depender apenas da microscopia de campo claro. A primeira opção fornece dados muito mais informativos sobre distribuição espacial de marcadores específicos dentro do núcleo.
Galeria
-
Estrutura e Função do Núcleo Celular | PDF | Núcleo celular | Célula ... -

O ácido Desoxirribonucleico Presente No Interior Do Nucleo - FDPLEARN -

Núcleo celular, o que é? Funções, estrutura nuclear e divisão celular

