Estrutura Que Ocorre A Síntese Proteica

A maquinaria da síntese proteica dentro da célula
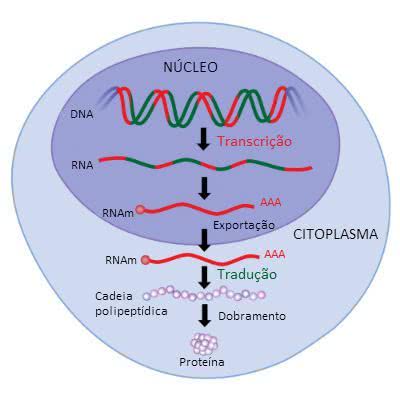
A síntese proteica acontece em estruturas bem definidas dentro da célula. O ribossomo é o principal responsável por montar a cadeia de aminoácidos, mas ele não trabalha sozinho. Todo o processo depende de uma rede de organelas e componentes que se comunicam o tempo todo. A estrutura que ocorre a síntese proteica tem dois cenários principais. No citoplasma livre, os ribossomos fazem proteínas que vão atuar dentro do próprio citosol. Já na face do retículo endoplasmático rugoso, os ribossomos sintetizam proteínas destinedas à secreção, membrana ou organelas do sistema de endomembranas. A diferença é funcional, não apenas espacial. Eu já vi aluno confundir isso na prática. Ele achava que ribossomo livre e ribossomo ancorado eram estruturas diferentes. Não são. O ribossomo é o mesmo complexo de RNA ribossômico e proteínas. O que muda é o destino da proteína que está sendo sintetizada. Se a sequência sinal de reconhecimento aparece nos primeiros aminoácidos, o ribossomo vai para o RE. Senão, fica no citosol.
Componentes estruturais envolvidos
O ribossomo em si é um complexo ribonucleoproteico. Na bactéria, temos as subunidades 50S e 30S formando o ribossomo 70S completo. Nos eucariotos, as subunidades são 60S e 40S, resultando no 80S. Essa nomenclatura vem do coeficiente de sedimentoção de Svedberg, que mede a taxa de sedimentação durante centrifugação. Não é uma medida linear de tamanho, então 50S mais 30S não dá 80S geometricamente, dá 70S funcionalmente. Dentro do ribossomo existem três sítios funcionais. O sítio A recebe o aminoacil-ARNt entrante. O sítio P mantém o peptidil-ARNt com a cadeia em crescimento. O sítio E é a saída do ARNt desacylated. A translocação move o ribossomo um códon adiante, transferindo o peptídeo do sítio P para o A, e do A para o E. Esse movimento consome GTP através da elongation factor G em bactérias ou EF-2 em eucariotos. O retículo endoplasmático rugoso é revestido por ribossomos na sua face citosólica. A membrana do RE tem a translocase, um canal proteico formado pelas subunidades Sec61 em eucariotos ou SecYEG em bactérias. Esse canal permite a passagem da cadeia polipeptídica nascente para o lúmen do RE enquanto a síntese ainda está acontecendo. É uma translocação co-traducional, não pós-traducional.
ETapas do processo estrutural
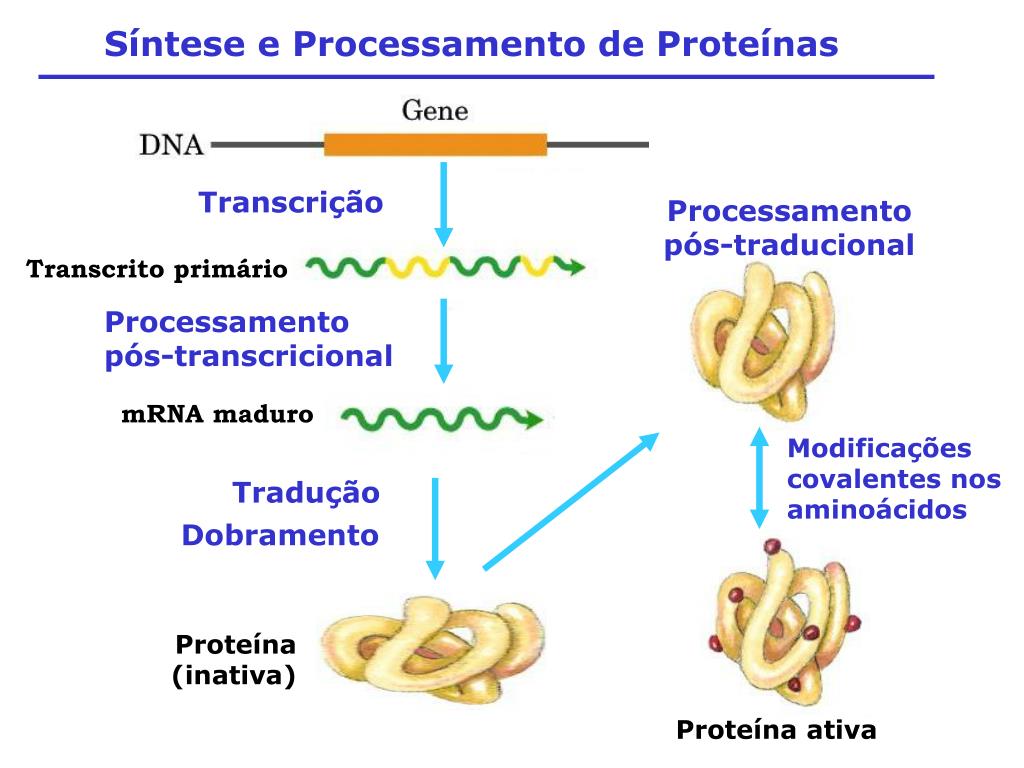
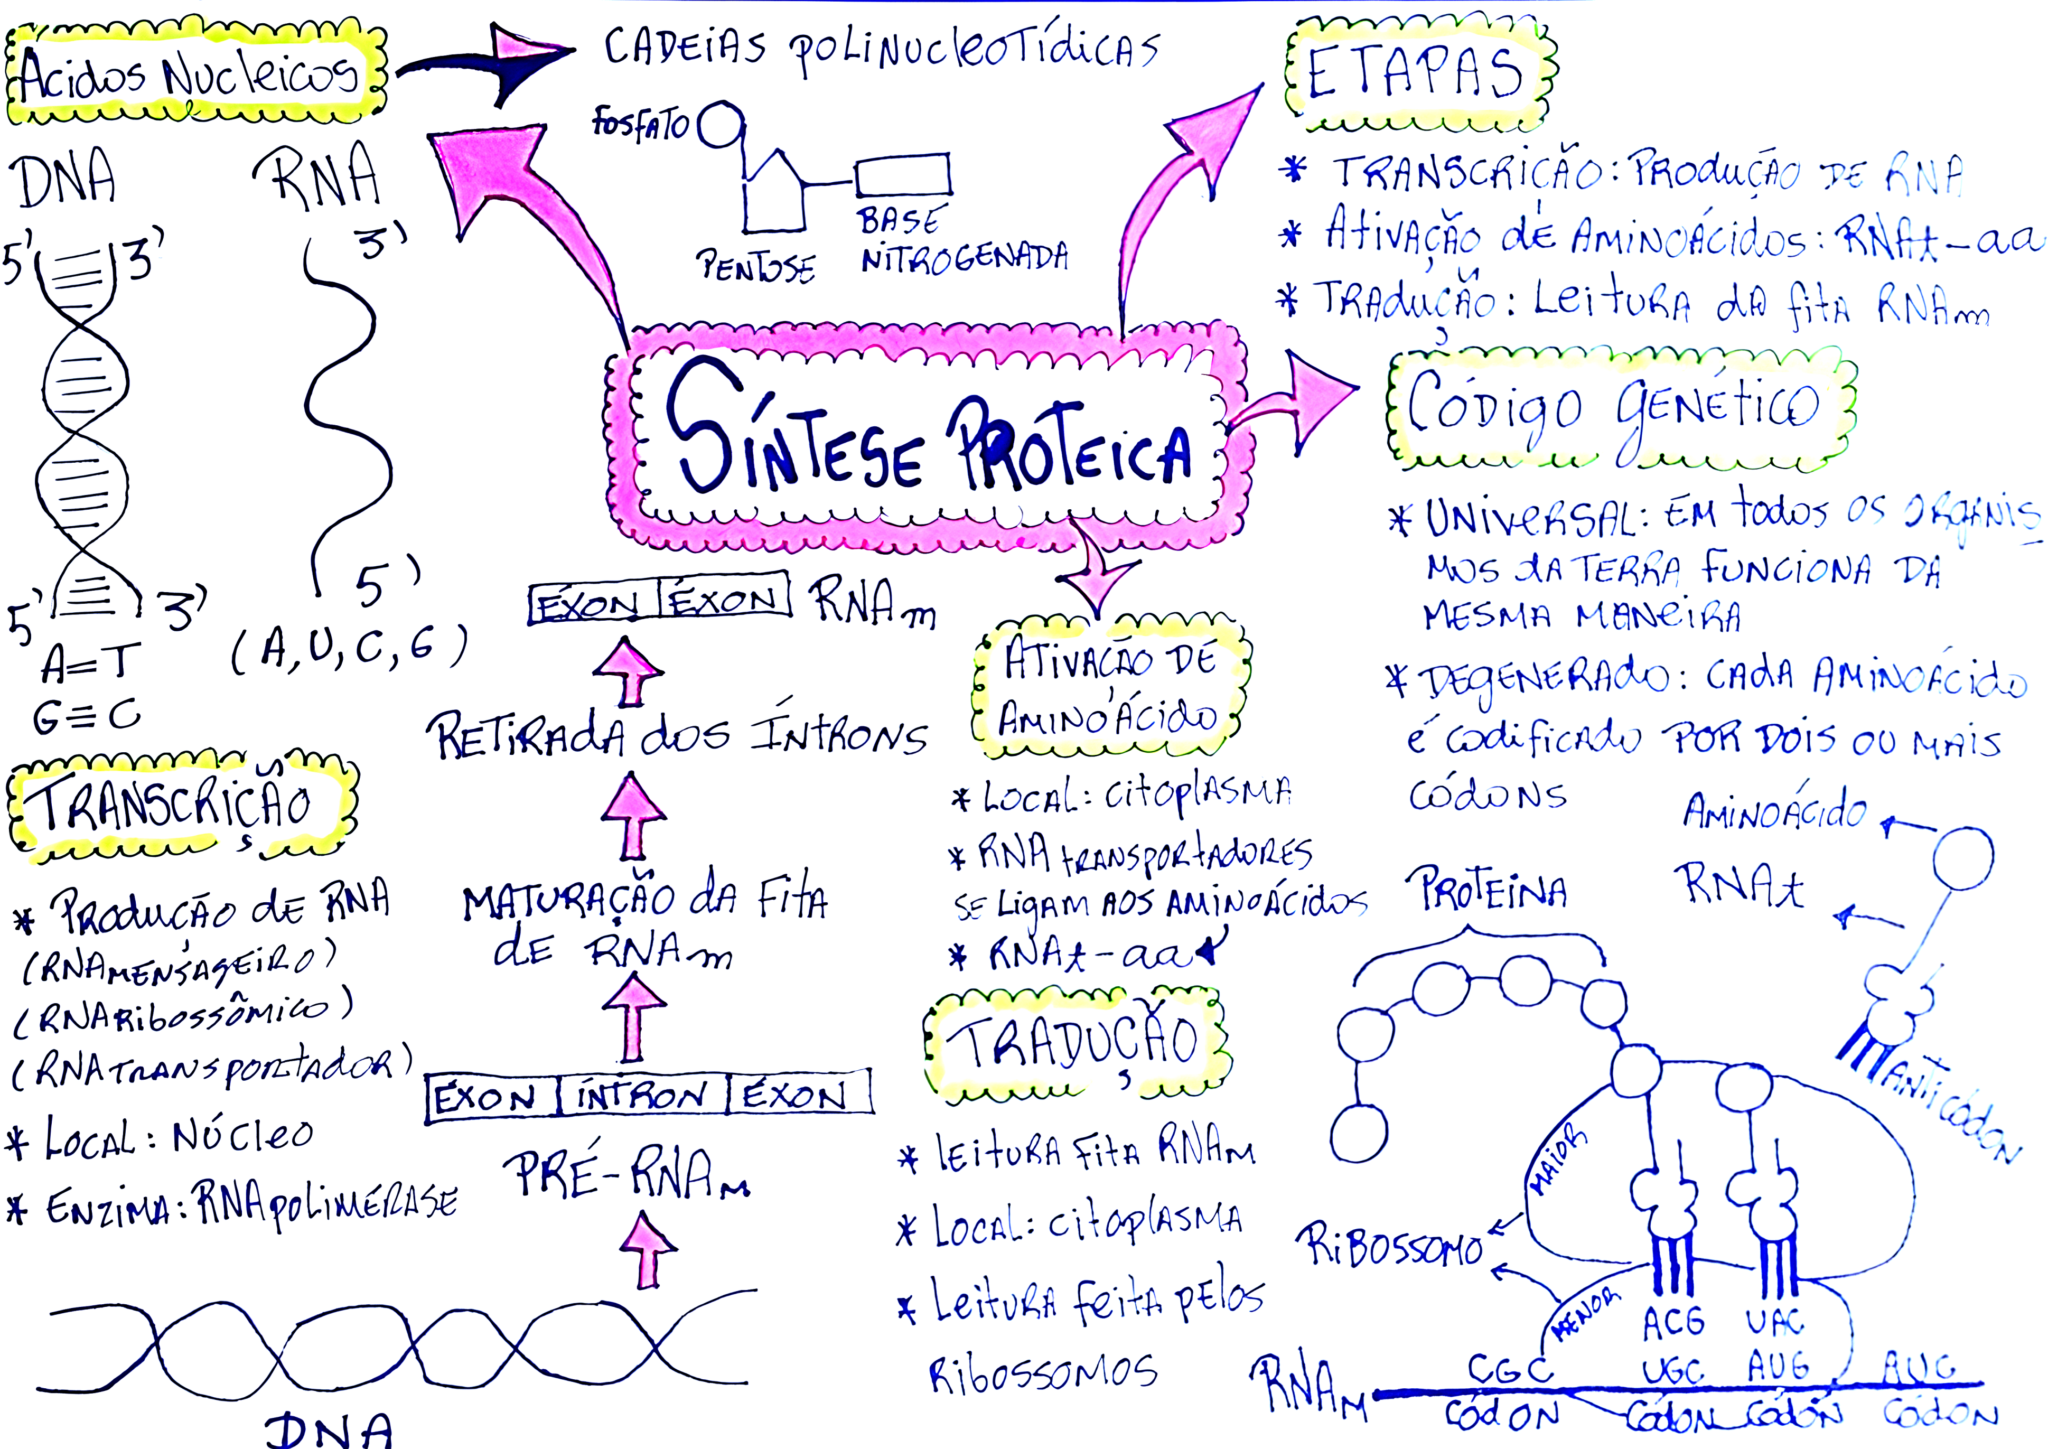
A iniciação requer o reconhecimento do códon de start AUG pela metionina iniciadora. Em bactérias, o ARNt iniciador carrega N-formilmetionina, não metionina comum. O fator de iniciação IF-3 garante que a subunidade pequena se ligue primeiro ao ARNm antes do início correto. Sem esse controle, o ribossomo poderia montar em códons errados e produzir proteínas truncadas ou completamente fora do frame. A elongação é um ciclo repetitivo. Cada rodada envolve entrada do aminoacil-ARNt correto no sítio A, formação da ligação peptídica pelo peptidil transferase rRNA, e translocação. O rRNA 23S em bactérias age como ribozima, não uma proteína. Isso significa que a catálise da ligação peptídica é feita por RNA, não por enzima proteica. É um dosarguments mais fortes para o mundo de RNA na origem da vida. A terminação ocorre quando um códon de stop entra no sítio A. Releases factors reconhecem UAA, UAG ou UGA. Em bactérias, RF-1 lê UAA e UAG, enquanto RF-2 lê UAA e UGA. RF-3 é um GTPase que auxilia na liberação. Em eucariotos, eRF-1 faz o reconhecimento universal dos três códons de stop, e eRF-3 é o fator GTPase auxiliar.
Percanceiros comuns e falhas estruturais
Mutações no sítio A do ribossomo podem levar a leitura incorreta de códons de stop. Isso causa readthrough, onde a proteína continua sendo sintetizada além do normal. Em alguns casos, isso gera proteínas tóxicas por ganho de função. Em outros, a proteína alongada é rapidamente degradada pelo proteassoma, causando perda de função. O diagnóstico diferencial depende do contexto celular. O dobramento proteico dentro do RE depende de chaperonas como BiP e calnexina. Se o dobramento falha, a proteína é retrotranslocada para o citoplasma e degradada via ubiquitina-proteassoma. Isso é a ERAD, endoplasmic reticulum-associated degradation. Em doenças como a fibrose cística, a mutação deltaF508 na proteína CFTR causa má dobramento no RE. A proteína é identificada como defeituosa e degradada antes de chegar à membrana. O tratamento com corretores de dobramento tenta contornar esse problema, mas com sucesso limitado. A tradução em ribossomos livres produz proteínas citosólicas. Essas proteínas precisam ser dobradas por chaperonas como Hsp70 e chaperoninas como TRiC. Se o dobramento falha, agregados se formam. Agregados proteicos são difíceis de dissolver e podem formar inclusion bodies em sistemas de expressão recombinante. Em laboratório, isso reduce drasticamente o yield de proteína solúvel.
Aspectos práticos e aplicações
A estrutura que ocorre a síntese proteica é alvo de múltiplos antibióticos. A tetraciclina bloqueia a entrada do aminoacil-ARNt no sítio A da subunidade 30S. O cloranfenicol inibe a atividade peptidil transferase da subunidade 50S. A eritromicina bloqueia o túnel de saída da cadeia peptídica na subunidade 50S. A estreptogramina combina ação em ambos os sítios. Esses antibióticos são seletivos porque o ribossomo bacteriano 70S é estruturalmente diferente do eucariótico 80S. Em biologia molecular, a purificação de ribossomos activos envolve centrifugação em gradiente de sacarose. Fracionamos ribossomos monossômicos, dissômicos e polissômicos. Polissomas são múltiplos ribossomos traduzindo o mesmo ARNm simultaneamente. Isso aumenta a eficiência de produção proteica. Um único ARNm pode carregar dez a vinte ribossomos ao mesmo tempo, produzindo dezenas de cópias da proteína em paralelo. A síntese proteica in vitro usa extratos celulares removidos de conteúdo citoplasmático. O sistema mais comum é o extracto de reticulócito para tradução de mRNA em inglês, ou o extracto de ovo de Xenopus para sistemas eucarióticos. Esses sistemas preservam a maquinaria traducional mas carecem de regulação celular completa. Para estudos de dobramento co-traducional, é necessário adicionar retículo endoplasmático microsomal ao sistema.
Limitações do conhecimento atual
Não compreendemos completamente como o ribossomo escolhe o frame de leitura correto. Erros de frame ocorrem espontaneamente em frequência de aproximadamente 10^-3 por códon. A célula possuí mecanismos de nonsense-mediated decay para eliminar mRNAs com códons de stop prematuros, mas esses mecanismos falham em certos contextos genéticos. Mutações no sítio de splice podem criar novos códons de stop que escapam da vigilância. A tradução de sequências repetitivas causa problemas estruturais conhecidos. Sequências de aminoácidos repetidos como poliglutamina em Huntington levam a agregação proteica. Ribossomos podem escorregar em sequências de códons idênticos, causando frameshift translacional. Isso gera variantes proteicas não codeadas pelo genoma. O phenomenon é observado em doenças neurodegenerativas e em certos cânceres. O dobramento proteico co-traducional no RE é um processo ainda pouco quantificado in vivo. A cinética de inserção através da translocase Sec61 compete com a velocidade de síntese peptídica. Se a síntese é muito rápida, domínios proteicos podem começar a dobrar antes de atravessar completamente o canal. Isso gera intermediários de dobramento incorretos. Em sistemas recombinantes, a redução da temperatura de indução frequentemente melhora o dobramento, provavelmente por desacelerar a taxa de síntese e dar mais tempo para o dobramento correto.
Galeria
-

Ribossomos e Síntese Proteica – Atlas Interativo de Biologia Celular -

A Síntese Proteica Conhecida Como - NAZAEDU -
MAPA MENTAL SOBRE SÍNTESE PROTEICA - Maps4Study
