Estruturas Das Angiospermas
Organização estrutural das angiospermas: o que você realmente precisa saber
O estudo das estruturas das angiospermas começa com uma confusão comum: a maioria dos materiais didáticos apresenta raiz, caule, folha, flor, fruto e semente como se fossem compartimentos estanques. Na prática, isso raramente é verdade. As transições são graduais e muitoscharacters morfológicos se sobrepõem entre órgãos, o que gera erros de identificação quando você está trabalhando com material de campo ou mesmo em lâminas histológicas. Vou organizar isso da forma que costumo explicar para alunos de graduação que precisam aplicar o conhecimento, não apenas decorar para prova. O sistema vascular é onde tudo se conecta, então comece por aí.
Estruturas das angiospermas: do meristema ao órgão maduro
As angiospermas possuem dois sistemas de transporte principais — o xilema e o floema — organizados de maneiras distintas entre monocotiledôneas e eudicotiledôneas. Em eudicotiledôneas, o cilindro vascular no caule segue padrão periférico, com feixes colaterais fechados dispostos em anel. Em monocotiledôneas, os feixes vasculares estão espalhados pelo parênquima fundamental, sem anel definido. Isso parece trivial, mas é o primeiro filtro para identificação correta de cortes transversais. O epiderme não é apenas uma camada protetora passiva. Nos órgãos aéreos, ela carrega estômatos com aparelhos celulares especializados — normalmente dínicos ouaniçínicos em angiospermas — e tricomas de formas variadas. A cutícula, composta por políesteres e ceras, varia espessura conforme a exposição à luz e disponibilidade hídrica. Em espécies xeromórficas, a cutícula pode ultrapassar 2 µm, enquanto em hidrófitas submersas praticamente não existe. Ignorar essa variação leva a interpretações erradas de adaptações funcionais. A endoderme, com sua listra de Caspary, é outro ponto que as pessoas costumam tratar superficialmente. Ela controla o fluxo apoplástico para simplástico no córtex radicular. Sem essa barreira seletiva, a planta não consegue regular a entrada de íons. Em cortes mal preparados, a listra de Caspary muitas vezes não se cora adequadamente, e você pode confundir uma endoderme madura com células do córtex interno. Use corantes como a azul de afa ou a safranina que realçam a suberina; isso faz diferença.
Quanto aos tecidos de preenchimento, o parênquima clorofiliano se diferencia em paliçádico e lacunoso nas folhas. Mas essa divisão não é universal. Espécies com folhas hipostomáticas ou adaptadas a ambientes com alta irradiância podem apresentar palissada bipeçada, com camadas de células paliçádicas em ambos os lados da nervura central. Já em plantas de sombra, o parênquima paliçádico é pouco diferenciado, quase equivalente ao parênquima lacunoso. Classificar cegamente tudo como "paliçádico" ou "lacunoso" gera classificações erradas.

Floração e estruturas reprodutivas: onde a coisa fica complicada
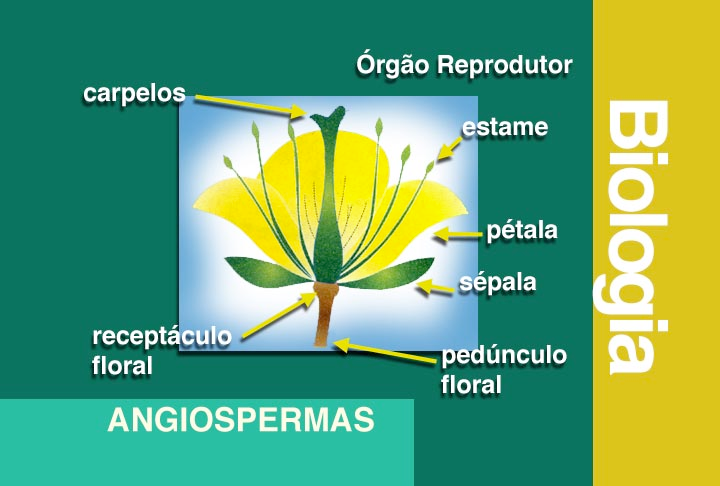
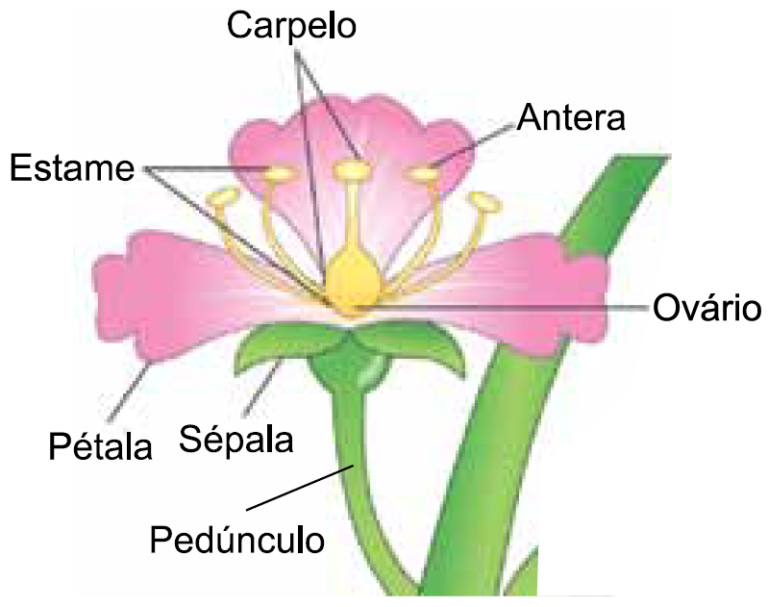
A flor ébasicamente um ramo modificado, mas dizer isso não ajuda muito quando você precisa descrever a organização de um ginocério ou identificar a placentação. Os carpelos podem ser soldados (cronógamos) ou livres (apocárpicos), e isso afeta diretamente a estrutura do ovário e o número de loculos. Frutos resultantes de ginécios sincárpicos com placentação axilar terão número de loculos igual ao de carpelos fundidos. Isso é padrão, mas existem exceções interessantes. Um caso que encontro frequentemente: placentação parietal em brassicáceas. O ovário é súper, com dois carpelos, mas o septo falso (reseptamento) divide oovário em dois loculos. A verdade é que o septo permanente só se forma parcialmente, e os óvulos se fixam nas bordas dos carpelos. Se você estiver analisando um corte longitudinal e esperar encontrar carpelos claramente separados, vai ter dificuldades. A solução é fazer cortes seriados para reconstruir a arquitetura real do ovário. A microsporogênese segue um caminho previsível: a célula-mãe de microsporos realiza meiose e produz ttrades de microsporos ou tétrades isoladas. A diferença depende do tipo de divisão celular — dictiótema ou glutinante — e varia entre famílias. Em algumas eudicotiledôneas, os microsporos permanecem unidos temporariamente, o que pode confundir a contagem cromossômica em preparações temporárias. Sempre confirme com material fixado e corado adecuadamente, preferencialmente com acetocarmim ou acidfucsina.
Megagametogênese e desenvolvimento do embrião
O sac embrionário das angiospermas típicas segue o modelo Polygonum, com sete células e oito núcleos: três sinérgides, um ovículo, três antípodes e dois núcleos polares. Esse padrão cobre cerca de 70% das espécies, mas as variações são significativas. Em famílias como Orkidaceae e algumas Ericaceae, o desenvolvimento é helobial, com divisão assimétrica do zigoto inicial do embrião. Os rudimentos seminais também variam — crasinucleados, tenuinucleados, bitegintados ou unitegintados — e isso influencia a estrutura do óvulo maduro. A dupla fecundação é o diferencial das angiospermas. Um gameta masculino fertiliza o óvulo, formando o zigoto diploide. O outro fusiona-se com os dois núcleos polares, originando o endosperma triploide. Esse endosperma pode ser do tipo nuclear (com divisões nucleares sem citocinese imediata, comum em monocotiledôneas como o milho) ou celular (com citocinese simultânea às divisões, mais frequente em eudicotiledôneas). Confundir os dois tipos leva a erros na interpretação de seções de sementes maduras. Quanto ao desenvolvimento embrionário, o padrão referencialembra o de Arabidopsis thaliana: globular, em forma de coração, alongado. Mas espécies com endosperma nuclear, como Poaceae, apresentam embriões mínimos comparativamente, com um cotilédone especializado — o escutelo — que absorve nutrientes do endosperma durante a germinação. Isso é fundamental para entender a arquitetura sementeira nessas famílias.
Pontos onde o conhecimento teórico falha na prática
A principal armadilha que vejo repetidamente é a tentativa de aplicar estruturas foliares de eudicotiledôneas a monocotiledôneas sem considerar a diferença na venação. Folhas de monocotiledôneas frequentemente exibem venação paralela, mas isso não significa que a anatomia interna seja idêntica. A distribuição dos feixes vasculares, a presença de bulliformes cells em Poaceae, e a organização do parênquima ao redor dos feixes seguem padrões distintos. Já trabalhei com uma coleção de lâminas de Zea mays onde o reconhecimento errado da anatomia foliar levou a uma classificação equivocada como monocotiledônea atípica. O problema era que os cortes estavam inclinados, distorcendo a aparência dos feixes. Outro problema recorrente é a interpretação de frutos. Frutos secos deiscentes vs. indeiscentes, frutos carnosos vs. secos — a terminologia parece clara nos livros, mas na prática, fragmentação de frutos em espécimes herborizados destrói informações cruciais. A parede do ovário (pericarpo) pode se perder parcialmente, e restam apenas fragmentos que parecem sementes. Sempre analise a inserção dos frutos no receptáculo e a presença de vestígios do cálice ou da corola antes de classificar. Também é importante reconhecer que a anatomia comparada de angiospermas tem limites. Caracteres anatômicos úteis em nível de família ou gênero frequentemente se sobrepõem em nível específico. Para diferenciação específica, caracteres morfológicos combinados com dados moleculares são mais confiáveis. A anatomia é uma ferramenta de triagem, não uma solução definitiva para taxonomia de precisão.
Como abordar o estudo das estruturas das angiospermas de forma eficiente
Recomendo começar com cortes transversais de caule jovem de eudicotiledônea (como Ricinus ou Zea como contraste) para consolidar a diferença entre protoxilema e metaxilema, córtex e medula. Em seguida, avance para folhas com diferentes tipos de venação. Use sempre cortes finos — entre 8 e 12 µm — e corantes que contrastem bem lignina (safranina) com celulose (azul de metileno ou clorazur). Para estruturas reprodutivas, trabalhe com anteras em diferentes estágios de maturação. Um único botão floral pode conter esporângios em mitose, meiose e pós-meiose. Sequenciar esses estágios em cortes seriados leva tempo, mas é a única forma de visualizar corretamente a formação da parede do esporo e a liberação dos microsporos. Paciência aqui economiza horas de retrabalho. Na dúvida sobre a classificação de um preparado, cross-reference com chaves dicótomicas anatômicas e, se disponível, com bases de dados como o Angiosperm Wood Anatomy ou o BSTO (Botanical Stains Training Online). Dados morfológicos sozinhos raramente são suficientes, e a anatomia interna é o diferencial que separa uma identificação acurada de um palpite bem vestido.
Galeria
-

Angiospermas -

Angiospermas: características, ciclo de vida e grupos - Toda Matéria -

Angiospermas: Características, Estrutura, Reprodução E Importância – SBMOQQ
