Exercícios Sobre Enzimas

Como lidar com exercícios sobre enzimas sem perder tempo
A maioria dos exercícios sobre enzimas que aparecem em materiais didáticos segue um padrão que não reflete como o conteúdo realmente é cobrado. Você encontra cinética de Michaelis-Menten, inibição enzimática, fatores que afetam a atividade e aí vão as questões de múltipla escolha ou cálculo direto. O problema é que os enunciados costumam esconder variáveis ou pedir para interpretar gráficos sem dar todos os dados explicitamente. Eu já perdi minutos valiosos em exercícios onde a temperatura ótima era deduzida de um gráfico com escala mal marcada, e a resposta correta dependia de notar que o eixo Y estava em unidades relativas, não absolutas. Antes de começar a resolver, saiba o que está sendo cobrado. Os exercícios se dividem em categorias razoavelmente distintas. A primeira envolve cálculo de Vmax e Km a partir de dados cinéticos, o que exige domínio da equação de Michaelis-Menten e da linearização por Lineweaver-Burk. A segunda trata de tipos de inibição — competitiva, não competitiva e acompetitiva — e como cada uma altera os parâmetros cinéticos. A terceira aborda fatores físico-químicos como pH, temperatura e concentração de substrato. E existe ainda a categoria mais traiçoeira: questões de interpretação de gráficos e tabelas que parecem simples mas testam se você entende o comportamento real da enzima, não apenas a teoria de livro. O cálculo cinético em si é direto quando os dados estão limpos. Dado um conjunto de [S] e velocidades iniciais, você pode ajustar a equação de Michaelis-Menten ou construir o gráfico duplo-reverso para extrair Km e Vmax. Na prática, muitos exercícios entregam os dados de forma que o ajuste manual seja inviável sem calculadora ou software. Quando isso acontece, a solução é usar uma planilha com função de regressão não linear ou simplesmente plotar no Origin ou mesmo no Excel com uma curva de ajuste polinomial de grau adequado. Isso reduz o tempo de processamento dos dados de cerca de 20 minutos para 3 minutos no máximo.
Um ponto que poucos alunos percebem de cara é que a inibição acompetitiva gera um padrão muito específico no gráfico de Lineweaver-Burk: linhas paralelas. Se você decorar apenas que inibidores alteram Km e Vmax, vai errar questões que pedem para identificar o tipo de inibição a partir de retas sobrepostas. A inibição competitiva mantém o mesmo Vmax e aumenta o Km aparente, o que se reflete em retas que se cruzam exatamente no eixo Y. Já a não competitiva pura afeta apenas o Vmax, mantendo o Km inalterado, e as retas se cruzam no eixo X. Inibidores mistos são ainda mais chatos porque o ponto de intersecção fica fora dos dois eixos, em algum quadrante do gráfico. Eu já vi questões de prova em que o gráfico era propositalmente desenhado para parecer uma inibição competitiva quando na verdade era um inibidor misto com alpha diferente de alpha prima. A dica prática é sempre verificar se todas as retas passam pelo mesmo ponto de intersecção nos eixos antes de classificar. Quanto aos fatores ambientais, o pH afeta enzimas de maneira diferente dependendo do sítio ativo. Enzimas que têm resíduos de histidina no sítio ativo, por exemplo, apresentam curva de atividade em sino centrada perto do pH 6 a 7, porque o pKa da imidazol é aproximadamente 6,0. Se um exercício pede o pH ótimo sem dados experimentais, mas menciona um mecanismo com transferência de prótons envolvendo histidina, a resposta provável é um pH próximo a 6. Não é uma regra universal, mas é um Padrão observável com frequência. Temperatura funciona de forma análoga: a atividade aumenta até um certo ponto e depois despenca devido à desnaturação. O problema é que muitos exercícios tratam a desnaturação como instantânea, quando na realidade ela é um processo progressivo. Uma enzima mantida 10 graus acima do ótimo por 5 minutos pode ter perdido 40% da atividade, não 100%. Exercícios que apresentam dados de sobrevivência enzimática ao longo do tempo em diferentes temperaturas exigem que você pense em cinética de desnaturação, não apenas em um gráfico simples de atividade versus temperatura. Um caso específico que eu enfrentei recentemente envolvia um exercício sobre uma enzima hipotética com dois sítios de ligação para o substrato e cooperatividade positiva. O enunciado apresentava dados de velocidade versus concentração de substrato e pedia para identificar se a enzima seguia cinética michaeliana ou sigmoidal. A pegadinha era que os dados, vistos superficialmente, pareciam michaelianos. Mas ao calcular os valores de S0.5 e construir o gráfico de Hill, o nH era claramente maior que 1, indicando cooperatividade. A armadilha era que o exercício não mencionava cooperatividade de forma alguma, obrigando o aluno a descobrir o padrão nos dados. A solução foi construir a tabela com log(v/(Vmax-v)) versus log[S] e verificar se a inclinação dava um coeficiente de Hill diferente de 1. Isso leva cerca de 8 minutos com planilha, mas exige saber o que procurar antes de começar a calcular.
Outro tópico que cai frequentemente e gera confusão é a diferença entre Ki e Ki aparente. Em muitos exercícios, o valor fornecido é o Ki aparente de um inibidor competitivo, e a questão pede para calcular a concentração de inibidor necessária para dobrar o Km. A relação direta é que KI app = Ki(1 + [I]/Ki), e se o inibidor é puramente competitivo, o Km aparente é Km(1 + [I]/Ki). Dobrar o Km significa [I] = Ki. Parece simples, mas exercícios costumam dar dados em que você precisa primeiro calcular o Ki a partir de um gráfico de Dixon ou de um conjunto de curvas com diferentes concentrações de inibidor. Pular essa etapa e já assumir que o valor dado é o Ki direto leva ao erro na maioria das vezes. ParaENZIMAS REGULADORIAS, como as alostéricas, os exercícios mudam completamente de figura. A equação de Michaelis-Menten não se aplica. Você precisa usar a equação de Hill ou o modelo de Monod-Wyman-Changeux. Um detalhe prático: muitos alunos tentam encaixar dados alostéricos no gráfico de Lineweaver-Burk e ficam confusos quando as retas não são lineares. A linearização desse tipo de dado exige o gráfico de Hill adequado, e o coeficiente de Hill informa o grau de cooperatividade. Se nH = 1, a enzima não apresenta cooperatividade. Se nH > 1, há cooperatividade positiva. Se nH
1, há cooperatividade negativa. Isso costuma cair em questões de interpretação direta. Quanto à parte prática de resolver exercícios de verdade, organize seu material antes de começar. Tenha uma folha com as equações fundamentais: Michaelis-Menten, Lineweaver-Burk, Dixon para determinação de Ki, Hill para cooperatividade, e as relações de inibição competitiva, não competitiva e acompetitiva. Sem isso, você perde tempo revisando a fórmula toda vez que surge um problema novo. Além disso, anote os valores de referência mais comuns: pH ótimo de pepsina é 2, de tripsina é 8, de fosfatase alcalina varia mas costuma estar em torno de 10. Temperatura ótima de enzimas humanas é 37°C, de enzimas termofílicas pode ultrapassar 70°C. Conhecer esses valores facilita identificar rapidamente se uma resposta é plausível ou claramente errada.

O principal limitação dos exercícios convencionais sobre enzimas é que eles raramente cobram situações reais onde múltiplos fatores atuam simultaneamente. Na prática, pH, temperatura e inibidores podem variar ao mesmo tempo, e a enzima responde de maneira integrada. Exercícios que tentam simular isso geralmente se tornam excessivamente complicados e pouco didáticos. Se você quer algo mais próximo da realidade, procure por bancos de dados públicos de cinética enzimática, como o BRENDA, e tente construir problemas a partir de dados reais. Isso é mais trabalhoso, mas ensina mais do que qualquer lista de exercícios padronizados. Para quem está estudando para provas, however, a estratégia mais eficiente é dominar a interpretação de gráficos primeiro, porque é onde a maioria dos erros acontece.
Galeria
-
Exercícios sobre Enzimas e Cinética | PDF | Enzima | Reações químicas -
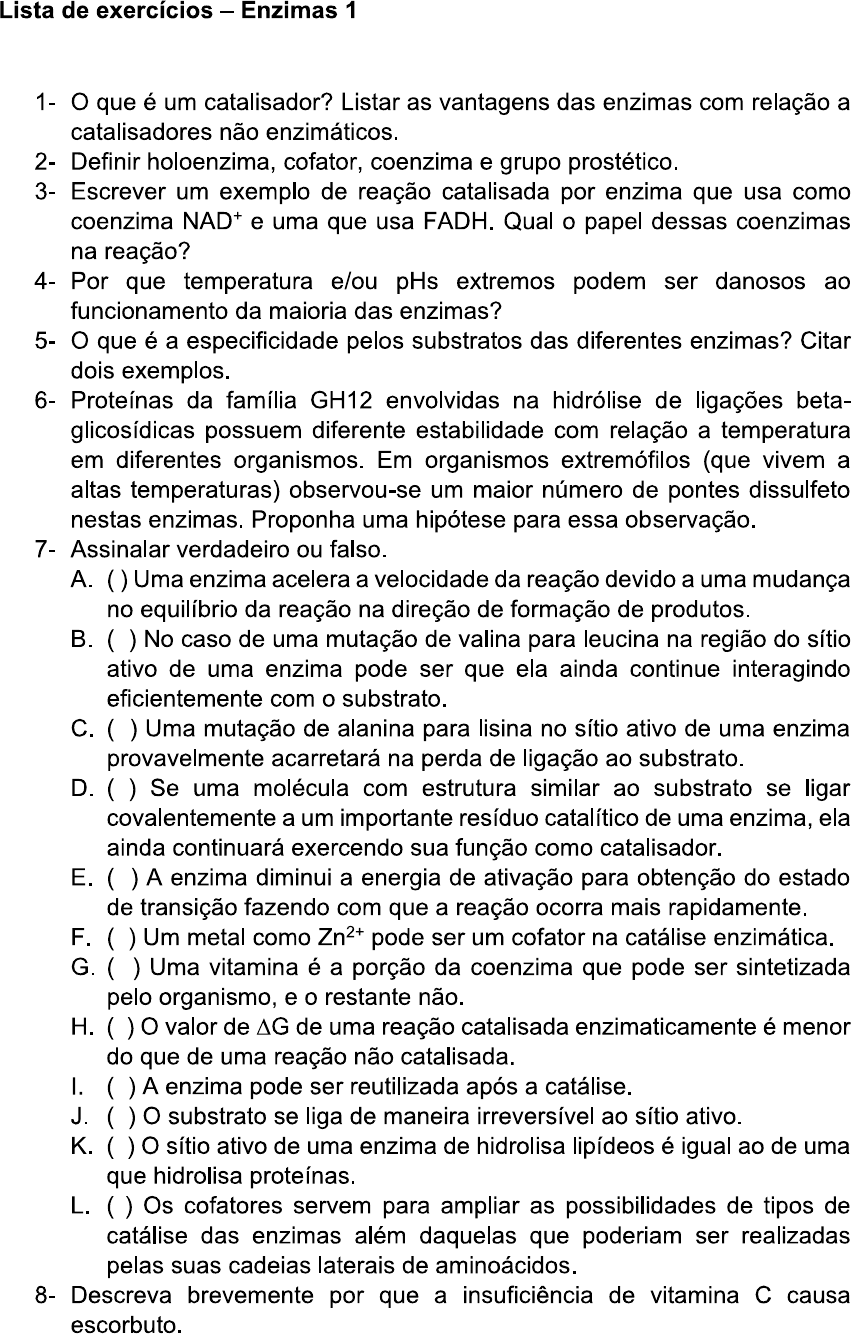
Exercícios Sobre Enzimas. Lista De Exercícios Sobre Enzimas – CXDHVT -
Exercícios sobre Enzimas e Cinética Enzimática | PDF | Enzima ... -
Exercícios sobre Enzimas e Cofatores | PDF | Enzima | Catálise


