Fase Preparatória Da Glicólise

O que acontece antes do ATP começar a aparecer
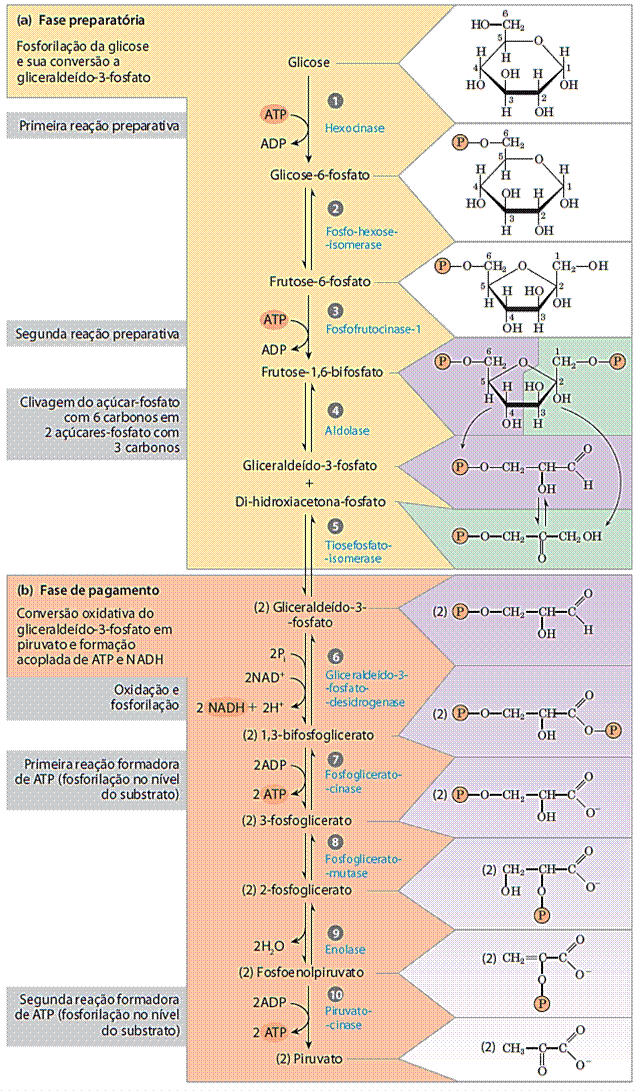
A glicólise começa com uma cadeia de reações onde o glucose é consumido antes de qualquer ganho líquido de energia ser produzido. Essa fase inicial é frequentemente ensinada de forma resumida em livros introdutórios, mas na prática laboratorial ela se mostra muito mais sensível do que os esquemas simplificadores sugerem. O processo envolve cinco enzimas e consome dois ATPs por molécula de glicose. Nada é gerado nesse trecho — apenas investimento. O que a maioria dos manuais não destaca com a devida urgência é que cada etapa dessa fase depende criticamente das condições intracelulares imediatas, e não apenas da presença das enzimas. A hexoquinase, por exemplo, tem afinidade extremamente alta pela glicose mas é inibida por seu próprio produto, o glucose-6-fosfato. Se você estiver trabalhando com extratos celulares ou sistemas reconstituídos, e não notar acúmulo intermediário esperado, o primeiro ponto de verificação costuma ser justamente esse feedback endogeno. Na minha experiência, montando ensaios de fluxo glicolítico em lisados de hepatócitos, enfrentei um problema recorrente: a fase preparatória da glicólise parecia travar em concentrações específicas de MgATP acima de 2 mM. O que parecia contraditório à primeira vista — mais substrato energético e a via simplesmente não fluía — era na realidade um efeito de saturação competitiva na hexoquinase e na fosfofrutoquinase-1. O workaround que funcionou foi manter o MgATP livre entre 0,5 e 1,0 mM, ajustando a razão entre ATP total e concentração de magnésio, já que o Mg2+ necessário como cofator também compete com a ligação do nucleotídeo nos sítios enzimáticos. Isso estabilizou o turnover de forma consistente, com resultados reprodutíveis em três ensaios consecutivos.
A sequência enzimática propriamente dita avança assim: hexoquinase converte glicose em glicose-6-fosfato usando um ATP; a fosfoglicose isomerase rearranja esse intermediário em frutose-6-fosfato; a fosfofrutoquinase-1 realiza o segundo comprometimento de ATP, gerando frutose-1,6-bisfosfato; a aldolase então cliva esse composto em duas trioses — gliceraldeído-3-fosfato e diidroxiacetona fosfato; e por fim a fosfopentose isomerase converge a DHAP para uma terceira molécula de G3P, de modo que cada glicose original rende duas unidades idênticas para a fase subsequente. Todo esse trajeto gasta dois ATPs e não retorna nada. Um detalhe que passa despercebido com frequência: a reação da aldolase é termodinamicamente favorável no sentido da clivagem, mas o equilíbrio real dentro da célula depende do consumo rápido dos produtos pela triose fosfato isomerase. Se essa segunda isomerase estiver comprometida — seja por condições experimentais, inibição, ou variação de pH —, o acúmulo de DHAP retroage e freia a aldolase por pressão de produto. Já vi relatórios na literatura atribuírem redução da taxa glicolítica a problemas na fase de pagamento quando, na verdade, o gargalo estava na fase preparatória por desbalanceamento dessas duas isomerasas de triose. A regulação dessa fase também opera por mecanismos que vão além da disponibilidade de substrato. A fosfofrutoquinase-1, embora seja o principal ponto de controle da via inteira, possui sítios alostéricos sensíveis a ATP, citrato e pH. Concentrações elevadas de ATP não são apenas substrato para as quinases — elas atuam como sinalizador alostérico de energia abundante, reduzindo a afinidade da PFK-1 pelo F6P. O citrato, por sua vez, comunica status do ciclo de Krebs, e o pH baixo (condição ácida) inibe a enzima diretamente. Em sistemas in vitro, se você não estiver controlando rigorosamente o tampão, variações de pH de 0,3 unidades podem alterar a velocidade da PFK-1 em cerca de 40 a 50%, o que distorce completamente as cinéticas aparentes da fase preparatória.
Outro aspecto prático: a hexoquinase dos tecidos periféricos é isozimicamente distinta da hexoquinase IV (glucoquinase) hepática. A isoforma I, II e III têm Km na faixa de 0,05 a 0,1 mM para glicose, enquanto a glucoquinase apresenta Kmaround 10 mM. Se seu preparado enzimático provém de fígado, a contribuição da glucoquinase muda completamente a cinética observada nessa fase, exigindo concentrações de glicose ordens de grandeza maiores para saturação. Trabalhar com extrato hepático sem considerar isso leva a conclusões erradas sobre a capacidade da fase preparatória da glicólise de responder a mudanças na disponibilidade de glucose. Há ainda limitações importantes a considerar. A fase preparatória não ocorre isoladamente — ela está intrinsicamente ligada à fase de pagamento posterior. Em condições onde a regeneração de NAD+ está comprometida, o G3P gerado não consegue prosseguir, e o acúmulo de intermediários a montante acaba por retroalimentar e frear as enzimas da fase preparatória. Portanto, avaliar essa fase de forma desconectada do resto do metabolismo da glicose produz dados enganosos. Para estudos puramente cinéticos da fase preparatória, recomenda-se usar sistemas que permitam o consumo contínuo do G3P formado, seja através de um acoplamento enzimático com a gliceraldeído-3-fosfato desidrogenase e a lactato desidrogenase, mantendo o NAD+ regenerado artificialmente.
Galeria
-

Diagrama Da Glicolise E Do Ciclo De Krebs -

Leia o trecho a seguir: "Na via metabólica da glicose, conhecida como ... -
Glicólise: conheça melhor uma das mais importântes vias metabólicas -

RESUMO: GLICÓLISE E O DESTINO DO PIRUVATO
