Função Da Célula Vegetal

Entendendo o que as células vegetais fazem na prática
A célula vegetal é a unidade estrutural e funcional dos organismos do reino Plantae. Todo o metabolismo, crescimento e reprodução desses organismos depende dela. Mas "função da célula vegetal" é um conceito que vai muito além do desenho colorido dos livros didáticos. Quem trabalha com cultura de tecidos vegetais, microscopia ou fisiologia vegetal rapidamente percebe que a célula vegetal não é uma versão mais resistente de uma célula animal. Ela opera sob princípios completamente diferentes. A parede celular rígida, por exemplo, não é apenas uma capa protetora passiva. Ela é uma estrutura ativa que define a forma celular, controla a expansão durante o crescimento e gera pressão de turgescência essencial para manter a arquitetura do tecido. Sem essa pressão interna, a planta murcha em poucas horas.
qual é a função da célula vegetal
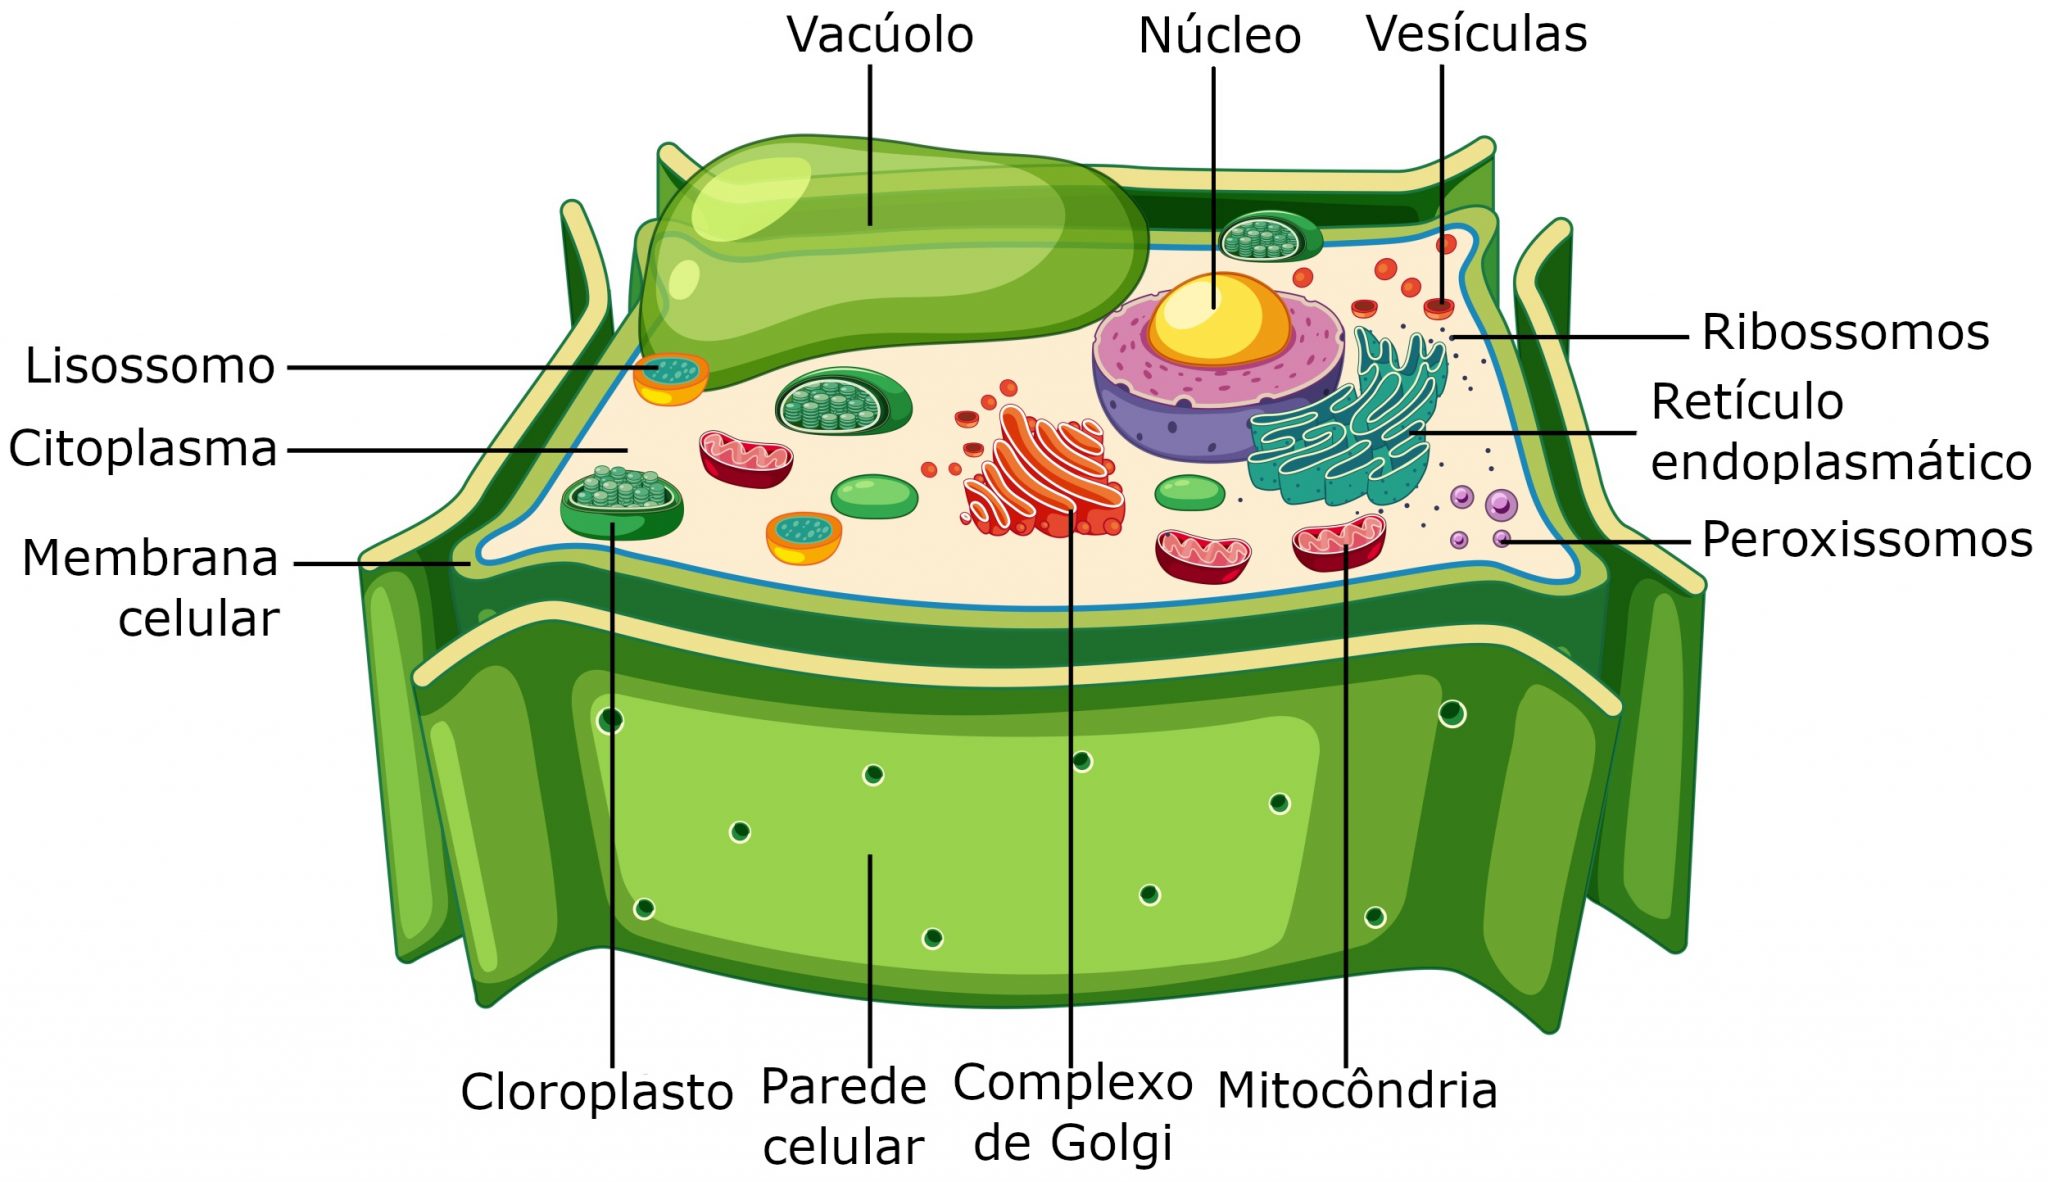
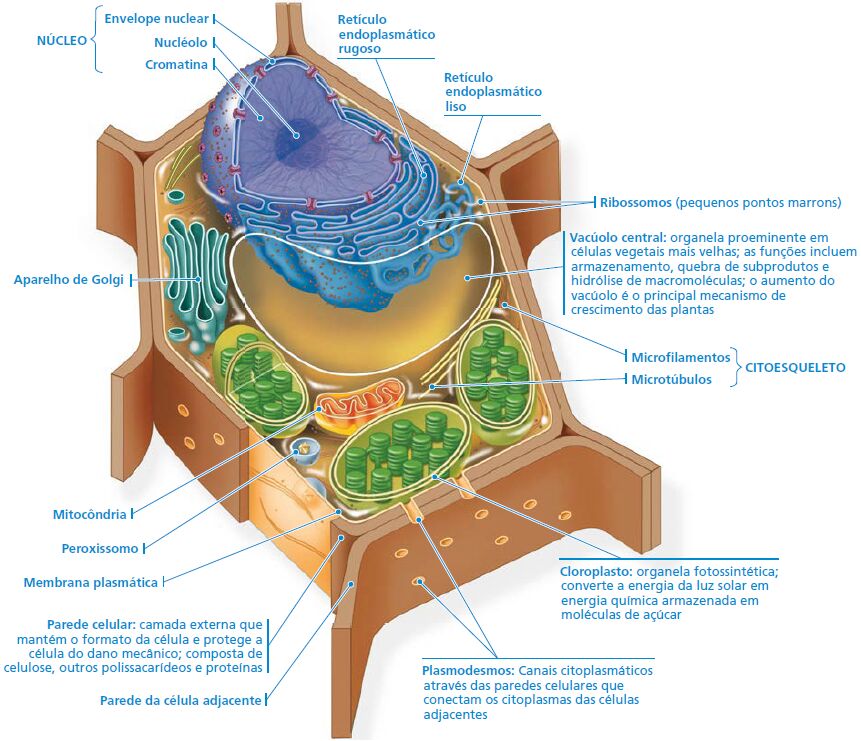
A função da célula vegetal envolve coordenação entre múltiplos compartimentos especializados. A parede celular, composta principalmente de celulose, hemicelulose e pectinas, fornece resistência mecânica e delimita o volume celular. O citoplasma abriga organelas com funções distintas: os cloroplastos realizam fotossíntese e fixam carbono, as mitocôndrias produzem ATP via respiração celular, o retículo endoplasmático rugoso sintetiza proteínas, e o complexo de Golgi modifica e empacota essas proteínas para secreção ou uso interno. O vacúolo central ocupa até 90% do volume celular em células maduras. Ele regula o potencial osmótico, armazena íons, metabólitos secundários e pigmentos, e contém enzimas hidrolíticas com função semelhante aos lisossomos animais. O plasmalema, ou membrana plasmática, controla seletivamente a entrada e saída de substâncias, enquanto os plasmodesmas conectam o citoplasma de células adjacentes, permitindo comunicação intercelular direta. A membrana do vacúolo, chamada tonoplasto, é um componente crítico e frequentemente subestimado. Ele possui transportadores de prótons (H+-ATPases e H+-PPases) que criam gradientes eletroquímicos usados para importar cátions, aniões e metabólitos. Quando se faz extração de proteínas ou metabólitos de tecidos vegetais, negligenciar o tonoplasto leva à liberação de enzimas vacuolares que degradam compostos de interesse. Isso acontece com frequência em extratos mal manipulados.
organelas e suas funções específicas
Os plastos formam um grupo interessante. Eles derivam de proplastidas e podem se diferenciar em cloroplastos, cromoplastos, leucoplastos e outras formas conforme o tecido e as condições ambientais. Cloroplastos contêm tilacoides empilhados em grana, onde ocorrem as reações fotoquímicas. A síntese de amido acontece no estroma durante o dia e sua degradação à noite, num ciclo que muitos não levam em conta ao planejar experimentos de metabolismo vegetal. Cromoplastos acumulam carotenoides e são responsáveis pela coloração de frutos e flores. Leucoplastos armazenam amido (amiloplastos), lipídios (lipoplastos) ou proteínas (proteinoplastos). A interconversão entre esses tipos é possível — cloroplastos podem se transformar em cromoplastos durante a maturação de frutos, por exemplo, e esse processo envolve remodelação completa da rede de tilacoides. As peroxissomas vegetais executam a fotorrespiração junto com os cloroplastos e glioxissomas. Em sementes oleaginosas em germinação, os glioxissomas convertem ácidos graxos em succinato via ciclo do glioxilato, permitindo o uso de lipídios como fonte de carbono antes do estabelecimento fotossintético. Ignorar essa via em estudos de germinação leva a interpretações equivocadas do metabolismo energético inicial.
como a parede celular molda a função celular
A parede celular primária é flexível e se expande durante o crescimento celular. Sua estrutura depende da deposição orientada de microfibrilas de celulose, cuja disposição determina a direção de expansão. Quando as microfibrilas são depositadas perpendicularmente ao eixo de alongamento, a célula cresce mais nesse eixo. Células com paredes secundárias, como os elementos do xilema, perdem a capacidade de divisão e, em muitos casos, de sobreviver como células ativas — tornam-se principalmente condutoras e estruturais. A composição da parede varia enormemente entre espécies e entre tipos celulares dentro do mesmo órgão. Celulose representa de 30% a 50% da parede seca em muitas células parenquimáticas. Hemiceluloses, principalmente xilanas e mananas, ligam as microfibrilas. Pectinas preenchem o espaço entre elas, formando um gel hidratado que influencia a porosidade e a rigidez. Lignina, presente em paredes secundárias, confere impermeabilização e resistência adicional, mas torna a parede praticamente inacessível a enzimas digestivas — um fator relevante para biocombustíveis e alimentação animal.
comunicação intercelular via plasmodesmos
Os plasmodesmos são canais que atravessam a parede celular e conectam o citoplasma de células adjacentes. Eles permitem a passagem de íons, moléculas pequenas e até macromoléculas como proteínas e RNA. O calibre funcional do plasmodesmo é regulado dinamicamente, e há evidências de que a transmissão de sinais de defesa e desenvolvimento depende diretamente dessa conectividade. Plantas mutantes com defeitos na formação de plasmodesmos apresentam phenótipos severos de desenvolvimento, o que mostra que a comunicação célula-a-célula não é um luxo evolutivo, mas uma necessidade. O movimento de moléculas sinalizadoras pelos plasmodesmos é seletivo. Proteínas de tamanho moderado podem atravessar passivamente, mas macromoléculas maiores exigem mecanismos ativos mediados por proteínas virais ou sinais endógenos específicos. Esse sistema de comunicação é uma diferença fundamental em relação às células animais, que usam junções comunicantes (gap junctions) com estrutura e regulação distintas.
aspectos práticos e problemas comuns
Na prática laboratorial, trabalhar com células vegetais apresenta desafios que raramente aparecem na literatura introdutória. Um problema recorrente é a interferência de compostos fenólicos durante a extração de DNA e RNA. As polifenoloxidases liberadas pela ruptura celular oxidam fenóis a quinonas, que polimerizam e precipitam ácidos nucleicos. A solução mais eficaz que encontrei envolve adicionar PVP (polivinilpirrolidona) em concentração de 2% ao buffer de extração, combinada com um passo de lavagem em high-salt, o que reduz drasticamente a contaminação por polifenóis. Outro enfoque é trabalhar em temperatura reduzida (0-4°C) para diminuir a atividade enzimática. Outro ponto que causa confusão é a autofluorescência natural de cloroplastos. Se você faz imunofluorescência em tecidos vegetais e não considera isso, o sinal verde da clorofila (emissão por volta de 680 nm) pode mascarar fluoróforos convencionais. O uso de quenchers comerciais ou a escolha de fluoróforos no vermelho distante resolve parcialmente. Mas o mais eficaz é fazer seções finas de tecidos sem cloroplastos densos quando o alvo for de fácil identificação. A preparação de protoplastos vegetais também é uma técnica que exige atenção. A cellulase e a pectinase comercial variam muito em pureza entre fornecedores, e lotes diferentes podem ter eficiências distintas. Testar o cocktail enzimático em um pequeno número de tecidos antes de escalar o experimento economiza dias de trabalho. Uma concentração típica é 1-2% de cellulase e 0,5-1% de pectinase em solução osmótica de 0,4-0,6 M de sorbitol ou manitol, com incubação de 2 a 16 horas sob agitação suave e luz fraca.
limitações do modelo de célula vegetal
A rigidez da parede celular é simultaneamente uma vantagem estrutural e uma limitação funcional. Células vegetais não podem mudar de forma ativamente nem realizar fagocitose. Elas são fundamentalmente sésseis e dependem de mecanismos de crescimento direcional para responder a estímulos. Isso significa que respostas a estresses bióticos e abióticos ocorrem por alterações metabólicas e de expressão gênica, não por migração celular como em tecidos animais. A dependência de turgescência para sustentação é outra limitação. Plantas sem apoio estrutural adicional (como lignina em tecidos de sustentação) dependem da pressão de turgor em todas as células parenquimáticas. Um déficit hídrico rápido compromete múltiplas funções simultaneamente — abertura estomática,alongamento celular, transporte de seiva — porque tudo depende do gradiente hídrico mantido pelo vacúolo. Para estudos de mecanobiologia vegetal, o fato de a parede celular impor restrições físicas significa que forças geradas internamente são rapidamente distribuídas pelo tecido. Modelos computacionais que tratam a célula vegetal como um sacos de fluido ignoressem a parede tendem a prever comportamentos irreais. Incluir módulos de elasticidade e tensão da parede nos modelos melhora significativamente a previsibilidade.
considerações finais sobre o funcionamento integrado
O que torna a célula vegetal funcionalmente distinta é a integração entre compartimentos que operam sob pressão física constante. A fotossíntese nos cloroplastos produz carboidratos que são carregados pelo floema para tecidos não fotossintetizantes. O vacúolo regula o potencial hídrico que permite esse transporte. A parede celular traduz a pressão interna em tensão estrutural que mantém a arquitetura do órgão. Os plasmodesmos coordenam respostas entre células vizinhas. Nenhum desses processos funciona isoladamente — a ruptura de um compromete os outros. Quando se estuda função da célula vegetal de forma isolada, como em ensaios com organelas purificadas, perde-se a contextualização que define o sistema. Mas para aplicações como engenharia metabólica, melhoramento genético e fisiologia aplicada, entender cada componente individualmente é necessário. O desafio é manter a noção de que a célula vegetal é um sistema integrado sob restrição mecânica, não um conjunto de partes independentes.
Galeria
-

Célula vegetal – Artofit -

Célula Vegetal -
Biologia Marcada Com Celula Vegetal Organelas Das Células: O Arranjo
