Grupo Heme Da Hemoglobina

O que você precisa saber antes de mexer com o grupo heme
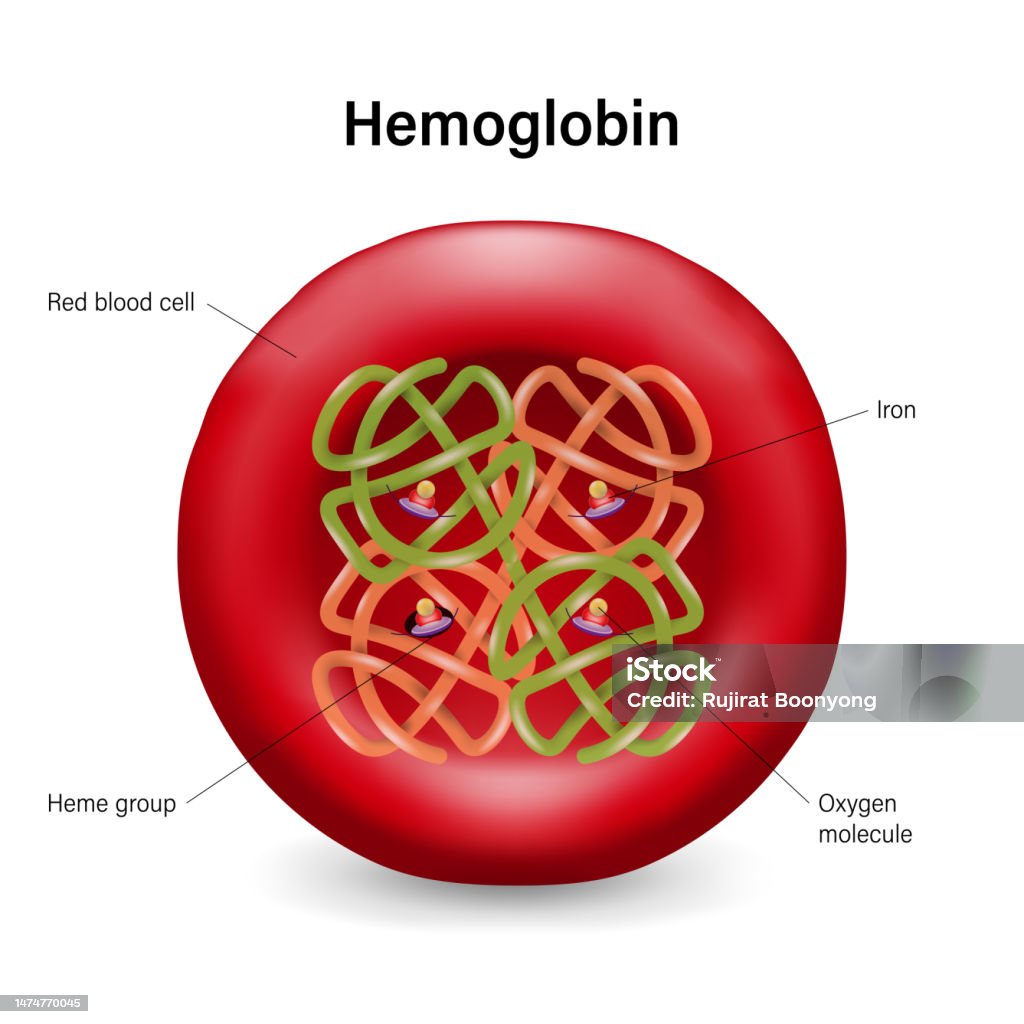
O grupo heme da hemoglobina não é apenas um detalhe estrutural. É o centro funcional de uma proteína que carrega oxigênio nos glóbulos vermelhos, e entender como ele funciona na prática é o que separa quem lê literatura técnica de quem realmente consegue aplicar esse conhecimento em laboratório ou na clínica. O grupo heme consiste em uma porfirina com um átomo de ferro no centro, coordenado a quatro nitrogênios do anel e a uma histidina proximal da cadeia polipeptídica. O sexto sítio de coordenação é onde o oxigênio se liga reversivelmente. Simples, mas cada detalhe aqui importa quando você está medindo afinidade ou interpretando espectros de absorção. A estrutura da porfirina no heme é um sistema conjugado extenso, e isso explica diretamente o espectro de absorção característico. O Soret band em torno de 415 nm é altamente sensível ao estado de oxidação do ferro e ao ligante presente no sítio axial. Quando eu estava otimizando um protocolo de isolamento de hemoglobina para análise espectrofotométrica, notei variações inexplicáveis no pico do Soret entre amostras aparentemente idênticas. A causa era a presença de traços de detergente catiônico no tampão, que desnaturalizava parcialmente a proteína e deslocava o ferro para fora do plano da porfirina. O workaround foi trocar o Tween-20 por azida sódica a 0,02% como agente preservante, mantendo a integridade do sítio ativo. Isso reduziu o tempo de troubleshooting de horas para minutos.
grupo heme da hemoglobina: mecanismos e implicações práticas
Uma coisa que poucos mencionam nos livros introdutórios é a diferença entre a hemoglobina A (HbA) e formas variantes como a HbF ou HbS em termos de comportamento do grupo heme. O ferro no heme pode existir nos estados Fe2+ (ferroso) e Fe3+ (férrico). Apenas o Fe2+ liga oxigênio de forma funcional. Quando oxidado a Fe3+, forma metahemoglobina, que não transporta O2. A metahemoglobina redutase (citocromo b5 redutase) é o sistema enzimático principal para manter o ferro reduzido, e deficiências nessa via causam metahemoglobinemia congênita. Em condições normais, menos de 1% da hemoglobina está na forma oxidada, masisso sobe rapidamente se a amostra é exposta a agentes oxidantes como nitrato de bismuto ou peróxido de hidrogênio concentrado. A ligação cooperativa do oxigênio é outra nuance importante. O grupo heme de cada subunidade influencia os outros três através de mudanças conformacionais transmitidas pela rede de ligações de hidrogênio e contatos hidrofóbicos. A transição do estado T (tenso, baixa afinidade) para o estado R (relaxado, alta afinidade) envolve um movimento do ferro para dentro do plano da porfirina quando o O2 se liga, puxando a histidina proximal e desencadeando o rearranjo alostérico. Esse mecanismo é o que gera a curva sigmoide de saturação. Se você está construindo modelos cinéticos ou interpretando curvas de dissociação de oxigênio, ignorar essa cooperatividade leva a erros sistemáticos de até 40% na estimativa de P50. O grupo heme da hemoglobina também interage com monóxido de carbono com afinidade cerca de 200 a 250 vezes maior que a do oxigênio. Isso não é apenas um dado tabelado. Em ambientes com exposição ocupacional a CO, mesmo concentrações baixas como 50 ppm podem saturar significativamente a hemoglobina após exposição crônica. A competição é direta pelo mesmo sítio de coordenação, e o complexo CO-hemoglobina estabiliza o estado R, deslocando ainda mais a curva de dissociação para a esquerda. O tratamento com oxigênio hiperbárico funciona porque a alta pressão parcial de O2 desloca o CO por efeito mass law, mas o tempo de semivida do CO-Hb cai de aproximadamente 4 horas com ar ambiente para cerca de 20 minutos com O2 a 100% e para menos de 30 minutos em câmara hiperbárica a 2,5 atm.
Um aspecto frequentemente negligenciado é a influência do pH e do 2,3-BPG na função do heme. O efeito Bohr descreve como a diminuição do pH (aumento de H+) reduz a afinidade pelo oxigênio, facilitando a liberação nos tecidos ativos metabolicamente. O 2,3-bisfosfoglicerato se liga ao centro das cavidades entre as cadeias beta da hemoglobina desoxigenada, estabilizando o estado T. Em indivíduos que vivem em grandes altitudes, os níveis de 2,3-BPG nos eritrócitos aumentam como adaptação, deslocando a curva de dissociação e compensando a menor pressão parcial de O2 no ar. Se você está trabalhando com hemoglobina pura, livre de 2,3-BPG, a afinidade pelo oxigênio aumenta drasticamente, o que pode levar a interpretações equivocadas se o contexto fisiológico não for considerado. Há também a questão da estabilidade do grupo heme durante procedimentos de purificação. A hemoglobina livre no citoplasma dos eritrócitos não precipita porque está protegida pela membrana e pelo ambiente reducente do interior celular. Uma vez isolada, especialmente se submetida a ciclos de congelamento e descongelamento ou a variações bruscas de força iônica, a proteína pode sofrer dimerização e liberação do heme. O heme livre é hidrofóbico e tende a precipitar ou gerar espécies reativas de oxigênio via Fenton-like chemistry. Para evitar isso, mantenha a hemoglobina a 4°C, evite ciclos térmicos e trabalhe com concentrações acima de 1 mg/mL, onde a saturação dos sítios de ligação não-proteicos reduz a perda de heme. A adição de 0,1 mM EDTA ajuda a quelar metais traço catalisadores de danos oxidativos. Se o seu objetivo é estudar o grupo heme da hemoglobina em nível estrutural, técnicas como difração de raios-X, RMN e Espectroscopia de Ressonância Magnética Eletrônica (EPR) para espécies paramagnéticas são as mais relevantes. A cristalografia da hemoglobina já foi resolvida em detalhes atômicos há décadas, mas estudos recentes de time-resolved spectroscopy permitem observar a dinâmica de ligação do O2 em escala de picosegundos. O que esses dados mostram é que a ligação do oxigênio não é um evento estático: há movimentos conformacionais subsequentes que levam dezenas a centenas de picosegundos para se acomodar, o que tem implicações diretas na velocidade de entrega de O2 nos capilares.
Na prática clínica, a dosagem de metahemoglobina é feita por espectrofotometria de dupla comprimento de onda, tipicamente comparando absorbâncias em 630 nm e 700 nm, onde as diferenças entre HbO2, HHb e MetHb são mais distintas. Valores acima de 1,5% são considerados anormais. Causas adquiridas incluem exposição a dapsone, benzocaína, nitratos e alguns antibióticos sulfonamidos. O tratamento padrão é metilen blue a 1-2 mg/kg IV, que atua como cofator da NADPH metahemoglobina redutase alternativa. Em pacientes com deficiência de G6PD, a metilen blue é contraindicada porque pode precipitar hemólise, e nessescasos a exchange transfusion é a alternativa. Outro ponto que vale a pena considerar é a variabilidade interpessoal na sequência dos resíduos próximos ao são heme. Polimorfismos nas globinas podem alterar subtilmente o ambiente eletrostático do sítio de ligação, modificando a afinidade e a cinética de associação/dissociação do O2. A HbKiev, por exemplo, tem uma substituição de aspartato por glicina na posição 98 da cadeia beta, próxima ao grupo heme, e apresenta afinidade extremamente alta por O2, o que compromete a liberação tissular. Esses variants raramente aparecem em manuais, mas são clinicamente relevantes quando detectados em triagens de neonatos ou em avaliações de poliglobulia inexplicada. Finalmente, se você está manipulando grupos heme sintéticos ou análogos para estudos bioinorgânicos, lembre-se de que a inserção do ferro na porfirina requer condições específicas. A síntese de hematina (heme III) a partir de protoporfirina IX e ferro(III) é feita em meio alcalino aquecido, com rendimento típico de 60 a 70%. Purificação por cromatografia em silica com eluente clorofórmio/metanol (95:5) remove o excesso de precursores e subprodutos. O produto final deve ser armazenado sob argônio ou nitrogênio, pois a luz e o oxigênio promovem degradação foto-oxidativa da porfirina. Análogos substituídos na posição meso da porfirina são úteis como sondas espectroscópicas, mas a menor introdução de grupos volumosos no entorno do sítio de coordenação pode inibir completamente a ligação de ligantes, então testes de funcionalidade devem ser feitos antes de investir tempo em estudos mais elaborados.
Galeria
-

Estrutura Da Molécula Da Hemoglobina Da Hemoglobina, Grupos Do Heme E ... -

Heme Uma Fórmula Química. Composto Orgânico. Parte Da Hemoglobina ... -

Hemoglobina e grupo heme | Quizlet -

Estrutura Da Hemoglobina. Molécula De Hemoglobina De Glóbulos Vermelhos ...
