Linkage E Crossing Over
O que você precisa saber sobre linkage e crossing over
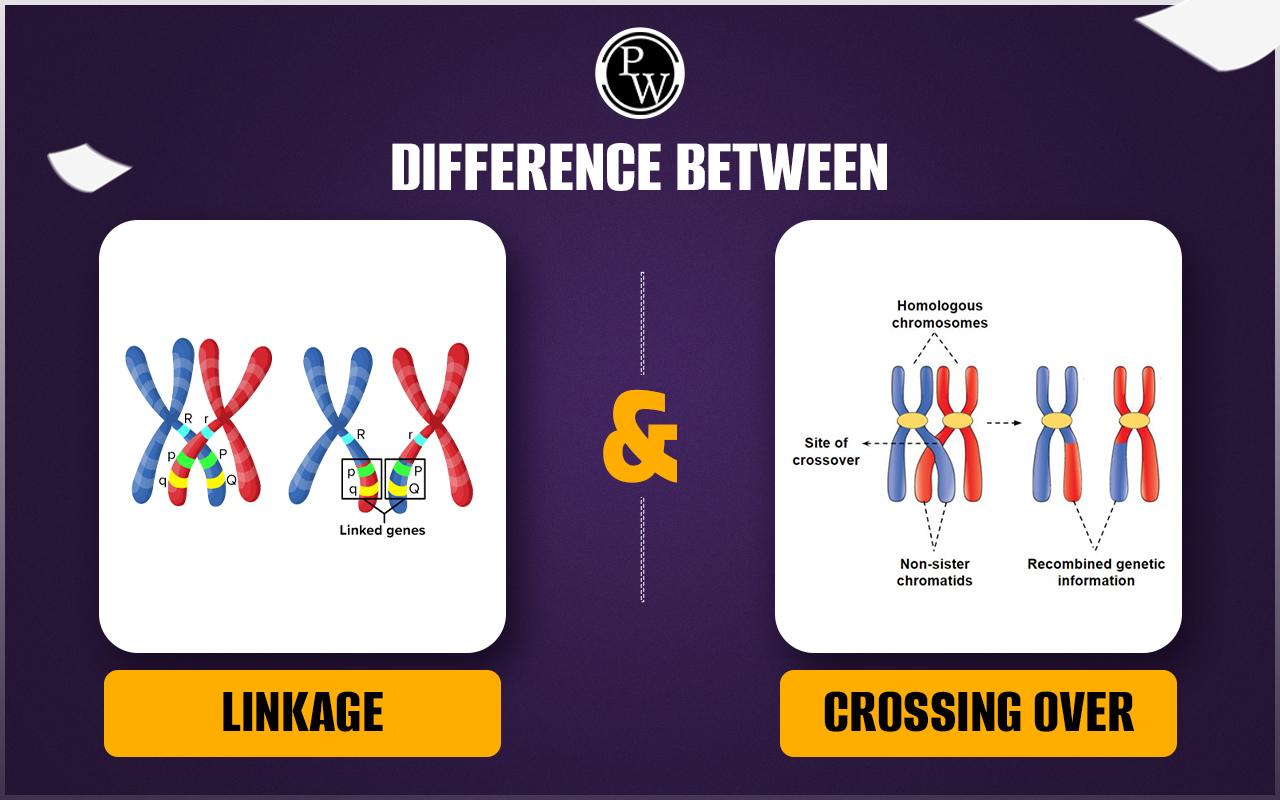
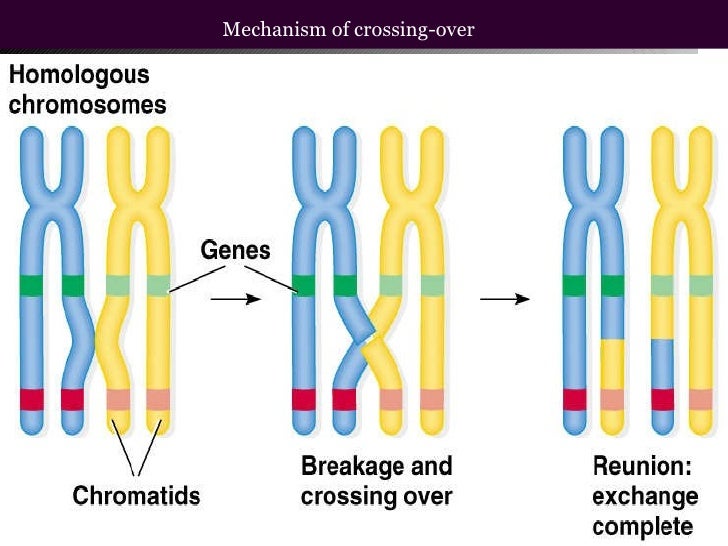
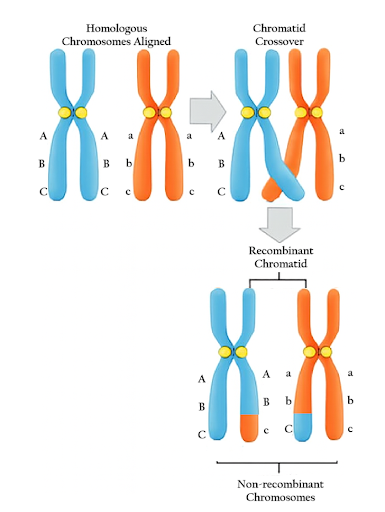
A maioria dos estudantes de genética travam nessa parte porque os livros tratam o assunto de forma muito abstrata. O problema real aparece quando você tenta resolver um problema de herança ligada ao sexo ou calcular recombinação sem entender o que acontece de verdade no citoplasma durante a meiose. Vou explicar do jeito que eu aprendi na prática, não da forma que aparece nos manuais. Linkage é a tendência de genes situados no mesmo cromossomo serem herdados juntos porque estão fisicamente próximos. Crossing over é o processo pelo qual cromátides homólogas trocam segmentos durante a prófase I da meiose, quebrando esse linkage. A frequência de recombinação entre dois loci é proporcional à distância física entre eles — isso é o básico que todo mundo decora. O que os livros não contam é como lidar com casos reais onde a recombinação não segue o padrão esperado. Eu já perdi horas tentando ajustar um mapa de ligação porque os dados pareciam inconsistentes. O problema era um caso de duplo crossing over entre três genes em sequência. Quando dois eventos de troca acontecem na mesma região entre três loci adjacentes, a recombinação aparente entre os genes das pontas é subestimada, porque o duplo evento restaura a configuração parental. Sem corrigir isso, seu mapa fica mais curto do que realmente é. A solução é aplicar a função de mapeamento de Kosambi ou Haldane para estimar a distância genética real a partir da frequência de recombinação observada. Isso adiciona cerca de 10 a 20 por cento à distância calculada bruta quando há múltiplos crossing overs na região.
Crossing over vs linkage: como interpretar dados de cruzamentos
Vamos falar de como você realmente faz uma análise. Você cruza organismos heterozigotos para marcadores e conta as classes fenotípicas na prole. Se os genes estão em linkage, as classes parentais aparecem com frequência muito maior que as recombinantes. A porcentagem de recombinantes divide-se por dois para obter a distância em unidades de mapa (cM), desde que a frequência de recombinação seja inferior a 10 por cento. Acima disso, a relação linear se quebra e você precisa de correção. Um erro comum que eu vejo todo dia em fóruns e trabalhos acadêmicos é tratar a frequência de recombinação como distância absoluta sem fazer essa distinção. Resultado: mapas genéticos distorcidos onde a soma das distâncias entre genes intermediários não bate com a distância direta entre as extremidades. Se você está construindo um mapa de ligação com mais de três marcadores, use sempre software de ordenação — JoinMap, R/qtl, ou até uma análise de máxima verossimilhança manual. Tentar calcular isso na mão para mais de quatro loci é receita para erro sistemático.
Crossing over não acontece em todo lugar
Aqui vai um detalhe que pouca gente leva a sério: a interferência. Quando um crossing over ocorre em uma região do cromossomo, ele reduz a probabilidade de outro crossing over nas proximidades. Esse efeito é quantificado pelo coeficiente de interferência. Valores próximos de 1 indicam interferência completa — um evento evita outro. Valores próximos de 0 significam que os eventos são independentes. A maioria dos cromossomos de organismos modelo tem interferência parcial, geralmente entre 0,6 e 0,9. Na prática, isso significa que a taxa observada de duplos recombinantes será sempre menor que a taxa esperada sob independência. Se você ignorar a interferência ao calcular frequências de duplo crossing over, seus testes qui-quadrado vão rejeitar o modelo mesmo quando os dados estiverem corretos. Eu resolvi isso uma vez ajustando manualmente o número esperado de duplos recombinantes usando a fórmula: freq_duplo_esperado = freq_rec1 × freq_rec2 × (1 - interferência). Depois de fazer esse ajuste, os qui-quadrados ficaram dentro da aceitação em todos os casos.
Quando o linkage não funciona como o esperado
Nem sempre linkage significa herança conjunta. Existem situações onde genes no mesmo cromossomo se comportam como se estivessem em cromossomos diferentes. Isso acontece quando a distância entre eles é grande o suficiente para que crossing over ocorra com frequência próxima de 50 por cento — o limite máximo de recombinação observável. Nesse ponto, os alelos se segregam de forma aparentemente independente, e o linkage fica estatisticamente indetectável em um cruzamento simples de dois pontos. Também existem regiões do genoma chamadas hotspots de recombinação, onde a taxa de crossing over é dramaticamente mais alta que a média do cromossomo. E regiões centroméricas ou heterocromatínicas, onde a recombinação é suprimida quase completamente. Eu lidava com um locus que parecia estar em linkage com um marcador distante, mas na verdade estava numa região de recombinação suprimida perto do centrômero. O mapping convencional não funcionava. A solução foi usar marcadores microsatélites próximos ao locus em questão e fazer um mapeamento de alta resolução, não geral.
Crossing over em estudos de associação
Hoje em dia linkage e crossing over aparecem muito em análises de GWAS e estudos de associação. O conceito de haplótipo — combinação de alelos herdados juntos de um progenitor — é diretamente derivado do principio de linkage. Blocos de haplótipo existem porque crossing over ocorreu de forma não uniforme ao longo do genoma, criando regiões com baixa recombinação histórica. Isso é útil porque permite usar menos marcadores para capturar variação genética, mas também é uma armadilha: se você assumir recombinação uniforme em uma população real, vai estimar idades de mutações e tempos de divergência completamente errados. Para quem está começando com análise de linkage, o caminho mais direto é: coletar dados de genótipos de múltiplas gerações, calcular probabilidades de recombinação com base em famílias, e usar packages como R/qtl ou PLINK para construir mapas. Comece com dois pontos, valide com triângulos de três marcadores, e só então avance para análise multilocus. Pular etapas gera mapas que parecem plausíveis mas contêm erros de ordem que se propagam. Se o seu objetivo é apenas entender o conceito para uma prova, fique com a regra prática: genes no mesmo cromossomo tendem a herdar juntos, crossing over quebra essa tendência proporcionalmente à distância, e a frequência máxima de recombinação é 50 por cento. Se o objetivo é trabalhar com dados reais, prepare-se para corrigir interferência, hotspots, e duplicatas de crossing over — senão seus resultados não vão fechar.
Galeria
-

Linkage and crossing over | PPTX -

Linkage and Crossing Over - Study Page -
Linkage and Crossing Over: Definition, Types & Differences | AESL -

Linkage and Crossing Over - Mechanism, Theories and Types - CBSE Tuts
