Membrana Plasmatica Transporte

O que acontece quando você tenta entender membrana plasmatica transporte na prática
A maioria dos estudantes começa confundindo os tipos de transporte. Você vê proteínas integrais, canais iônicos, bombas e começa a achar que é pura memorização. Não é. É lógica aplicada a estruturas muito pequenas. O problema real começa quando você precisa prever o comportamento de uma célula em condições não ideais. Isso acontece em laboratório quando a temperatura sobe 4 graus acima do normal ou quando a concentração de glicose no meio de cultura muda rapidamente. O transporte para o qual você estudou na teoria funciona, mas a célula reage de um jeito que o livro não prevê.
O que determina o direcionamento do membrana plasmatica transporte
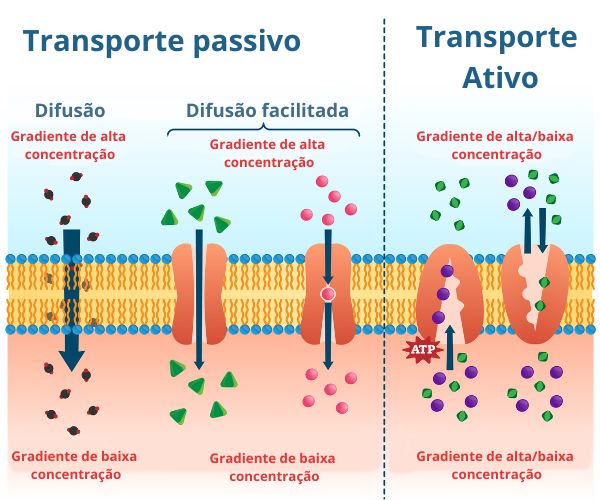
A resposta curta é gradiente eletroquímico. Não é só concentração, é carga também. Um íon como o sódio (Na+) tem dois fatores empurrando ele: a diferença de concentração e a diferença de potencial elétrico através da membrana. Quando ambos apontam para o mesmo lado, você tem um gradiente eletroquímico forte. Quando apontam para lados opostos, você precisa calcular qual vence. Isso é particularmente confuso quando se trata de co-transportadores. O simporte de Na+/glicose (SGLT1) não funciona apenas pela presença de glicose do lado de fora. Ele depende diretamente do gradiente de Na+ mantido pela bomba Na+/K+ ATPase. Se essa bomba para por falta de ATP, o simporte para junto. A célula fica sem absorver glicose mesmo que haja glicose abundante no exterior. Eu tenho um caso que encontrei recentemente em uma preparação de epit élio intestinal isolado. Estávamos medindo a captação de glicose em tecido vivo e os dados simplesmente não faziam sentido. A concentração externa estava correta, o pH estava estável, mas a taxa de transporte caía pela metade a cada 30 minutos. Gastei duas semanas inteira rastreando o problema. No final, descobri que o meio de perfusão tinha concentração de potássio (K+) abaixo do necessário para manter o potencial de membrana adequado. A bomba Na+/K+ precisava de K+ externo para funcionar corretamente. Quando o K+ caía, a bomba desacelerava, o gradiente de Na+ entrava em colapso, e o simporte de glicose acompanjava a queda. A solução foi ajustar a concentração de K+ no meio para 5,4 mM e estabilizar a perfusão com renovação contínua a cada 15 minutos.
Dificuldades que aparecem quando você vai além da teoria básica
Um erro comum é achar que transporte passivo é sempre rápido. Canais iônicos abertos realmente permitem fluxo rápido, mas a permeabilidade da bicamada lipídica a moléculas polares é extremamente baixa. Água atravessa por difusão simples através da membrana, mas a velocidade é insignificante comparada ao fluxo através das aquaporinas. Em rins, onde a reabsorção de água precisa ser rápida e regulada, a presença de aquaporina-2 na membrana apical dos ductos coletores é o que faz a diferença entre produzir 1 litro de urina concentrada ou 15 litros de urina diluída por dia. Ao mesmo tempo, muitos acham que transporte ativo resolve todos os problemas de concentração. A bomba de prótons (H+/K+ ATPase) no estômago funciona de forma impressionante, criando um gradiente de 3 milhões de vezes a favor da concentração de H+ no lúmen gástrico. Mas ela gasta ATP proporcionalmente. Se você inibir essa bomba com um inibidor de bomba de prótons, a produção de ácido cai drasticamente, mas o gasto energético da célula étal também diminui. Isso pode mascarar efeitos secundários quando se estuda o metabolismo celular. O que poucas pessoas consideram é a assimetria da membrana. O lado citoplasmático e o lado extracelular têm composições lipídicas diferentes. Fosfatidilserina concentra-se no folheto interno, enquanto glicolipídios ficam no folheto externo. Isso não é acidente. Afeta diretamente como proteínas de transporte se inserem e se comportam. Uma proteína transportadora que funciona bem em vesículas sintéticas com lipídios homogêneos pode ter atividade reduzida quando transfectada em células reais porque o ambiente lipídico ao redor dela é diferente.

Membrana plasmatica transporte e a questão da especificidade
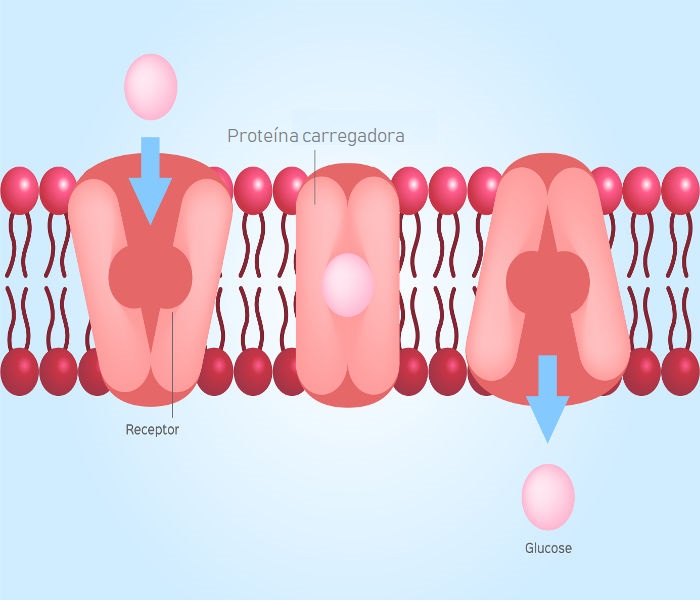
Canais são mais específicos do que muitos pensam. O canal de potássio voltagem-dependente seleciona K+ sobre Na+ com uma razão de 10.000 para 1. Isso acontece porque o raio hidratado do Na+ é menor, mas o canal foi projetado para remover a camada de hidratação do K+ de forma energeticamente favorável. O Na+ não consegue interagir adequadamente com os resíduos de carbonila da região de seleção, então ele simplesmente não passa. A especificidade não vem do tamanho do poro, vem da química de coordenação. Já os transportadores usam um mecanismo de alternância conformacional. Eles se abrem para um lado, ligam o substrato, mudam de forma e se abrem para o outro lado. Isso é mais lento que passagem por canal, mas permite controle preciso. A glucosa entra nas células por GLUT4 através de facilitado, sem gasto direto de energia, mas a quantidade que entra depende de quantos transportadores GLUT4 estão na membrana. Em músculo esquelético, a insulina promove o deslocamento de vesículas contendo GLUT4 para a membrana plasmática, aumentando a capacidade de captação em até 20 vezes em cerca de 10 minutos. Sem insulina, a mesma célula capta glicose numa taxa muito mais baixa. O problema com esse sistema é que ele depende de sinais hormonais externos. Se a sinalização por insulina falha, como na resistência à insulina, o transporte de glicose fica comprometido mesmo com GLUT4 presente em quantidades normais. A proteína está aí, o mecanismo funciona, mas o gatilho que ativa o transporte não dispara corretamente.
Onde o transporte de membrana falha e você precisa saber disso
Nenhuma classe de transporte funciona perfeitamente em todas as condições. O transporte ativo primário depende de ATP disponível. Em hipóxia, quando a produção de ATP cai pela via oxidativa, a bomba Na+/K+ ATPase perde força. A célula incha porque o gradiente de Na+ não é mais mantido, a água entra por osmose e o potencial de membrana despolariza. Isso não é teórico. Em tecidos ischemicos, esse é exatamente o mecanismo de lesão celular. O transporte secundário depende do gradiente criado pelo transporte primário. Se o primário falha, o secundário também para. Não há contorno. Você não vai compensar a perda de gradiente de sódio aumentando a concentração externa de glicose. O simporte simplesmente não tem força motriz suficiente. Um problema prático que eu enfrento com frequência em experimentos com células cultivadas é a deriva da concentração de íons no meio de cultura. Meios como o DMEM contêm sais em concentrações fixas, mas as células consomem nutrientes e excretam metabólitos ao longo do tempo. Após 48 horas de cultura sem troca de meio, a concentração de glicose no meio pode cair de 25 mM para menos de 5 mM, enquanto o amônia acumulada atinge níveis tóxicos. O transporte de glicose pelas células diminui não por falha nas proteínas transportadoras, mas por disponibilidade de substrato. Ajustar a frequência de troca de meio resolve isso, mas muitos protocolos padrão não recomendam troca frequente suficiente para experimentos de longa duração.
Outro ponto que causa confusão é a diferença entre permeabilidade e capacidade de transporte. Uma membrana pode ser altamente permeável a uma substância por difusão simples, mas isso não significa que a célulae regular essa entrada. Moléculas lipossolúveis como etanol atravessam facilmente a bicamada, mas a célula não tem um mecanismo ativo para controlar quanto etanol entra. O transporte é puramente passivo e proporcional à concentração externa. Esse é um dos motivos pelos quais o etanol afeta rapidamente o sistema nervoso central. Quando você está analisando resultados de experimentos de transporte, o primeiro ponto de verificação deve ser sempre a viabilidade celular. MTT, exclusion de corantes, medição de potencial de membrana. Se as células estão mortas ou prestes a morrer, qualquer medida de transporte que você fizer vai refletir artefato, não fisiologia real. Eu já vi dados publicarem mostrando alterações no transporte de aminoácidos que na verdade eram apenas consequência de morte celular induzida pelo procedimento experimental em si.
Galeria
-

Membrana plasmática: Transporte passivo | Biologia: A ciência da vida -
Membrana plasmática: características e funções -

Membrana plasmática: composição, características, funções
