Mendel Pai Da Genetica

O trabalho de Mendel com ervilhas
A maioria dos livros didáticos resume Mendel a três leis e um diagrama de Punnett. Na prática, o que você tem pela frente é um monge austríaco que passou anos cruzando plantas de ervilha e anotando resultados em cadernos que hoje parecem simples, mas na época representaram uma das mudanças mais lentas da ciência. Ele publicou em 1866. A comunidade científica demorou quase quarenta anos para reabilitar o texto. O motivo não foi falta de qualidade; foi timing. A genética como campo só ganhou peso depois que os microscópios melhoraram e os citologistas começaram a identificar cromossomos com precisão. A expressão aparece em materiais introdutórios para designar o papel fundacional de Gregor Johann Mendel na construção da hereditariedade moderna. Chamar ele de pai não é apenas um elogio genérico. Significa que as bases conceituais que sustentam cruzamentos, herança autossômica recessiva, dominante e ligada ao sexo foram organizadas por primeiro por ele. O conceito existe antes dele, claro. Hipócrates falava em pangenese. Galeno tinha ideias sobre mistura de características. Nenhum deles chegou a um sistema verificável. O que Mendel entregou foi um método. Ele escolheu um organismo com geração curta, caracteres discretos e fácil controle de polinização. Fez crosses monohíbridos e di-híbridos, acompanhou pelo menos sete características, e analisou números, não impressões. A proporção 3:1 no F2 para um carácter monogênico e a 9:3:3:1 para dois independentes surgiram como padrão, não como exceção. Isso abriu espaço para que alguém, décadas depois, traduzisse essas unidades abstratas em genes reais.
Como aplicar os princípios de forma prática
Vamos pular a introdução filosófica. Se você precisa resolver um problema real de cruzamento ou interpretar dados genéticos, o primeiro passo é mapear os alelos. Anote genótipos parentais, acompanhe gametas possíveis, e construa quadrados de Punnett apenas quando o número de combinações permitir. Para um cruzamento BbCc X bbCc, por exemplo, você pode quebrar em dois monohíbridos separados e multiplicar probabilidades. Isso economiza tempo e reduz erro de contagem. Aqui vai um ponto que poucos livros enfatizam: penetrância incompleta e expressividade variável podem fazer um fenótipo simplesmente não corresponder ao genótipo esperado. No meu caso, trabalhando com linhagens de Drosophila melanogaster interessadas em padrões de cor do corpo, tínhamos linhagens que pareciam seguir herança autossômica dominante para uma mutação específica, mas em certas temperaturas a manifestação fenotípica caía para cerca de sessenta por cento. O cruzamento clássico indicava presença do alelo; o fenótipo, nem sempre. A solução foi registrar temperatura de criação e ajustar expectativas antes de declarar o gene inativo. Outro detalhe técnico que faz diferença: linkage. Quando dois loci estão no mesmo cromossomo e próximos, as proporções mendelianas tradicionais se distorcem. Recomendo usar dados de recombinação e calcular distância em centimorgans. Se a frequência de recombinantes ficar abaixo de dez por cento, os genes provavelmente estão ligados. Para confirmar, realize um teste de chi-quadrado e compare com a expectativa de segregação independente. Se o p-valor cair abaixo de 0,05, a hipótese de ligação se sustenta estatisticamente.
Pegadinhas comuns e onde os iniciantes erram
O erro mais frequente é assumir dominância completa para qualquer carácter sem checar dados de heterozigotos. Caracteres quantitativos, altura, peso, rendimento de grãos, raramente seguem padrão mendeliano simples. Eles envolvem poligenia e ambiente. Aplicar 3:1 nesses casos gera previsão errada e interpretação equivocada do experimento. Um segundo tropeço sério: confundir herança ligada ao X com dominante autossômica em famílias pequenas. Em árvores genealógicas limitadas, padrões sexuais podem parecer autosômicos. A correção é ampliar a amostra e observar transmisión patrilinear versus matrilinear. Se um traço passa de pai para todos os filhos do sexo feminino e nunca de pai para filho do sexo masculino, a probabilidade de ligação ao X aumenta consideravelmente.

Limitações reais da abordagem mendeliana clássica
Mendel funciona bem para caracteres monogênicos com alelos discretos e influência ambiental limitada. Para traços complexos, epistáticos ou influenciados por metilação, o modelo simples falha. Recomendo complementar com análise de QTL, estudos de associação genômica ampla e, quando possível, dados transcriptômicos. Não há substituto para verificar o genótipo diretamente em vez de inferir apenas pelo fenótipo. Outra restrição importante: efeitos maternos e imprinting genômico. Em alguns casos, a expressão do alelo depende de qual progenitor o transmitiu, não apenas de qual alelo está presente. Ignorar esse fator leva a conclusões equivocadas sobre padrões de herança. O workaround prático é realizar crosses recíprocos e observar diferenças de fenótipo entre F1 quando a mãe carrega genótipos diferentes.
Leituras e referências úteis
Para aprofundar, o artigo original de Mendel em Versuche über Pflanzen-Hybriden está disponível digitalmente em arquivos acadêmicos. Uma releitura crítica com contexto histórico aparece em obras de historiadores da genética, como Franzulf e Stigler. Para aplicações modernas, textos de genética médica cobrem exceções, penetrância, expressividade e técnicas de mapeamento. Mantenha sempre os conceitos básicos à mão enquanto estuda casos clínicos ou experimentais; a transição entre o clássico e o contemporâneo é onde ocorre a maior parte do aprendizado efetivo.
Galeria
-
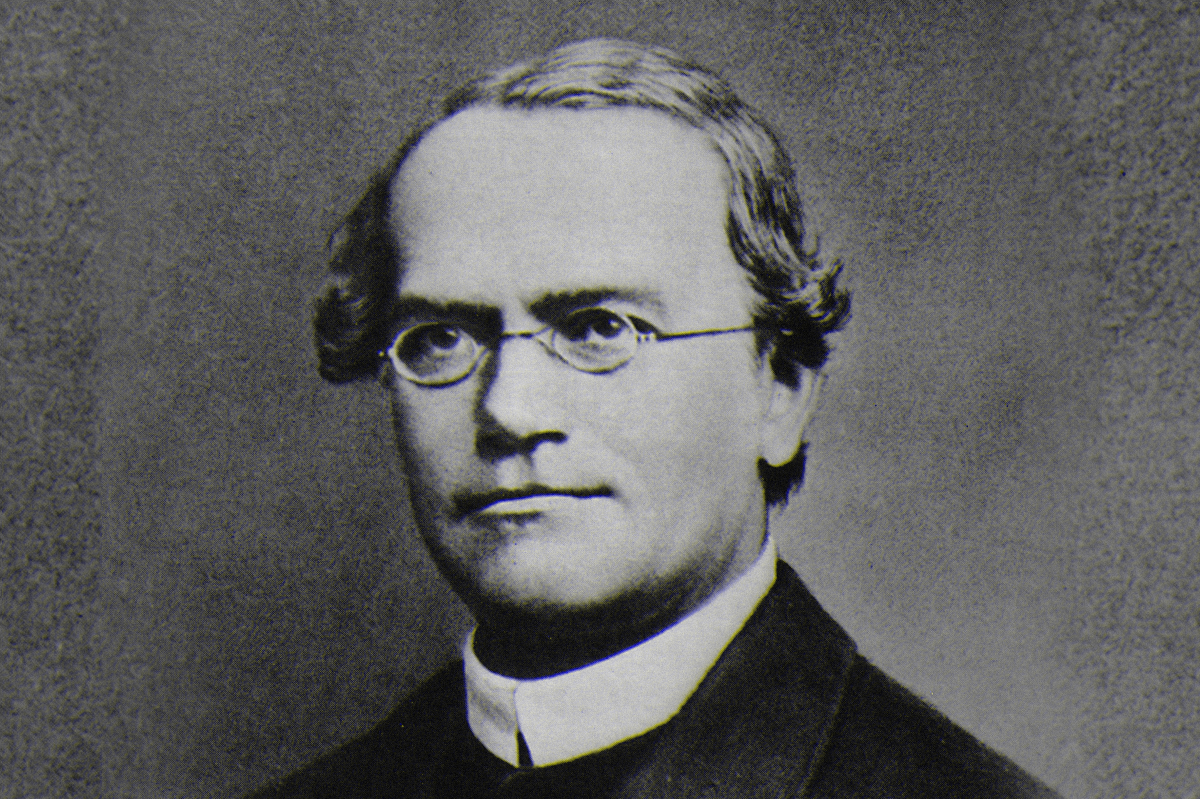
5 curiosidades sobre o monge Gregor Mendel, cientista pai da genética ... -

Mendel O Pai Da Genética - NAZAEDU -
Gregor Mendel O Pai Da Genetica | PDF -
O Monge que Mudou a Ciência, o Pai da Genética Gregor Mendel ...

