Nas Angiospermas Além Da Fertilização Da Oosfera

O que acontece depois que a oosfera é fecundada
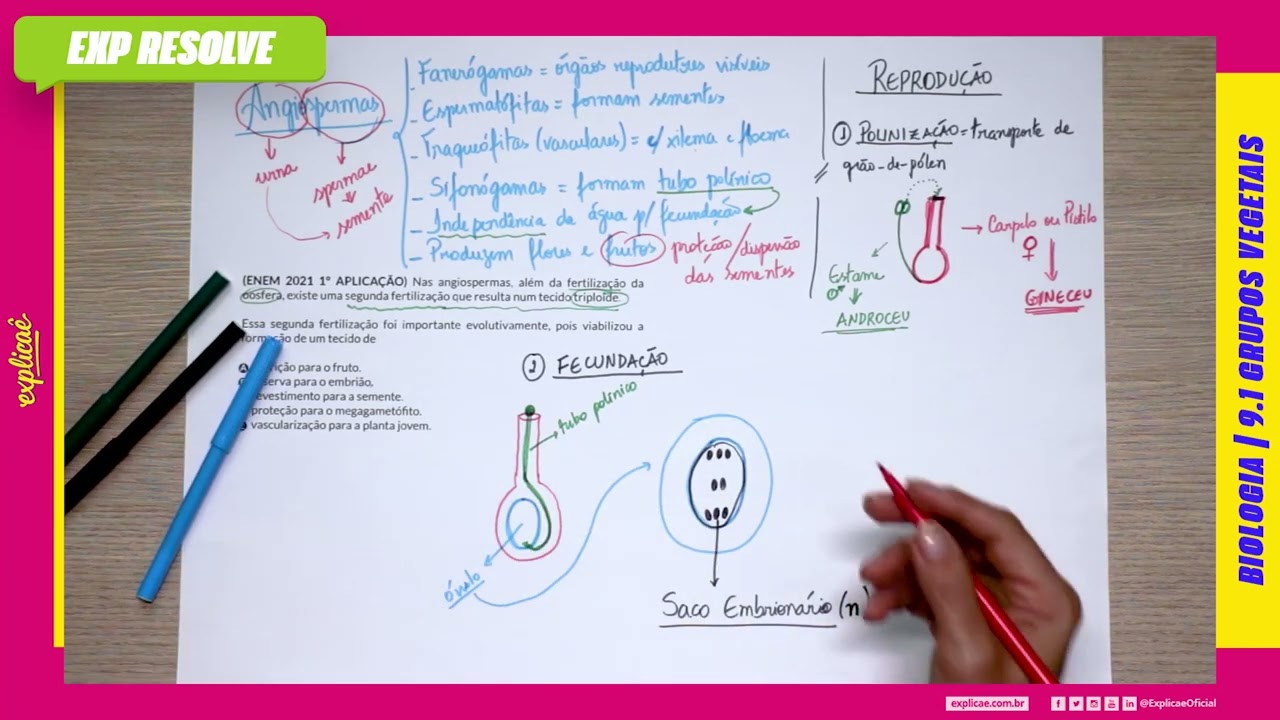
O mecanismo de dupla fecundação nas angiospermas é o que todo mundo estuda na biologia do ensino médio, mas a parte que as pessoas costumam pular — ou estudar de forma rasa — é justamente o que acontece além da fecundação da oosfera. A oosfera vira zigoto, ok, mas aí começa um processo muito mais complexo do que simplesmente "a semente vai crescer".nas angiospermas além da fertilização da oosfera
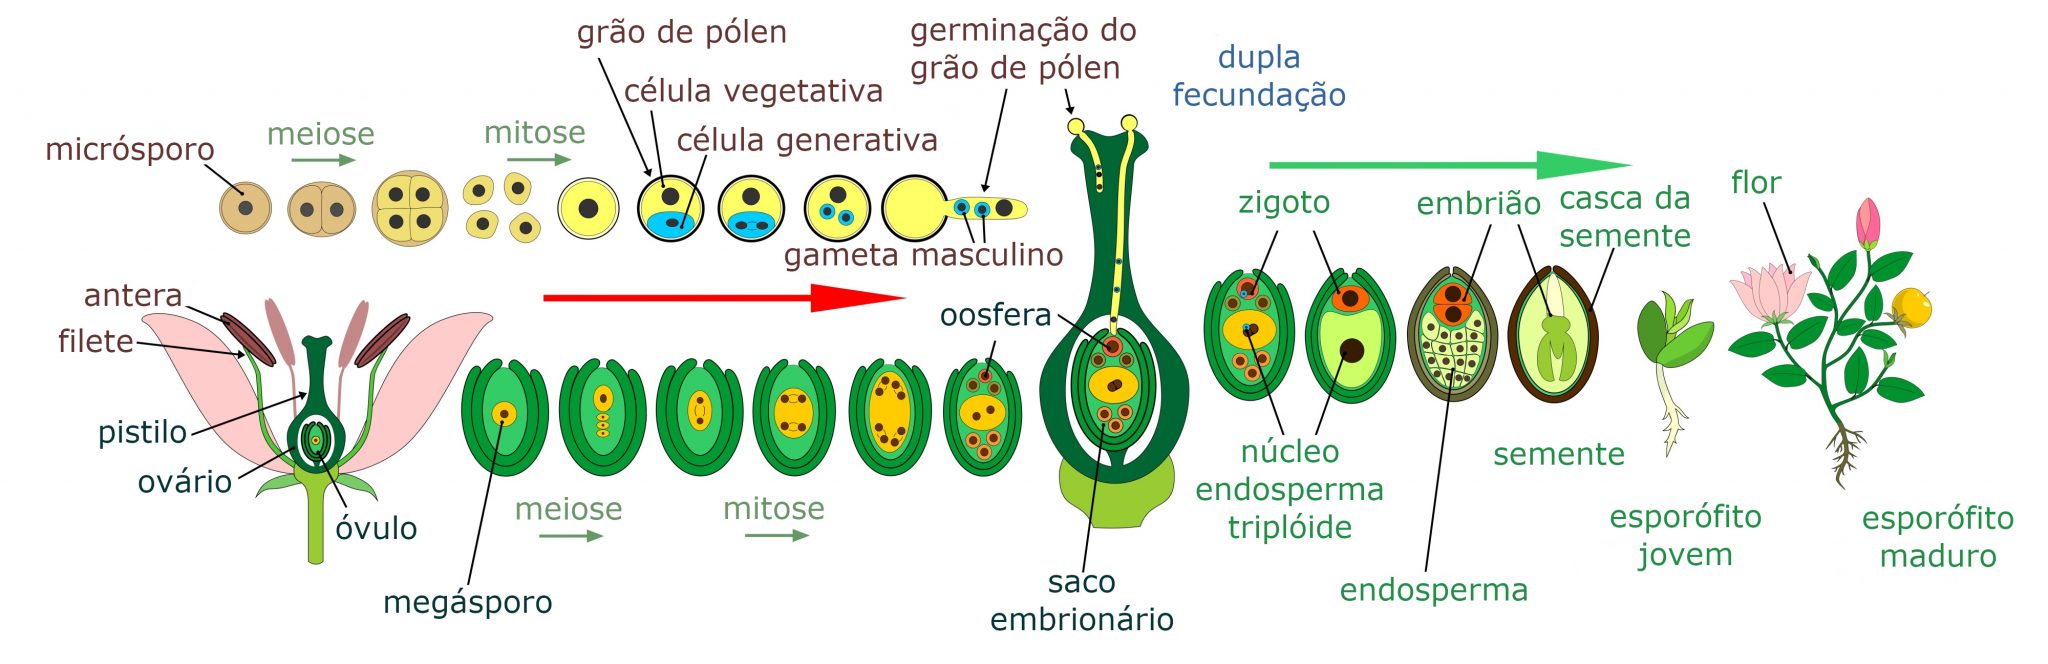
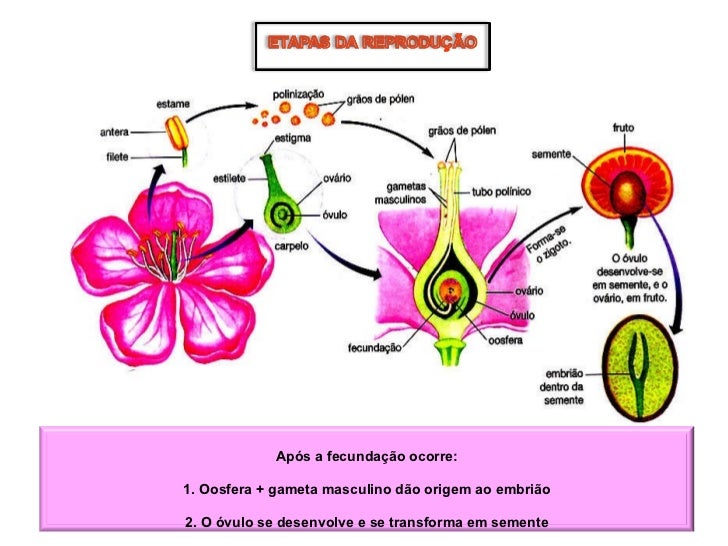
Depois que o gameta masculino se une à oosfera, formando o zigoto diplóide, uma série de eventos morfológicos e fisiológicos se inicia simultaneamente em compartimentos diferentes da mesma estrutura reprodutiva. O que acontece não é linear. É paralelo, dependente, regulado hormonalmente de forma sofisticada. O zigoto inicialmente parece quase inativo. Em muitas espécies há um período de latência que pode durar horas ou até dias, dependendo da temperatura e da espécie. Durante esse tempo, a célula-mãe do embrião se divide em uma camada externa de suspensor e no próprio embrião propriamente dito. O suspensor empurra o embrião para o interior do saco embrionário e absorve nutrientes para ele. Em eudicotiledôneas, o padrão é bem documentado: formação do embrião globular, em coração, e finalmente em formato de cotilédones dobrados. Em monocotiledôneas, a trajetória é diferente — o embrião passa por uma fase de pró-embrião e os cotilédones não se dividem em dois lóbulos distintos, ficam em formato de escudo (eléolema), que é a estrutura absorvente típica do endosperma.
Aqui vai uma coisa que poucos ensinam: a formação do embrião não é determinada apenas pelo material genético do zigoto. Sinais do tecido materno ao redor — especialmente do nucelo residual e do antípoda se ainda estiver viável — modulam a velocidade e a direção do crescimento embrionário. Se o saco embrionário for retirado cirurgicamente de uma flor em estágio inicial de fecundação, o zigoto muitas vezes não se desenvolve, mesmo que todos os cromossomos estejam corretos. O tecido materno fornece hormônios como a citocinina e auxinas em gradientes espaciais que direcionam a polaridade do embrião.
A formação do endosperma
O segundo gameta se funde com os núcleos polares do saco embrionário, formando uma célula triploide que dará origem ao endosperma. Isso acontece de três maneiras distintas conforme o grupo de angiosperma: No tipo h nuclear, a primeira divisão do núcleo primário do endosperma ocorre sem citocinese. Vários núcleos livres se formam no citoplasma central e só depois as membranas celulares aparecem, organizando-se de fora para dentro. Esse é o padrão mais comum, encontrado em poáceas (milho, trigo), leguminosas e a maioria das eudicotiledôneas. No tipo celular, cada divisão nuclear é imediatamente acompanhada por formação de parede celular. O padrão é observado em espécies como Nymphaea e em várias famílias de monocotiledôneas basais. O resultado é um endosperma que cresce de forma mais organizada, mas também mais lenta.
No tipo sinccial, uma forma intermediária, os primeiros núcleos se dividem livremente e depois formam paredes. Encontrado em algumas poucas famílias, como Chenopodiaceae. Durante minha experiência analisando preparações microscópicas de flores de trigo em diferentes idades pós-polinização, notei algo que livros didáticos quase nunca mencionam: o endosperma em formação produz fatores de sinalização que retardam a abscisão do óvulo. Se a fecundação do óvulo não ocorre, mas os tecidos acessórios do fruto começam a desenvolver-se (partenocarpia indUZIDA), o ovário ainda pode formar um fruto vazio — exatamente porque a via hormonal do endosperma e do tecido materno se sobrepõe parcialmente com a via de senescência do óvulo.
A integumento e a testa da semente
Enquanto o embrião e o endosperma se desenvolvem, os integumentos do óvulo se transformam. O integumento externo e interno perdem a maior parte do parênquima vivo, lignificam-se em diferentes graus e formam a testa — a casca da semente. As camadas da testa são frequentemente estudadas em taxonomia porque seu padrão de esclerificação varia muito entre espécies e pode ser usado como marcador filogenético. Um problema prático que encontrei ao trabalhar com germinação de sementes de leguminosas tropicais é que a testa pode permanecer impermeável por anos se não houver escarificação adequada. Em condições naturais, isso é resolvido por fogo, geada ou ação de microrganismos no solo. Em laboratório, você precisa simular isso mecanicamente. A impermeabilidade da testa é diretamente proporcional à espessura e à lignificação, que por sua vez dependem do tempo de desenvolvimento do óvulo após a fecundação. Sementes colhidas antes do ponto de maturação completa têm testa mais fina e germinam mais rápido, mas o embrião dentro muitas vezes não está viável — é um embrião imaturo que abortaria naturalmente.
O fruto e a dispersão
O pericarpo se desenvolve a partir da parede do ovário. Isso significa que toda a estrutura que chamamos de "fruto" é tecnicamente tecido materno. A relação entre desenvolvimento do fruto e desenvolvimento da semente é assimétrica: em muitas espécies, as sementes produzem auxina e citocinina que estimularam o crescimento do pericarpo. Se você remover todas as sementes de um fruto em formação, o fruto frequentemente aborta ou para de crescer. Frutos partenocárpicos são exceções que confirmam essa regra. Bananas, algumas variedades de uva e tomate podem formar frutos sem fecundação, mas isso geralmente requer interferência humana — polinização com agentes químicos ou Application de auxina sintética. Na natureza, esses casos são raros e muitas vezes representam desvios do desenvolvimento normal que resultam em frutos estéreis e com problemas de qualidade.
Dormência e senescência
A semente madura entra em dormência quando o embrião atinge sua maturidade morfológica e fisiológica e o tegumento atinge seu grau máximo de endurecimento. A dormência pode ser imposta pelo tegumento (impermeabilidade ou restrição mecânica), pelo embrião (imaturo fisiologicamente) ou por fatores internos no endosperma (inibidores de germinação como Ácido Abscísico em concentração elevada). O equilíbrio entre ABA e giberelinas é o que decide se a semente entra em dormência ou germina. Nas minhas observações com sementes de espécies brasileiras de Cerrado, percebi que algumas espécies exigem camstratificação em temperatura variável para quebrar a dormência endógena do embrião — períodos de frio intercalados com calor simulando as condições sazonais. Sementes dessas espécies armazenadas em condições estáveis de laboratório podem manter viabilidade por décadas mas nunca germinam sozinhas, porque o sinal ambiental de quebra de dormência nunca chega.
Questões que ninguém resolve com facilidade
A principal limitação no estudo do desenvolvimento pós-fecundação é a impossibilidade de acompanhar o processo inteiro in situ sem dissecção. O óvulo fica dentro do ovário, que muitas vezes é pequeno e de parede gruesa. Para observar o embrião em diferentes estágios, é preciso fazer seções seriadas e reconstruir a sequência temporal a partir de amostras estáticas — o que introduz erros de interpretação se o material vegetal tiver variabilidade natural. A variação entre indivíduos da mesma espécie pode ser grande demais para generalizações simples. Outro problema é que técnicas moleculares modernas permitem identificar genes expressos durante o desenvolvimento embrionário, mas a correlação entre expressão gênica e morfologia observável ainda é fraca para muitas espécies não-modelo. Arabidopsis e milho têm genomas sequenciados e ferramentas genéticas disponíveis, mas para a maioria das angiospermas — especialmente as da flora brasileira — o conhecimento é baseado em descrições morfológicas antigas, muitas das quais precisam ser revistas. Se você está começando a estudar esse tema, o conselho prático é começar com espécies de fácil observação microscópica, como Lilium ou Pisum, cujos estágios de desenvolvimento do saco embrionário e do embrião são bem documentados e visualmente claros em seções histológicas. Só depois avance para espécies com padrões mais complexos ou estruturas de fruto menos acessíveis. A maioria dos manuais recomenda o contralto como corante para seções de tecidos vegetais fixados, e a técnica de esfoliação de epidermes para observar a estrutura da testa sem seções transversais, o que pode poupar bastante tempo de preparo de amostras.
Galeria
-

Nas angiospermas, além da fertilização da oosfe... | Prisma -

Nas Angiospermas Alem Da Fertilização - FDPLEARN -
Quais Sao As Fases Da Fecundacao Das Angiospermas? – PYNXL
