O Ciclo De Krebs Ocorre Na Matriz Mitocondrial

Entendendo a localização e o funcionamento do ciclo de Krebs
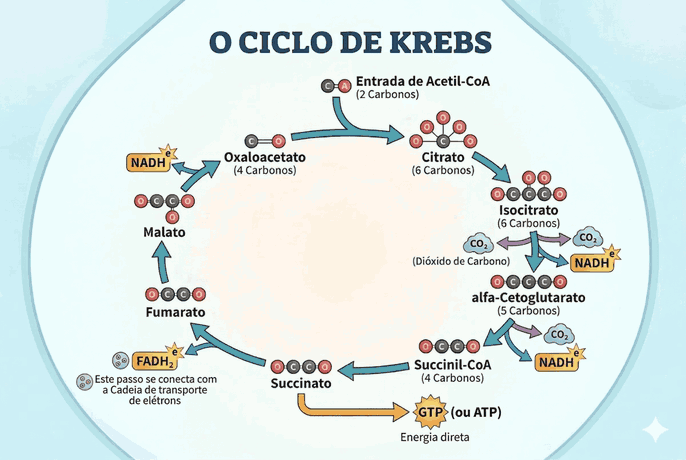
Muita gente confunde onde as reações acontecem. O ciclo de Krebs, também chamado de ciclo do ácido cítrico ou ciclo dos ácidos tricarboxílicos, ocorre efetivamente na matriz mitocondrial, que é o espaço interno preenchido por um fluido aquoso dentro da organela. Ele não acontece na membrana externa, nem na crista mitocondrial, embora essas estruturas sejam parte do mesmo complexo. A NADH desidrogenase, o complexo I da cadeia transportadora de elétrons, fica na membrana interna. Já as enzimas do ciclo estão solúveis na matriz. Isso é importante porque define como os intermediários se movem e como o pH local interfere na cinética enzimática. A matriz mitocondrial reúne condições específicas: pH mais alcalino em torno de 7,8, concentração elevada de íons magnésio, e todas as enzimas dissolvidas no meio aquoso. A enzima citrato sintase, a isocitrato desidrogenase, a -cetoglutarato desidrogenase e a succinato desidrogenase operam ali. A última é um caso à parte porque está ancorada na membrana interna, mas seu sítio ativo volta-se para a matriz. A aconitase, a fumarase e a malato desidrogenase completam o conjunto. A localização na matriz permite que o piruvato, vindo do citoplasma pela entrada mitocondrial via transportador de monocarboxilato ou por difusão facilitada através da porina, chegue direto às enzimas sem precisar cruzar barreiras adicionais. Se você estiver estudando isso para uma prova, lembre-se: a matriz é o ambiente físico onde o acetil-CoA se combina com oxaloacetato para iniciar o ciclo. Eu passei bastante tempo lidando com preparo de extratos mitocondriais e, de cara, precisei isolar a fração de matriz para estudar a atividade da succinato desidrogenase e das outras enzimas do ciclo. Uma vez, ao medir a atividade da citrato sintase em diferentes condições, percebi que a concentração de citrato excedente inibia a aconitase de forma não competitiva, diminuindo a taxa do ciclo sem afetar a Vmax da sintase diretamente. O problema era que eu estava usando tampão fosfato em concentração alta, e o fosfato interferia na ligação do Mg2+ às enzimas. Troquei o tampão por HEPES, ajustei o pH para 7,6 e mantive 2 mM de MgCl2. A atividade estabilizou e as medições ficaram consistentes. Isso mostra que a matriz não é só um recipiente passivo; a composição iônica e o pH determinam a velocidade real das reações.
Um ponto que costuma passar despercebido é a questão do transporte de intermediários. O malato precisa ser exportado para o citoplasma pelo translocador malato--cetoglutarato quando a célula demanda gliconeogênese. Esse fluxo puxa reações para frente e altera o balanço redox NADH/NAD+ dentro da matriz. Se você bloquear esse transportador, por exemplo com ácidos dicarboxílicos em excesso, o ciclo desacelera mesmo com todo o substrato disponível. Outra coisa: a succinato desidrogenase produz FADH2, e o FAD não difunde livremente como o NAD+. Ele está covalentemente ligado à subunidade flavoproteica da enzima, então o fluxo de elétrons vai direto para o ubiquinol na cadeia transportadora. Isso explica por que o rendimento de ATP por molécula de FADH2 é menor do que o de NADH. Começantes costumam achar que ambos geram a mesma quantidade, o que está errado. Tem também a regulação alostérica que ninguém menciona com a devida importância. O ATP inibe a citrato sintase e a isocitrato desidrogenase, enquanto o ADP ativa essas mesmas enzimas. O cálcio intramitocondrial, vindouro do retículo sarcoplasmático em tecido muscular, estimula a piruvato desidrogenase fosfatase e as três desidrogenases do ciclo. Ou seja, contração muscular intensa eleva o cálcio na matriz e acelera o ciclo para suprir a demanda energética. Se você estiver analisando dados de respirometria com células musculares, note essa variável. Ignorar o cálcio leva a conclusões equivocadas sobre a capacidade oxidativa mitocondrial. O ciclo também interage com vias anaptréticas e cataptréticas. A anidrase da malato pode repor oxaloacetato a partir de piruvato via piruvato carboxilase, uma reação dependente de biotina e ativada por acetil-CoA. Quando os níveis de acetil-CoA estão altos, a carboxilação do piruvato aumenta, mantendo o oxaloacetato disponível para o ciclo. Se o acetil-CoA cair demais, a carboxilase desliga e o ciclo pode travar por falta de aceitor. Esse equilíbrio é sensível e varia conforme o estado nutricional. Em jejum prolongado, a oxidação de ácidos graxos gera muito acetil-CoA, o que estimula a carboxilase e mantém o ciclo rodando, mesmo com pouca glicose disponível.
Outra armadilha comum é confundir a produção líquida de GTP com ATP direto. A enzima succinil-CoA sintetase produz GTP em muitos tecidos, e esse GTP é convertido em ATP pela nucleosidio difosfoquinase. Em alguns organismos e tecidos, a enzima produz ATP diretamente. A diferença é pequena na prática, mas pode mudar cálculos estequiométricos se você estiver construindo modelos metabólicos detalhados. Use os números corretos para o sistema que está analisando. Para mamíferos em condições padrão, conte GTP como equivalente a ATP após a conversão enzimática. Se você quer aplicar esse conhecimento na prática, comece entendendo que a matriz mitocondrial é um compartimento dinâmico cuja composição muda conforme a fisiologia celular. Meça o consumo de oxigênio junto com a produção de NADH fluorescente, monitore o potencial de membrana com sondeos como o TMRE e controle rigorosamente a temperatura, o pH e a concentração de Mg2+ no meio de suspensão mitocondrial. Esses detalhes fazem a diferença entre dados confiáveis e ruído que parece útil no início mas se mostra inconsistente na replicação.
Galeria
-

Ciclo de Krebs: o ciclo do ácido cítrico - Brasil Escola -

Diagrama Do Ciclo De Krebs Mitocondrias -

Ciclo De Krebs Mitocondria – Respiración celular – JKTBL -

ciclo de krebs | Aprendendo Biologia
