O Que É Fosforilação Oxidativa

O que acontece dentro da sua mitocôndria quando você respira
Se você já estudou bioquímica no ensino médio ou num primeiro semestre de faculdade, provavelmente viu um diagrama bonito com setas coloridas, NADH entrando de um lado, oxigênio saindo do outro, e ATP aparecendo no final como se fosse mágica. A realidade é bem menos poética. A fosforilação oxidativa é o processo pelo qual as células — especificamente as organelas chamadas mitocôndrias — produzem a maior parte do ATP que sustenta suas funções vitais. Mas entender o mecanismo de verdade exige olhar além do texto didático. O que é fosforilação oxidativa vai muito além de "gerar energia". É um sistema acoplado de transporte de elétrons e bombeamento de prótons que depende de uma série de complexos proteicos embedados na membrana interna mitocondrial. Sem ele, você basicamente para de funcionar. Seu cérebro consome cerca de 20% do ATP total do corpo em repouso. Sem fosforilação oxidativa ativa, isso acaba em minutos.
o que é fosforilação oxidativa sob a perspectiva prática
Vou começar explicando como eu lido com isso na prática, porque a teoria sozinha não segura. Quando eu trabalho com isolamentos mitocondriais em laboratório, o primeiro sinal de que algo está errado não é o gráfico de respirometria — é o cheiro. Mitocôndrias saudáveis, com fosforilação oxidativa funcionando, têm um perfil respiratório bem definido. Se o estado de acoplamento (razão ADP/O) cai abaixo de 2,5 para NADH-substrato, normalmente significa que a membrana interna está ficando permeável demais ou que algum inibidor entrou no sistema. Um caso específico que marca até hoje: estava fazendo ensaio de respirometria com tecido cardíaco de rato, usando o substrato piruvato + malato para alimentar o Complexo I. O O2 consumption rate (OCR) parecia normal nos primeiros dois minutos, mas aí caía abruptamente. Nenhuma das soluções estava contaminada, o pH estava correto, a temperatura estava em 37°C. Levei cerca de seis horas para perceber o problema. O tampão Tris que eu usava tinha um traço de impureza que inibia fortemente o Complexo I. Troquei o sal de lote, usei HEPES no lugar, e o padrão respiratório voltou ao esperado em menos de dez minutos. Às vezes o problema não é o que você pensa que é. Isso ilustra um ponto importante sobre o que é fosforilação oxidativa: o sistema é extremamente sensível a perturbações menores. Inibidores como rotaenom (Complexo I), antimicina A (Complexo III), cianeto e monóxido de carbono (Complexo IV) bloqueiam etapas específicas. Desacopladores como DNP e FCCP fazem os prótons vazar pela membrana sem gerar ATP. Substâncias como a oligomicina bloqueiam a ATP sintase diretamente. Cada um desses agentes produz um perfil respiratório distinto que pode ser lido em um analisador de respirometria.
Como o processo funciona de fato
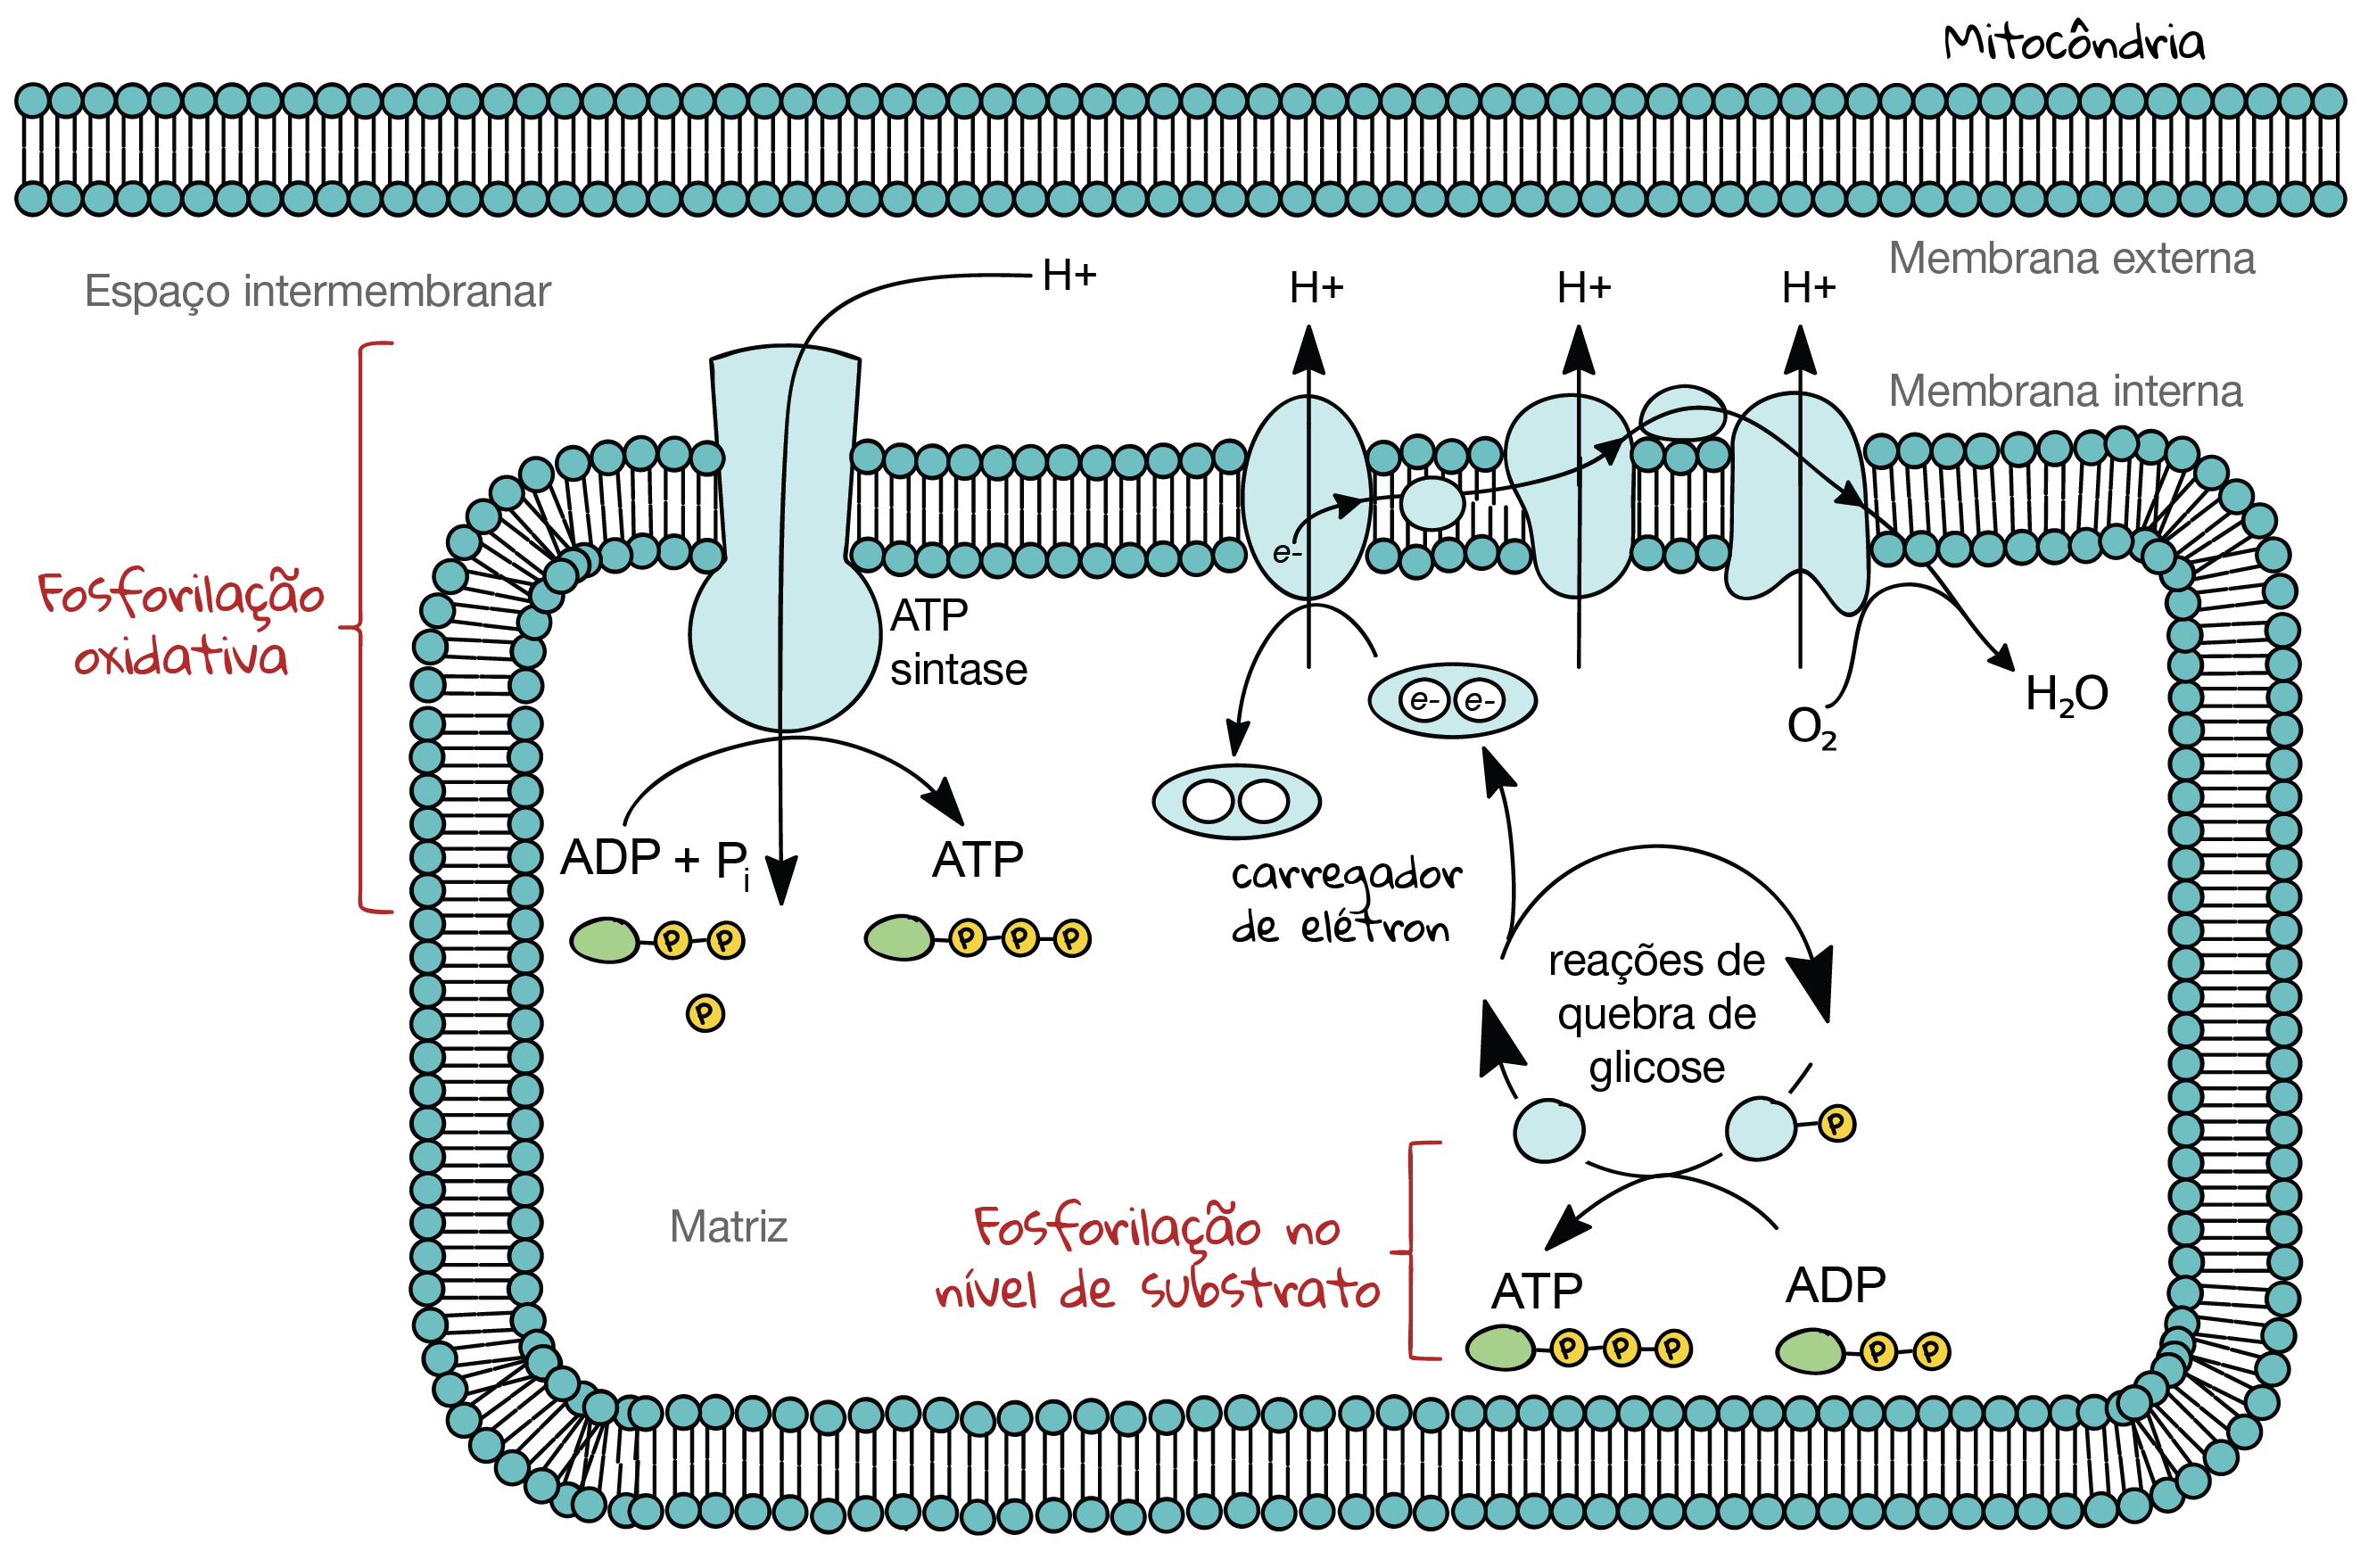
A fosforilação oxidativa opera por quimiosmose, um conceito proposto por Peter Mitchell que rendeu o Nobel e ainda é mal compreendido. A ideia central é simples mas elegantemente complexa: elétrons de alta energia, carregados por NADH e FADH2 provenientes do ciclo de Krebs, da beta-oxidação e de outras vias metabólicas, são transferidos através de uma cadeia de transportadores na membrana interna mitocondrial. Esses transportadores são os Complexos I a IV, mais a ubiquinona (Coenzima Q) e o citocromo c como carreadores móveis. Cada passo na transferência de elétrons libera uma quantidade pequena de energia. Essa energia é usada para bombear prótons (H+) da matriz para o espaço intermembranar. O resultado é um gradiente eletroquímico de prótons — chamado de força protomotoora (PMF) — que tem dois componentes: um gradiente de concentração (mais H+ fora da matriz) e um gradiente elétrico (o interior da matriz fica negativo em relação ao espaço intermembranar). Juntos, esses dois fatores criam uma pressão enorme, da ordem de 180-220 mV, empurrando os prótons de volta para a matriz. O único caminho permitido para esse retorno é a ATP sintase, também conhecida como Complexo V. Ela funciona como uma turbina molecular. Cada giro da parte rotatória da ATP sintase, impulsionado pelo fluxo de prótons, produz três moléculas de ATP a partir de ADP e fosfato inorgânico (Pi). O número exato de prótons necessários por ATP varia dependendo do organismo e do tipo de ATP sintase, mas em mamíferos a estimativa mais aceita é de cerca de 2,7 a 4 prótons por ATP liberado, considerando o transporte de Pi e a troca ADP/ATP através da membrana.

O oxigênio atua como o aceitador final de elétrons no Complexo IV (citocromo c oxidase). Sem oxigênio, a cadeia para. Os elétrons ficam "emperrados" nos transportadores, o bombeamento de prótons cessa, e a produção de ATP para quase imediatamente. É por isso que asfixia e envenenamento por cianeto são tão letais — eles bloqueiam o Complexo IV, e tudo o que depende de ATP aeróbico entra em colapso em segundos.
Números que importam
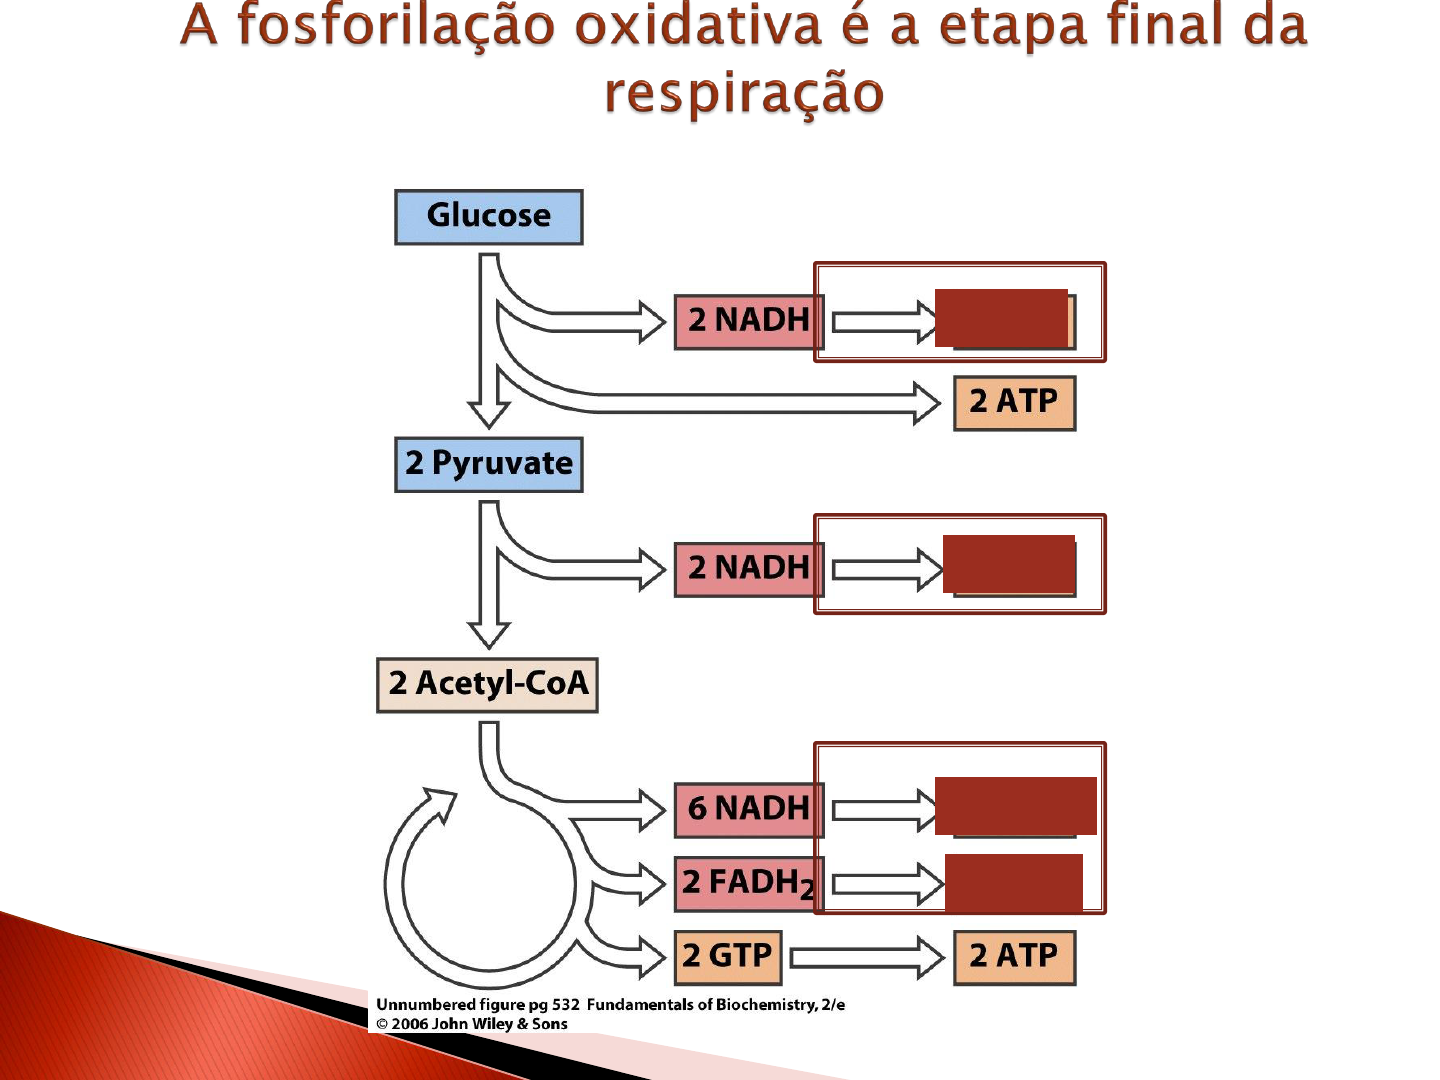
Em condições ideais, a oxidação de uma molécula de NADH gera aproximadamente 2,5 moléculas de ATP. Uma molécula de FADH2 gera cerca de 1,5 ATP. Para contextualizar: uma célula hepática humana típica contém cerca de 1000 a 2000 mitocôndrias, e cada mitocôndria pode produzir milhares de ATP por segundo. O corpo humano recicla aproximadamente seu próprio peso em ATP todos os dias — cerca de 50 a 75 gramas em repouso, muito mais durante exercício intenso. Sem fosforilação oxidativa, esse turnover seria impossível. O rendimento energético é impressionante. A glicose completa via glicólise, ciclo de Krebs e fosforilação oxidativa rende tradicionalmente até 38 ATP por molécula. Estimativas mais recentes, considerando o custo de transporte e perdas reais, colocam o número em torno de 30 a 32 ATP por glicose. Mesmo assim, isso é enormemente mais eficiente que a fermentação, que rende apenas 2 ATP por glicose e não envolve cadeia transportadora de elétrons de forma alguma.
Limitações e pontos de falha que ninguém menciona
Aqui é onde a maioria dos materiais didáticos falha. A fosforilação oxidativa não é um sistema perfeito. Ela gera espécies reativas de oxigênio (ROS) como subproduto inevitável. Quando elétrons vazam da cadeia — especialmente no Complexo I e Complexo III — e encontram oxigênio prematuramente, formam-se radicais superóxido (O2•), que são convertidos em peróxido de hidrogênio (H2O2) pela superóxido dismutase. Em níveis baixos, esses ROS funcionam como sinalizadores celulares. Em níveis altos, causam dano oxidativo a proteínas, lipídios de membrana e DNA mitocondrial. O DNA mitocondrial é particularmente vulnerável porque não tem histonas protetoras e está fisicamente próximo do local de geração de ROS. Mutações no mtDNA se acumulam com a idade, e isso está diretamente associado ao declínio funcional mitocondrial observado em envelhecimento e em doenças neurodegenerativas. Mitocôndrias com DNA danificado produzem menos ATP, geram mais ROS, e o ciclo se autoalimenta. Não existe um mecanismo de reparo tão eficiente quanto o do DNA nuclear. Outro ponto cego: a fosforilação oxidativa depende inteiramente do suprimento de ADP. Se a célula não está consumindo ATP, não há ADP disponível, e a ATP sintase para. Isso se chama controle respiratório por substrato, e é um mecanismo de regulação fino. Células com demanda energética baixa — como neurônios em repouso ou adipócitos brancos — têm mitocôndrias com taxa respiratória basal muito menor. Células como cardiomiócitos, que nunca param de contrair, têm mitocôndrias que ocupam até 35-40% do volume celular e operam praticamente no limite máximo continuamente.
Um problema prático que encontro frequentemente em experimentos: a preparação mitocondrial perde acoplamento rapidamente após isolamento. Mitocôndrias recém-isoladas de fígado de rato têm razão de controle respiratório (RCR) de 8 a 12 — ou seja, respiram 8 a 12 vezes mais na presença de ADP do que no estado basal. Após 30 a 45 minutos fora das condições ideais, esse número cai para 3 ou 4, e a preparação é praticamente inútil para ensaios quantitativos. O segredo é trabalhar rápido, manter tudo a 4°C até o momento do uso, e usar tampão adequado com ATPase inhibitors se for medir atividade de bases específicas.
Interações com outras vias metabólicas
A fosforilação oxidativa não opera isoladamente. Ela está intrinsicamente ligada ao ciclo de Krebs, que fornece os pares de elétrons na forma de NADH e FADH2. O ciclo de Krebs, por sua vez, depende do ATP produzido pela fosforilação oxidativa — várias de suas enzimas são reguladas alostericamente pela razão ATP/ADP. É um circuito fechado de dependência mútua. A beta-oxidação de ácidos graxos também alimenta diretamente a cadeia respiratória, produzindo NADH e FADH2 a cada ciclo. Ácidos graxos de cadeia longa exigem o sistema carnitina-palmitoiltransferase para entrar na mitocôndria, e defeitos nesse transportador causam hipoglicemia severa e acumulo de gordura no fígado porque o tecido não consegue usar gordura como combustível. Nessas condições, a fosforilação oxidativa simplesmente não recebe substrato suficiente para manter a homeostase energética. Existem também tecidos que contornam parcialmente a fosforilação oxidativa em certas condições. O tecido adiposo marrom, por exemplo, expressa UCP1 (proteína desacoplante 1) na membrana interna mitocondrial. Quando ativada por norepinefrina, a UCP1 permite que prótons entrem na matriz sem passar pela ATP sintase, dissipando o gradiente como calor em vez de produzir ATP. Esse é o mecanismo de termogênese não-tremor, crucial em recém-nascidos e em animais hibernantes. Em humanos adultos, quantidades significativas de adiposo marrom ainda existem ao redor do pescoço e da coluna torácica superior.
Por que isso é relevante fora do laboratório
Entender o que é fosforilação oxidativa tem implicações práticas diretas. Doenças mitocondriais, como a neuropatia óptica hereditária de Leber (LHON) ou a síndrome de MELAS, afetam diretamente componentes da cadeia respiratória. O tratamento é limitado — existem abordagens experimentais como coenzima Q10, ácido alfa-lipóico e vitamina E como antioxidantes mitocondriais, mas nenhuma cura estabelecida para a maioria dessas condições. Na prática clínica comum, marcadores como lactato sérico e razão lactato/piruvato são usados como indicadores indiretos de disfunção na fosforilação oxidativa. Quando a cadeia respiratória não funciona adequadamente, a célula compensa aumentando a glicólise anaeróbica, acumulando lactato. Um lactato persistentemente elevado em paciente sem choque hipovolêmico deve levantar suspeita de problema mitocondrial ou de droga mitocondrialotóxica — como alguns nucleosídeos reverso transcriptase inhibitors usados no tratamento do HIV, que podem induzir toxicidade mitocondrial e causar miopatia, neuropatia e esteatose hepática. Exercício físico regular melhora a biogênese mitocondrial através da ativação de PGC-1, um coativador transcricional que aumenta a expressão de genes tanto nucleares quanto mitocondriais relacionados à fosforilação oxidativa. Estudos mostram que 6 a 8 semanas de treinamento de resistência podem aumentar a densidade mitocondrial em músculo esquelético em até 50%, melhorando significativamente a capacidade oxidativa e a tolerância ao exercício. Esse é um dos exemplos mais claros de plasticidade mitocondrial em humanos.

Galeria
-
Etapas De Fosforilacao Oxidativa Respiração Celular: Como Funciona, -

Etapas De Fosforilacao Oxidativa Respiração Celular: Como Funciona,
