Ponte De Hidrogenio Dna

Como funcionam as pontes de hidrogênio no DNA na prática
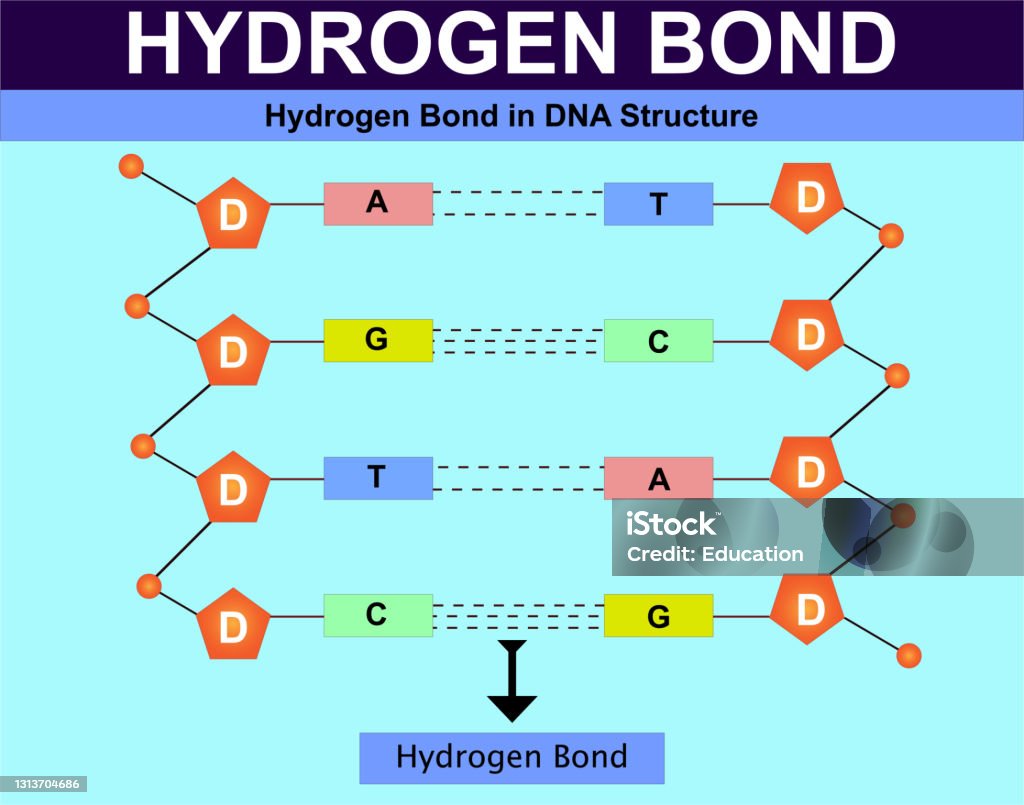
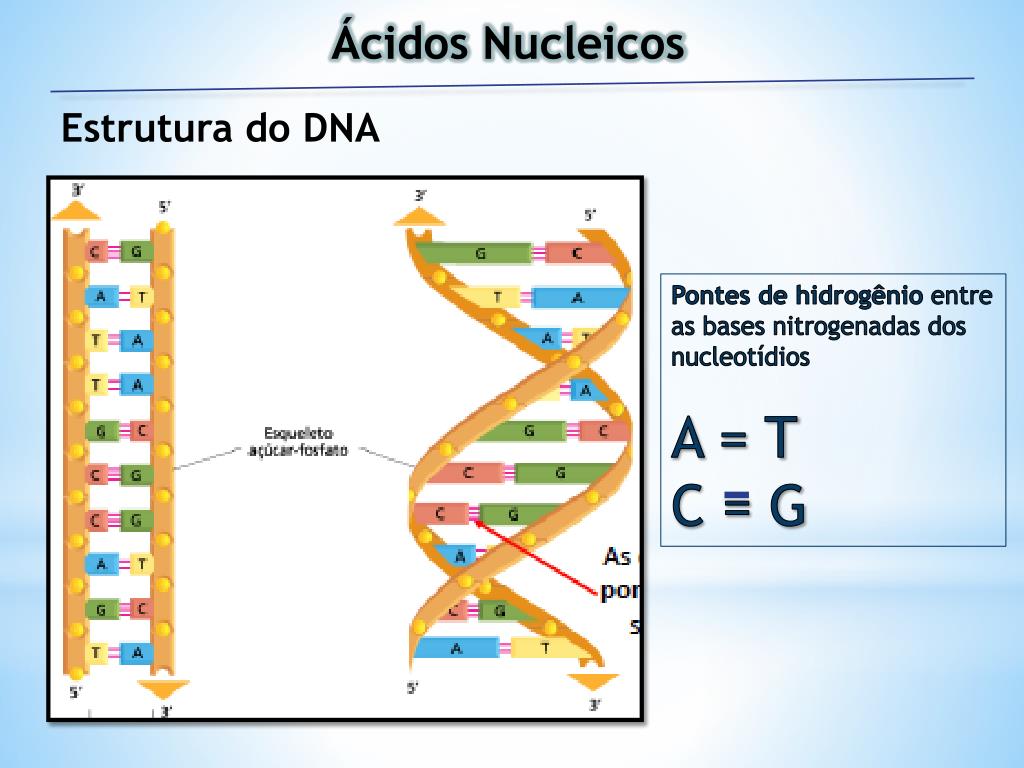
A estrutura do DNA depende de um emaranhado invisível de ligações fracas que, parado, parecem algo frágil. Na realidade, são elas que garantem a estabilidade da dupla hélice e permitem que o ácido desoxirribonucleico se abra quando precisa ser lido ou copiado. Entender ponte de hidrogenio dna vai muito além de decorar que A emparelha com T e G com C. O que acontece nos bastidores é bem mais técnico. Cada par de bases forma um número fixo de pontes: adenina e timina compartilham duas, enquanto guanina e citosina compartilham três. Isso significa que regiões com maior teor de GC exigem mais energia para serem desnaturalizadas. Em laboratório, isso se traduz diretamente na temperatura de fusão do seu DNA. Uma sequência com 60% de GC derrete cerca de 10 a 15 graus acima de uma com 40% de GC, dependendo do comprimento e da força iônica do buffer.
O que ninguém te conta sobre ponte de hidrogenio dna
O erro mais comum é tratar as pontes de hidrogênio como forças estáticas. Elas não são. Cada ponte tem uma vida média da ordem de nanosegundos a microssegundos antes de quebrar e se reformar. Esse dinamismo é o que permite que a helicase desfaça a dupla fita durante a replicação sem precisar de energia absurda. Se fossem ligações covalentes, o processo seria energeticamente proibitivo. Outro ponto negligenciado: o contexto químico ao redor importa mais do que a simples contagem de pares. Íons como Mg2+ blindam a carga negativa do backbone de fosfato, reduzindo a repulsão eletrostática entre as fitas. Sem essa blindagem, as pontes de hidrogênio sozinhas não segurariam a hélice. Em PCR, a concentração de MgCl2 é crítica justamente por isso — e a variação de apenas 0,5 mM já pode arruinar uma reação inteira. Na prática, eu já perdi dias tentando sequenciar um fragmento de 800 pb que simplesmente não ampliava. A região tinha 78% de GC, o que formava uma rede tão densa de pontes de hidrogênio que a polimerase clássica simplesmente parava antes de chegar lá. A solução foi trocar para uma polimerase especializada em alto GC, como a Kapa HiFi, e adicionar DMSO a 5% no mix. O DMSO interfere na estabilização secundária das fitas, reduzindo a força efetiva das pontes de hidrogênio e permitindo que a polimerasse avançasse. O protocolo que antes travava totalmente passou a render leitura limpa em duas horas.
Também já vi gente usar espectrofotometria UV para quantificar DNA sem considerar que a absorbância a 260 nm depende diretamente do grau de emparelhamento. DNA fita simples absorve cerca de 40% mais que DNA duplo porque as bases ficam mais expostas. Se você quantificar DNA desnaturado com a curva de calibração de DNA duplo, seu resultado estará inflacionado. Isso parece óbvio, mas acontece todo dia em laboratórios apressados. Outra armadilha: a temperatura de melts não é só função das pontes de hidrogênio. O empilhamento de bases (stacking interactions) contribui tão fortemente quanto, e em alguns casos até mais. Ignorar esse fator leva a previsões erradas de Tm, especialmente em sequências curtas ou com mismatches. Ferramentas como o algoritmo de SantaLucia levam em conta ambos os fatores, e o uso delas reduz o erro de previsão de Tm de cerca de 8 graus para menos de 2 graus na maioria dos casos. Se o seu objetivo é apenas saber o básico para uma prova, contar os pares de pontes resolve. Se o seu objetivo é trabalhar com isso de verdade, especialmente em técnicas como CRISPR, qPCR ou sequenciamento de nova geração, o detalhe está nas condições experimentais. Uma ponta de hidrogênio isolada é fácil de subestimar. Um milhão delas alinhadas em paralelo definem se o seu experimento funciona ou falha siliciosamente.

Galeria
-

Qual ligação ocorre no DNA ? Fosfodiester ou Ponte de Hidrog - Explicaê -
Vetores de Ligação De Hidrogênio Na Estrutura De Dna Ligação De ... -
Ligação De Hidrogenio Dna - FDPLEARN -

Dna De Ligacao De Hidrogenio
