Qual É A Fonte De Energia Primária Nas Cadeias Alimentares
O que acontece nos fundos dos oceanos quando o sol some
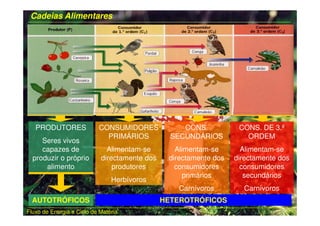
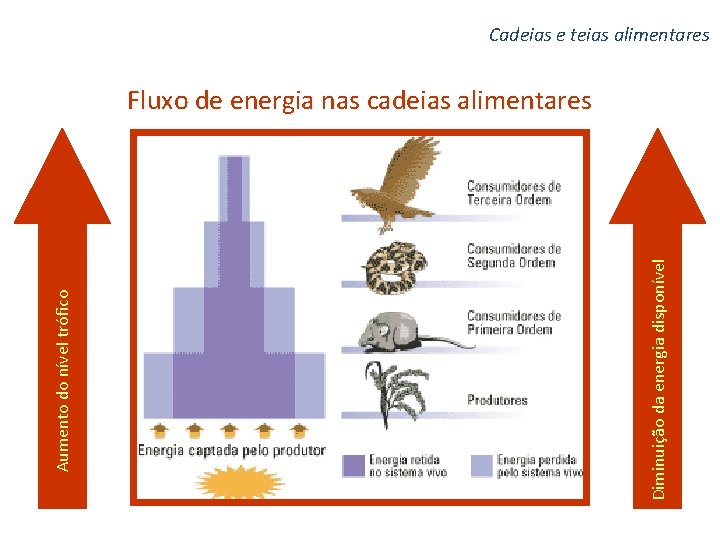
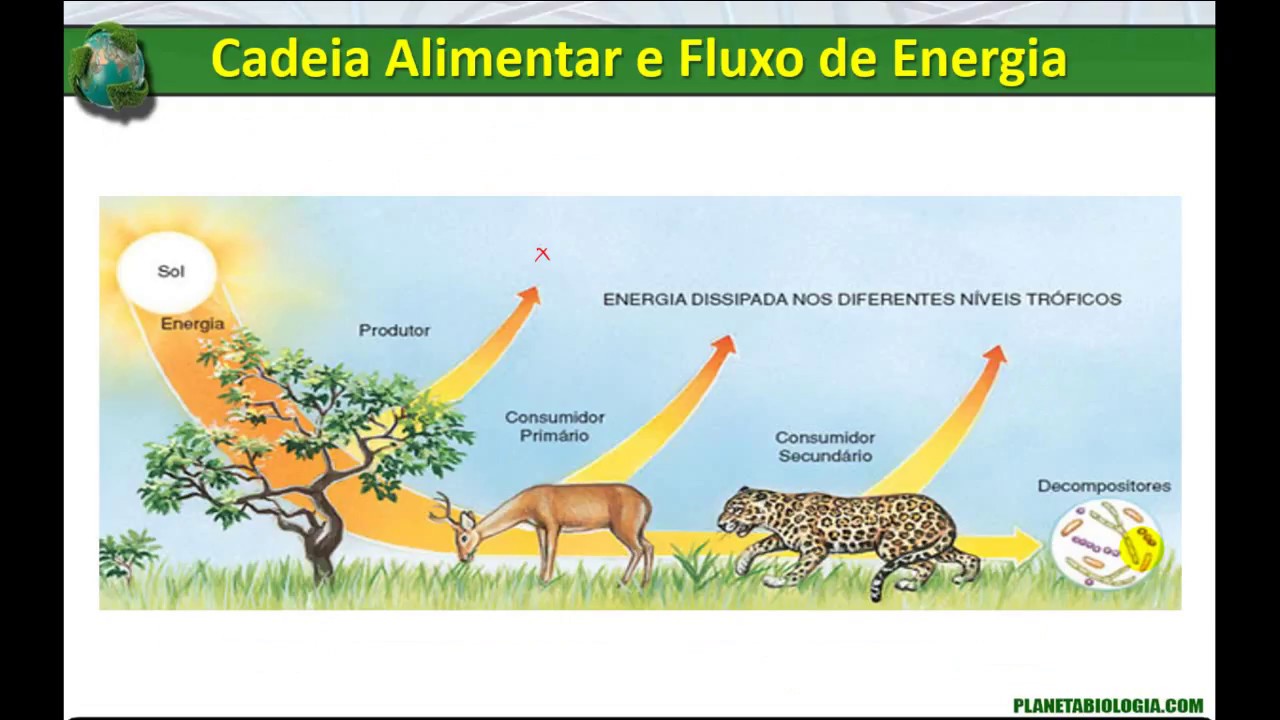
A fonte de energia primária na esmagadora maioria das cadeias alimentares é a luz solar. A fotossíntese converte radiação eletromagnética em energia química armazenada em ligações orgânicas, e tudo o mais depende disso direta ou indiretamente. Fitoplâncton, florestas, algas costeiras, cianobactérias. Sem essa conversão inicial, a teia alimentar básica simplesmente não existe. Isso é biologia de primeiro ano, mas a parte que as pessoas costumam pular é que a eficiência dessa transferência cai brutalmente a cada nível trófico. Aproximadamente 90% da energia se perde como calor metabólico, movimento, respiração. Sobra cerca de 10% para o próximo degrau. É por isso que é raro ver uma cadeia com mais de cinco níveis funcionais. A energia simplesmente acaba. Resposta curta: radiação solar. Resposta que importa: a energia do sol é capturada por produtores primários autotróficos e entra na cadeia sob a forma de biomassa vegetal ou algal. Herbívoros comem os produtores. Carnívoros comem herbívoros. Decompositores quebram tudo no final. O sol alimenta o sistema do início ao fim, com a exceção importante que vou mencionar agora. No meu trabalho com modelos ecossistêmicos e monitoramento de bacias hidrográficas, passei anos acompanhando a dinâmica dessas transferências. Um detalhe que causa confusão constante são os casos onde a cadeia não começa no sol. Fontes hidrotermais no fundo do mar, exsudações de metano, brejos anóxicos. ali, a quimiossíntese substitui a fotossíntese. Bactérias oxidam sulfeto de hidrogênio ou metano e geram biomassa sem nenhuma participação direta da luz solar. É um cenário raro na superfície do planeta, mas em profundidades abissais essas comunidades podem ser densas e produtivas. Já mediei taxas de produção primária em fontes ativas e a diferença para regiões fóticas adjacentes é absurda. A biomassa por unidade de área é menor, mas a eficiência de conversão da energia química em tecido vivo às vezes supera a da fotossíntese pura, porque não há perda por reflexo ou dispersão espectral.
Outro ponto que os iniciantes frequentemente tratam como se fosse secundário e que na prática causa erros de cálculo sérios: a diferença entre energia solar incidente e energia captável. Não é a mesma coisa. O espectro utilizável na fotossíntese fica entre 400 e 700 nanômetros, conhecido como radiação fotossinteticamente ativa, ou PAR. A parcela da radiação total que realmente chega às folhas ou aos cloroplastos flutuantes varia com ângulo solar, turbidez da água, cobertura de nuvens, espessura do dossel. Em ambientes aquáticos, a penetração do PAR cai exponencialmente com a profundidade e a presença de matéria orgânica dissolvida ou partículas em suspensão. Já vi modelos superestimarem a produção primária de um reservatório porque usaram irradiância global horizontal em vez de PAR submerso corrigido por coeficiente de atenuação. O erro pode passar de 40% em águas eutrofizadas. A correção exige medição in situ com sensível PAR e perfil vertical, ou pelo menos dados de transparência via disco de Secchi calibrados contra atenuação. Se você não tem acesso a equipamento, o segundo melhor é usar índices de reflectância de satélite para estimar concentração de clorofila e derivados, ainda que com margem de erro maior. Tem também a pegadinha dos detritos. A cadeia detritívora consome muita energia que nunca passou por um herbívoro vivo. Folhas caídas, fezes, carcaças, biofilmes. Todo esse material carrega energia solar original, mas entra na rede por uma porta lateral. Em florestas temperadas, por exemplo, a maior parte da energia do ecossistema pode transitar pelos decompositores em vez de subir pela cadeia pastagem-herbívoro-carnívoro. Se o seu modelo ou a sua análise ignora esse fluxo, subestima drasticamente a taxa de renovação de nutrientes e a resiliência do sistema após perturbacões. Eu costumo separar explicitamente a cadeia pastejo da cadeia detrito nos meus mapeamentos energéticos porque elas respondem de maneiras diferentes a secas, incêndios e poluição. Um caso concreto que me marcou: monitoramos um trecho de rio montanhoso com vegetação ripária densa e pouca incidência solar direta na superfície da água durante boa parte do dia. A produção fitoplanctônica local era irrelevante. A energia entrava basicamente como allochthonous, ou seja, folhas e insetos transportados do entorno terrestre. A suposição ingênua seria que aquele trecho tinha baixa produtividade porque a luz era limitada. A realidade era outra: a produtividade do trecho era alta, mas a base era detrito externo, não produção in situ. Confundir os dois leva a diagnósticos errados sobre poluição, assoreamento ou remoção de mata ciliar. A remedy foi isolar parcelas de entrada e saída de carbono, medir a assimilação de tecidos vegetais por macroinvertebrados e comparar com a taxa de respiração bentrônica. Só assim demos conta de que a cadeia local dependia quase inteiramente do que chegava de fora.
Se você está construindo algo prático a partir desses conceitos, comece definindo a fronteira do ecossistema antes de tentar fechar o balanço energético. Delimite claramente se está considerando apenas produtores in situ ou se inclui aportes externos. Anote os principais grupos consumidores e os decompositores. Meça ou estime a produção primária bruta e a líquida. Lembre-se de que a produção bruta menos a respiração autotrófica dá a líquida, e essa é a energia de fato disponível para os demais níveis. Não pule essa subtração. Dados de campo mal tratados costumam confundir as duas grandezas e gerar números que parecem plausíveis mas não fecham. Para quem precisa de referências rápidas, não recomendo generalizações de site de divulgacao. Procure tratados de ecologia de ecossistemas, revisões sobre fluxo de energia e matéria, e bases de dados de medições de campo com metodologia descrita. Métodos de marcação com isótopos estáveis, como nitrogênio-15 e carbono-13, são úteis para rastrear fontes de energia reais em teias complexas. A precisão aumenta quando combinada com análise de ácidos graxos e estudo de conteúdo estomacal, mas exige laboratório. Se o orçamento é restrito, o caminho mais honesto é aceitar intervalos de confiança largos e deixar claro onde estão as incertezas. Dados incompletos reportados com transparência valem mais do que estimativas confortáveis que ninguém consegue reproduzir.

Galeria
-
ECOLOGIA Introduo Cadeias alimentares Matria e Energia no -

Cadeia Alimentar e Fluxo de Energia 2 Cadeias -
Fluxo de Energia na Cadeia Alimentar | Mundo Ecologia -
Ecologia - Cadeia Alimentar - Ciclos da matéria e fluxo de energia

