Que Tipo De Alimento As Plantas Produzem

O que as plantas realmente produzem como alimento
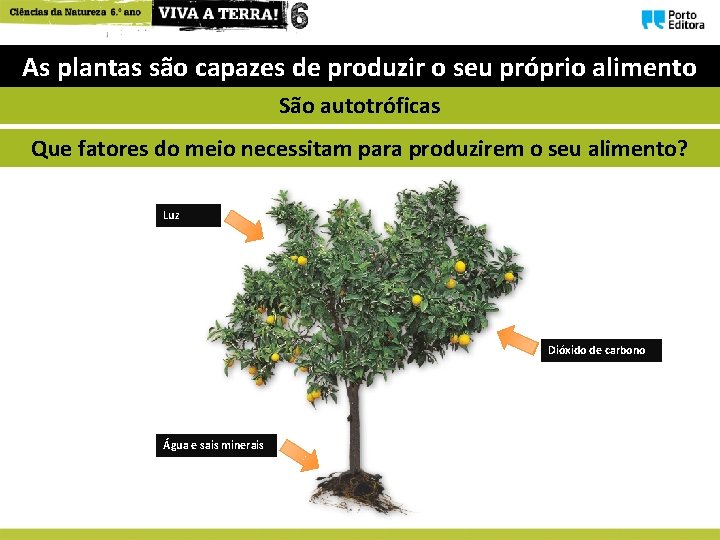
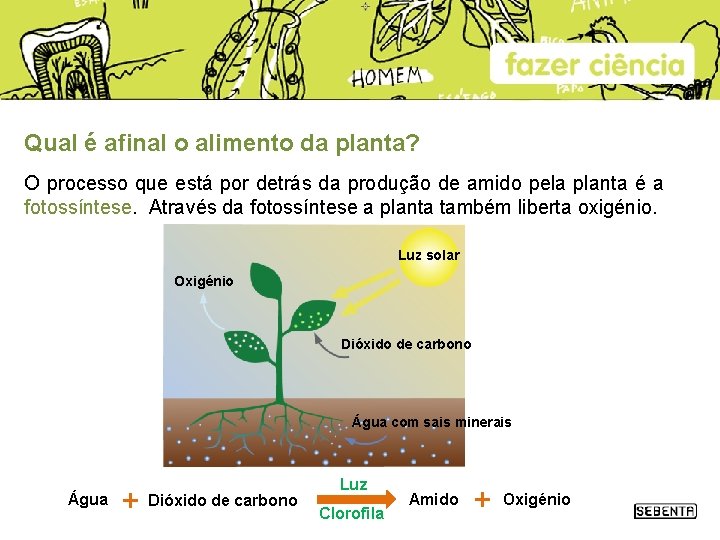
A pergunta sobre que tipo de alimento as plantas produzem parece simples, mas a resposta carrega uma confusão recorrente que vejo todo dia nos fóruns. Muita gente acha que a planta "faz açúcar" do nada, como se tivesse um forno mágico no caule. A realidade é bem mais operacional. Plantas produzem glicose (CHO) por meio da fotossíntese, sim. Mas esse não é o produto final que alguém ia guardar numa prateleira. A glicose é rapidamente convertida em amido para armazenamento de longo prazo ou em celulose para estruturar parede celular. É por isso que batata, mandioca e milho são tão calóricos — eles são basicamente galões de glicose solidificada.
Como funciona na prática: a equação que todo mundo decora e esquece
6CO + 6HO + luz CHO + 6O Essa equação está gravada no seu caderno do ensino médio, mas raramente se entende o que ela significa fora do papel. O dióxido de carbono entra pelas estômatos — aquelas microaberturas na folha que você mal vê a olho nu. A água sobe pela xilema, desde a raiz até o limbo. A luz hitting the chloroplasts excita elétrons na clorofila, e essa energia quebrada em reações de transferência move prótons através da membrana tilacoide. O ATP sintase gira como um motor minúsculo, produzindo ATP e NADPH que vão alimentar o ciclo de Calvin. Esse ciclo fixa o carbono do CO em ribulose-1,5-bisfosfato (RuBP), gerando gliceraldeído-3-fosfato (G3P) que depois vira glicose. O oxigênio que sobra? É subproduto. A planta não "resolveu" liberar O para nós. Ela libera porque o sistema não tem como processar todo aquele elétron sobrando sem estourar os centros de reação. Evolução é pragmatico, não altruista.
O problema que ninguém conta: fotoresspiração e a perda de 25% da produção
Aqui está o detalhe que pula aos iniciantes. Em plantas C3 — que são a maioria, incluindo arroz, trigo e soja — a enzima RuBisCO às vezes confunde O com CO. Quando a temperatura sobe acima de 30°C ou a concentração de CO cai por fechamento estomático (proteção contra dessecação), a RuBisCO oxigena o RuBP em vez de carboná-lo. Isso gera fosfoglicolato, um composto tóxico que precisa ser processado pelo ciclo da fotoresspiração. O custo energético é alto: a planta gasta ATP e libera parte do carbono já fixado de volta como CO. Perda líquida de 20 a 25% da produtividade fotossintética em condições de calor. Eu tive esse problema na minha estufa em 2019. Plantas de tomate C3 começaram a amarelar as bordas das folhas em dias de verão com 38°C. A primeira resposta foi aumentar a adubação nitrogenada, o que só piorou. A raiz do problema era o fechamento estomático por estresse hídrico. A solução? Nebulização de 4 minutos a cada 20 minutos durante as horas quentes, mantendo a umidade relativa acima de 60%. A fotossíntese voltou ao normal em 3 dias. Sem mágica, apenas controle deBoundary conditions.

Plantas C4 e CAM: soluções alternativas que surgiram na evolução
Não todas as plantas enfrentam o mesmo gargalo. Milho, cana-de-açúcar e sorgo são plantas C4 — elas têm um mecanismo de concentração de CO spatialmente separado. A fixação inicial acontece nas células do mesofilo via PEP carboxilase (que não confunde O com CO), gerando oxaloacetato que vira malato. O malato sobe pelas feixes vascular para as células da bainha do feixe, onde o CO é liberado localmente, criando um microambiente com concentração 10x maior que o atmosférico. A RuBisCO nas células da bainha então opera em eficiência máxima, sem fotoresspiração significativa. Plantas suculentas como cactos e orquídeas epífitas usam fotossíntese CAM (Metabolismo Ácido das Crassuláceas). Elas abrem os estômatos à noite, quando a temperatura é menor e a umidade relativa é maior. Fixam CO em malato e armazenam no vacúolo. Durante o dia, com os estômatos fechados, o malato é descarboxilado, liberando CO localmente para o ciclo de Calvin. A vantagem é óbvia em desertos: redução de 90% na perda de água por transpiração comparado a C3 em mesmas condições.
O que as plantas não produzem: mitos que persistem
Primeiro: plantas não "produzem terra". A matéria seca de uma árvore adulta vem 95% do ar (CO) e da água, não do solo. O solo fornece micronutrientes e suporte estrutural, mas não é fonte de carbono. Segundo: plantas não comem luz. A luz é energia, não alimento. Ela bombeia elétrons, mas o carbono que estrutura o tecido veio do ar. Terceiro: plantas não produzem proteínas diretamente. Elas produzem aminoácidos a partir de nitrato absorvido pelo solo mais esqueletos de carbono da fotossíntese. A conversão é enzimática, não mágica. A fotossíntese tem um teto teórico de eficiência quântica de 11-12%, mas na prática ramos agrícolas alcançam 1 a 3% de conversão de energia solar em biomassa. Os gargalos são múltiplos: Luz saturante: Acima de 2000 µmol photons m² s¹, os centros de reação da PSII se sobrecarregam. A planta precisa dissipar o excesso como calor via ciclo das xantofilas. Isso ocorre em cultivos a céu aberto ao meio-dia em latitudes tropicais.
Difusão de CO: A concentração atmosférica de CO é ~420 ppm. Para a RuBisCO atingir meia-saturação, precisaria de ~300 ppm no interior do mesofilo. A resistência difusiva entre o ar e o estômato consome uma fração significativa do gradiente disponível. Temperatura: A Cinética da RuBisCO segue Arrhenius até ~35°C, depois a desnaturação proteica acelera. Em 40°C, a atividade enzimática cai 50% em 2 horas se não houver ajuste fisiológico. Água: Estômatos fechados por déficit de pressão de vapor (VPD) acima de 2,5 kPa bloqueiam entrada de CO tão eficazmente quanto uma tampa dePanela. O custo é perda imediata de fixação de carbono.
Como medir que tipo de alimento as plantas produzem no campo
Para quantificar a produção real, o método padrão é colheita destrutiva: corta-se a planta na raiz, secagem em estufa a 65°C até peso constante, pesagem da matéria seca. A glicose, amido e celulose somam aproximadamente 85-90% da matéria seca vegetal. O resto é proteína, lipídios, lignina e cinzas (minerais). Alternativa não-destrutiva: porômetro de fluxo de seiva. A transpiração acompanha a absorção de CO em razão ~1:1 em mols para a maioria das espécies. Medindo o fluxo de água pelo talo, estima-se a taxa fotossintética líquida com margem de erro de 15-20%. Útil para monitoramento contínuo em estufas. Equipamento de laboratório: analizador de gases infravermelho (LI-6400XT). Mede CO ingressando e saindo da câmara de folha, calcula taxa de assimilção líquida (µmol CO m² s¹). Preço: US$ 25-40 mil. Tempo de setup: 30 minutos por medida. Precisão: ±2% da leitura.
Pitfalls comuns ao interpretar dados de produção
Confundir produtividade primária bruta com líquida. A PPG inclui toda a glicose produzida pela fotossíntese. A PPL subtrai a respiração autotrófica (o que a planta consome para manter metabolismo basal). A diferença pode ser 30-50% em plantas perenes maduras. Relatórios que não especificam qual métrica usam geram comparações inválidas. Ignorar a redistribuição sazonal. Em árvores decíduas, a glicose produzida na primavera é mobilizada para flores e frutos no verão, depois armazenada como amido no outono. Uma medida pontual de "produção de alimento" em outubro mostra baixo índice, mas a planta já acumulou 8 kg de amido no xilema e parênquima da raiz. A temporalidade importa tanto quanto a magnitude. Superestimar contribuição do solo. Fertilizantes nitrogenados aumentam a atividade da RuBisCO (que é 30% proteína) e a síntese de clorofila, mas não fornecem carbono. O aumento de biomassa por adubação nitrogenada em solos já ricos em matéria orgânica é tipicamente 10-20%, não 50% como muitos produtores esperam. O carbono ainda vem do ar.
Quando a fotossíntese falha completamente
Deficiência severa de magnésio bloqueia a síntese de clorofila — o Mg² é o átomo central da molécula. Sintoma: clorose internerval em folhas velhas primeiro (o Mg é móvel na planta). Correção: sulfato de magnésio foliar a 2% em volume, aplicação a cada 7 dias até reverdecimento. Tempo de resposta: 10-14 dias. Foto-inibição crônica em baixas temperaturas (
5°C) com luz intensa quebra o centro de reação D1 do PSII. Comum em estufas com aquecimento insuficiente no inverno. A planta não consegue reparar o dano mais rápido que ele ocorre. Sintoma: branqueamento localizado dos cloroplastos. Solução: sombreamento parcial ou redução do VPD para diminuir demanda fotoquímica. Toxicidade por alumínio em solos pH
5,5 danifica as pontas das raízes, reduzindo absorção de água e nutrientes. A planta fecha estômatos por déficit hídrico interno, interrompendo entrada de CO. Correção: calagem para elevar pH para 6,0-6,5. Efeito demora 3-6 meses para full recovery, dependendo da textura do solo.

A fotossíntese é um processo químico simples em princípios, mas brutalmente complexo em execução. Plantas produzem glicose a partir de CO, água e luz — e convertem essa glicose em tudo que constitui seu corpo. A eficiência é limitada por física, termodinâmica e evolutivo compromissos. Reconhecer esses limites é o que separa manejo empírico de manejo informate.
Galeria
-

Nome Do Alimento Produzido Pelas Plantas - RETOEDU
