Reticulo Endoplasmatico
O que é, na prática, o retículo endoplasmático
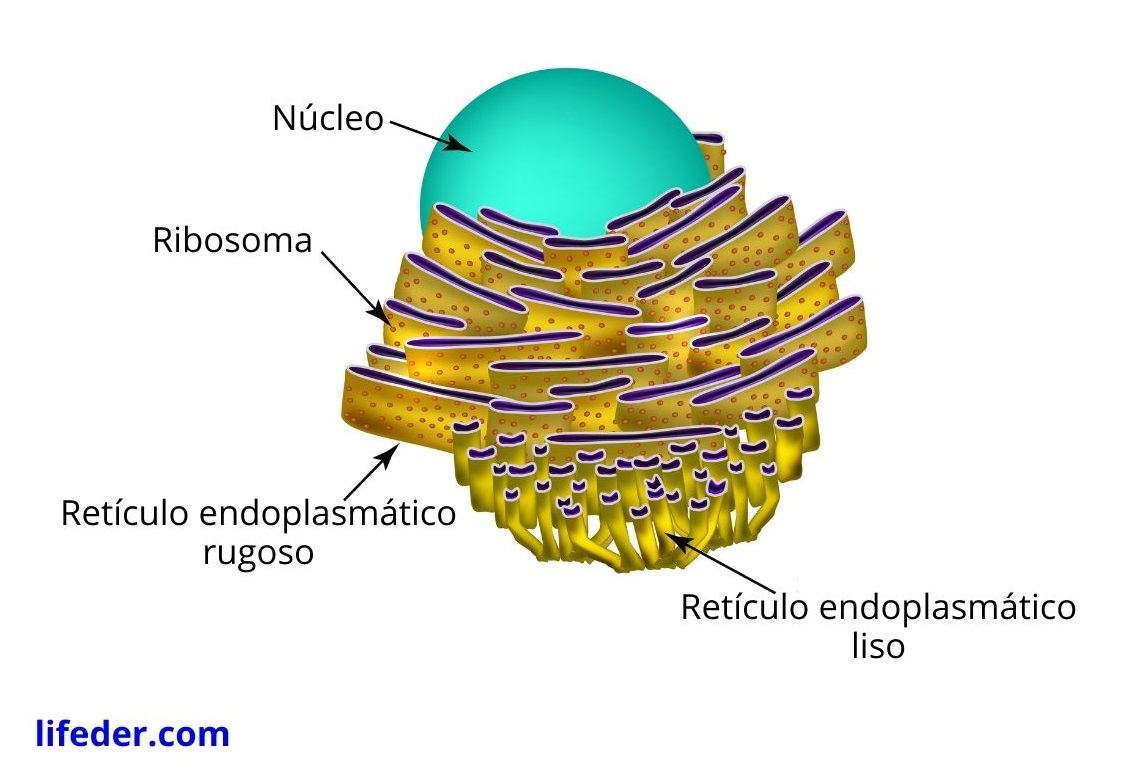
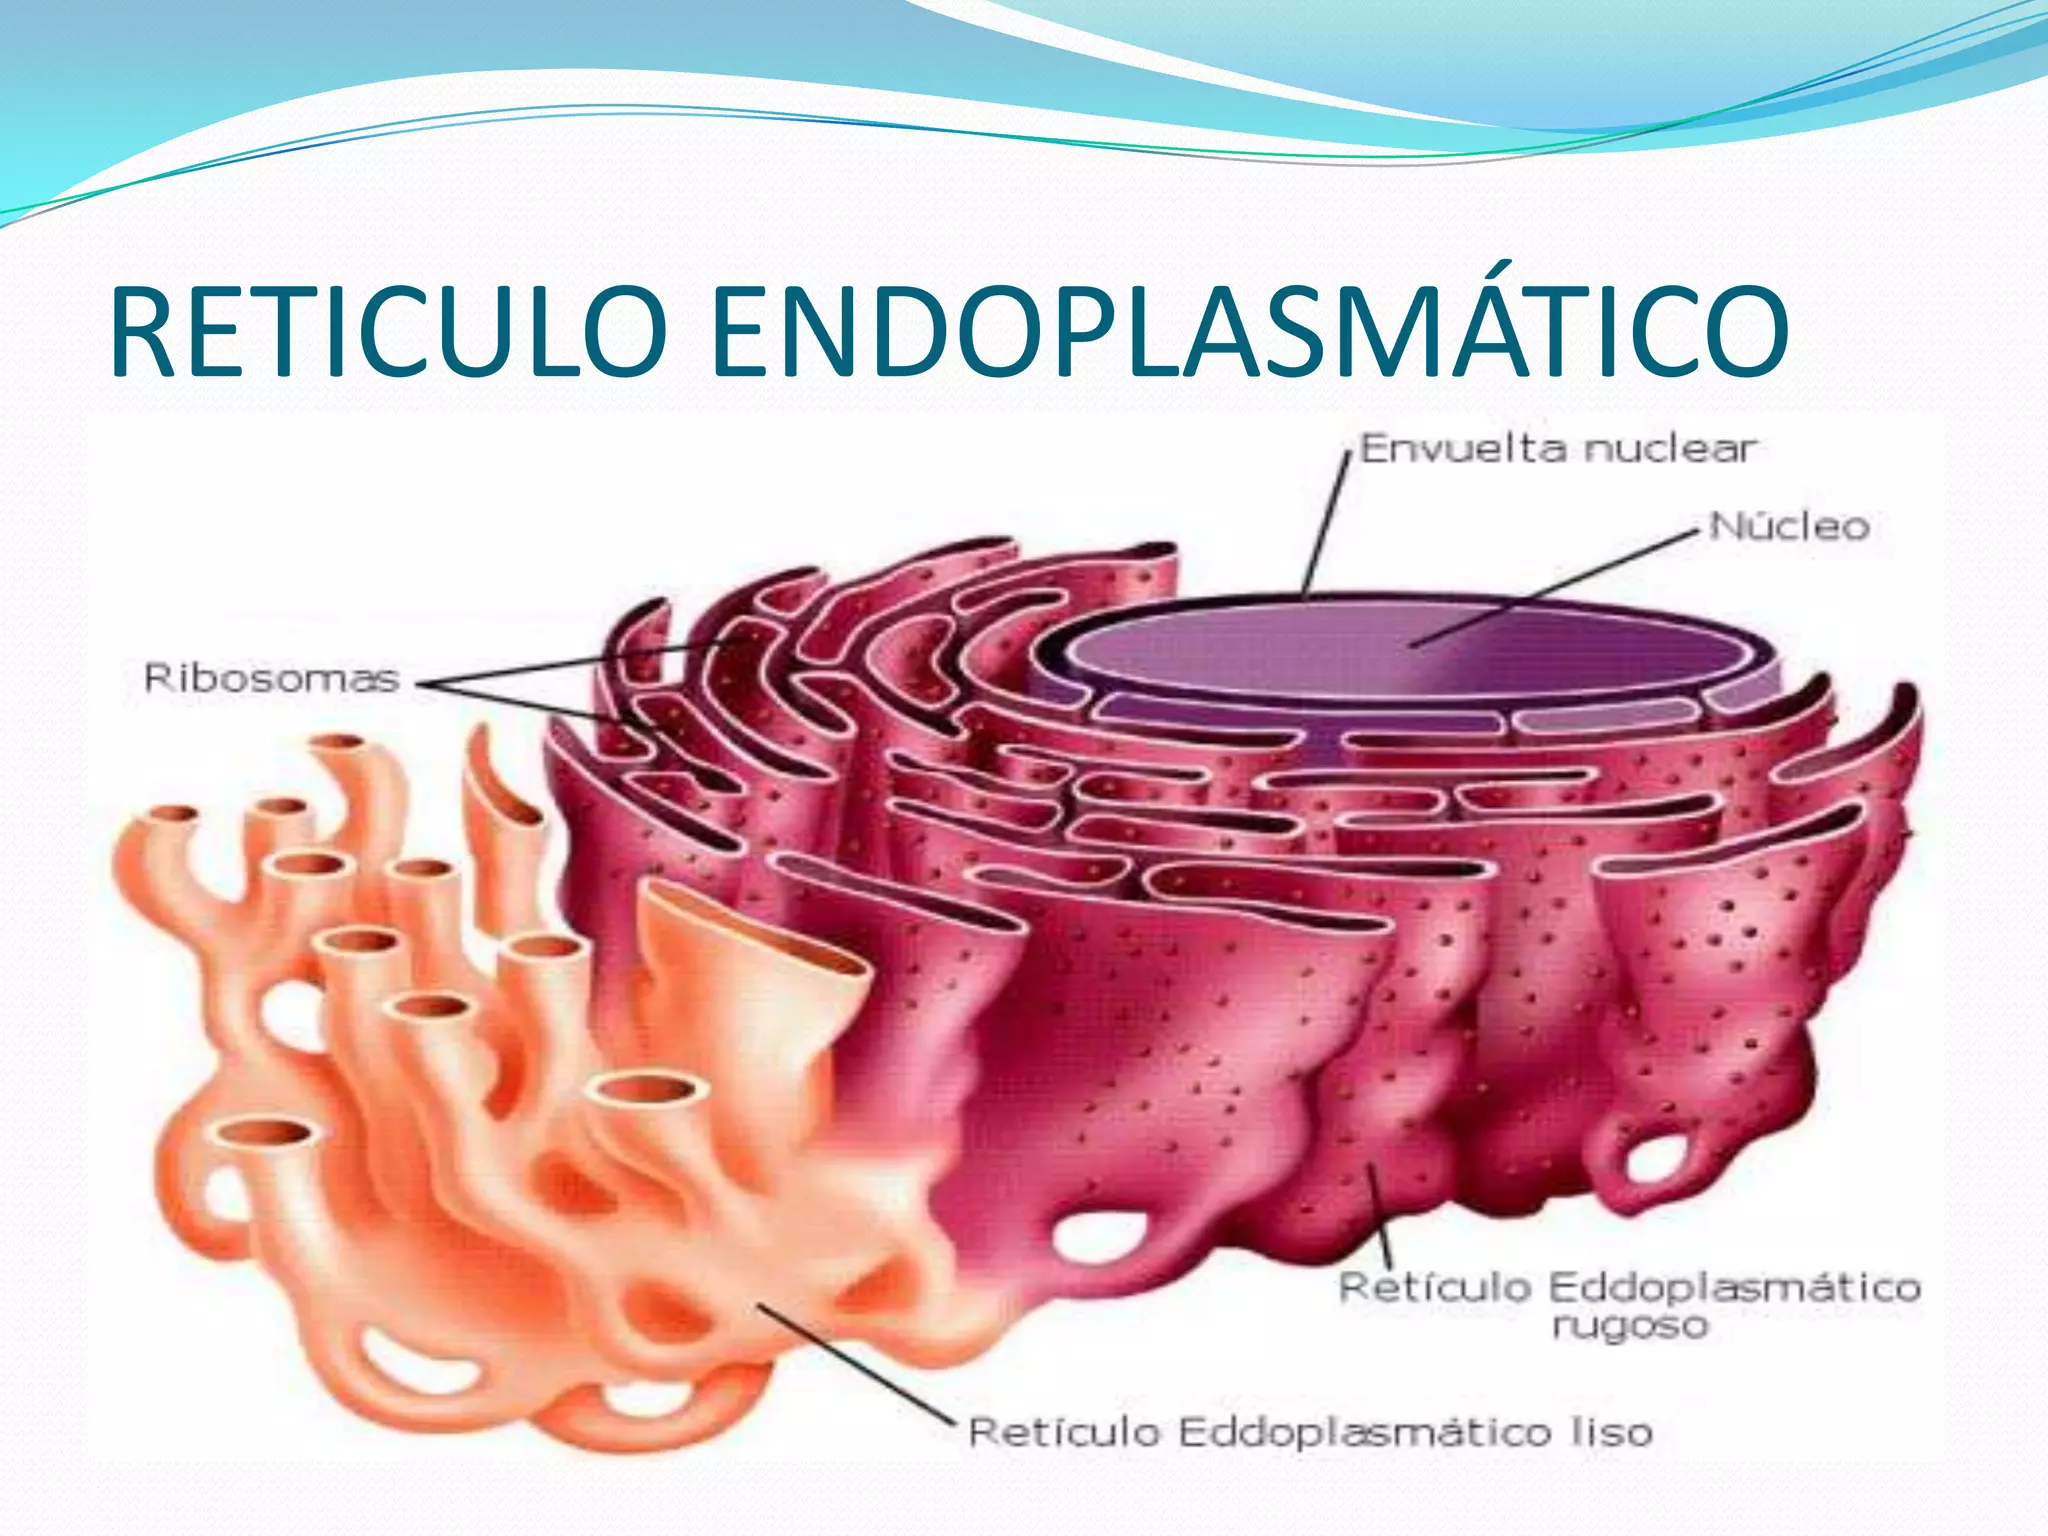
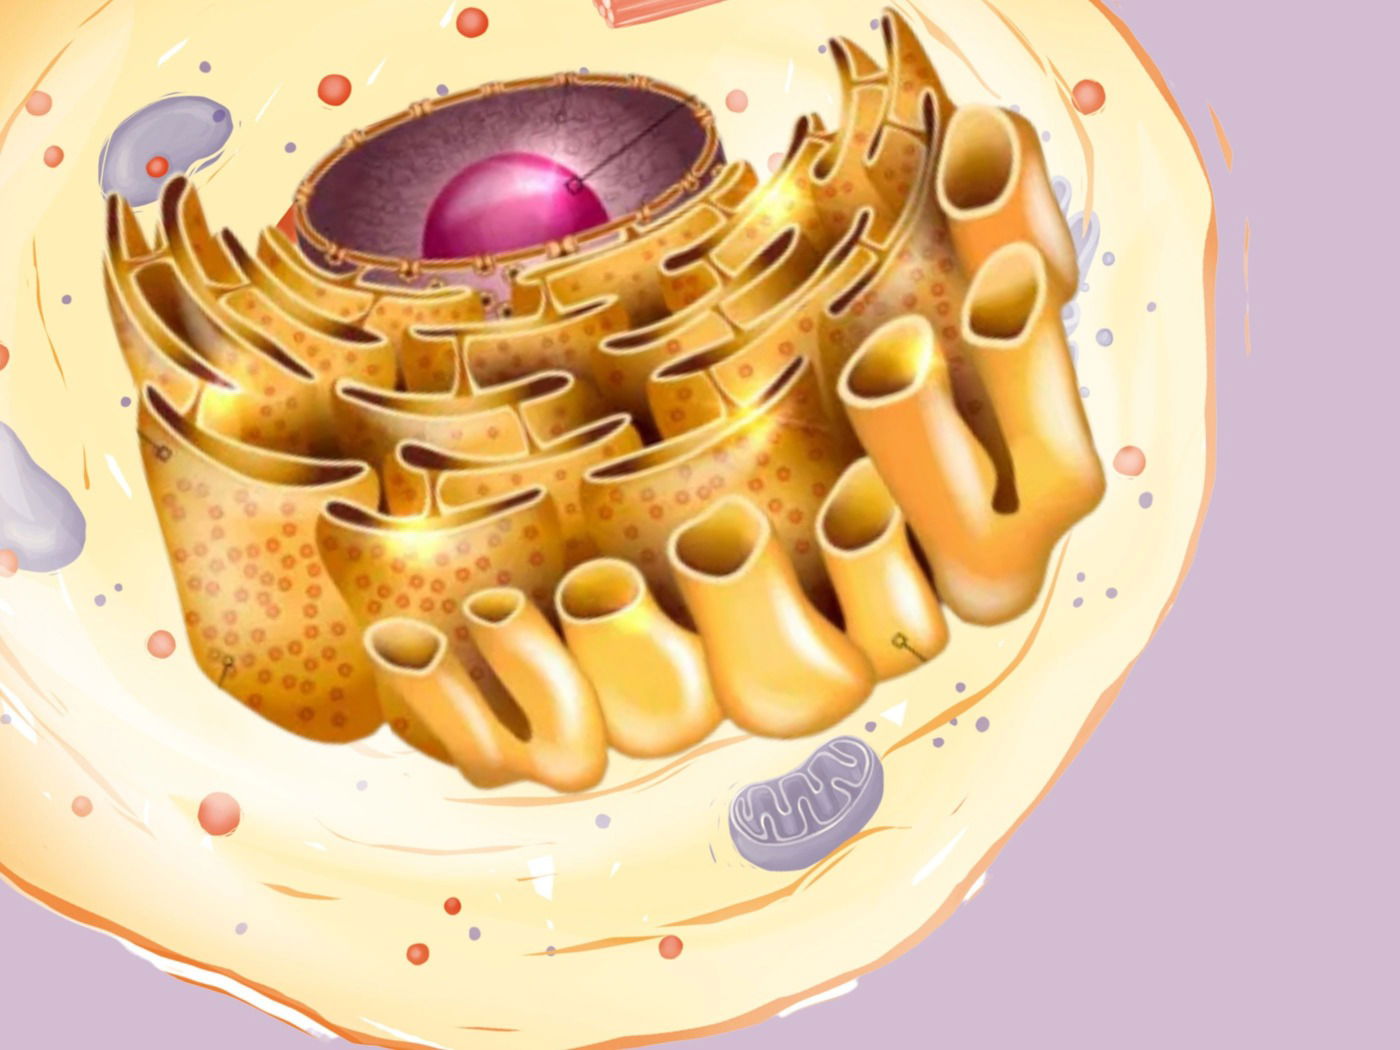
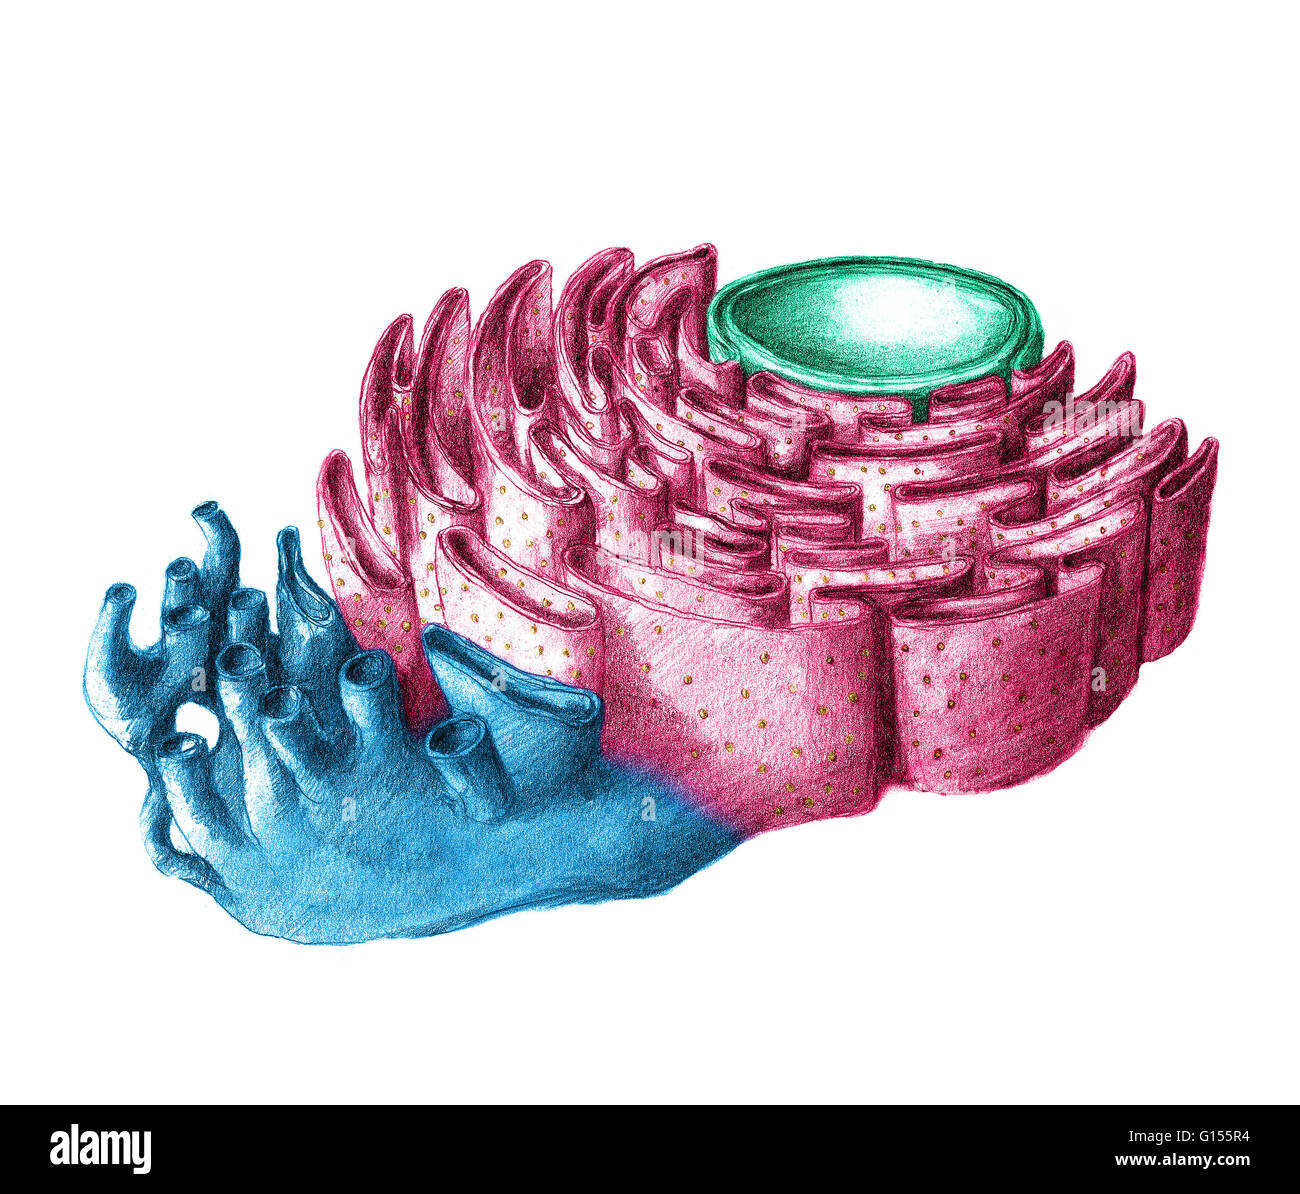
O retículo endoplasmático é um sistema de membranas internas da célula eucariota que se estende pelo citoplasma. Ele funciona como uma rede de tubos e sacos achatados, os chamados cisternas, que se comunicam entre si e com o envoltório nuclear. A membrana do RE separa o lúmen interno do citoplasma, e essa separação é funcionalmente importante porque permite criar ambientes bioquímicos diferentes dentro e fora do organelo. Existem dois tipos principais. O retículo endoplasmático rugoso tem ribossomos aderidos à face citoplasmática da membrana, o que lhe confere uma aparência granulada quando observado ao microscópio eletrônico. O retículo endoplasmático liso não possui ribossomos e aparece como uma rede de túbulos mais regulares. As células não escolhem qual tipo construir por acaso. Elas dependem da demanda metabólica e do tipo celular para definir a proporção entre forma rugosa e forma lisa. A função básica do RE rugoso está ligada à síntese de proteínas que precisam seguir a via secretora ou para organelas do sistema de membranas. A cadeia polipeptídica em crescimento é transmitida diretamente para o lúmen durante a tradução, e ali começa o processo de dobramento. O RE liso, por sua vez, é o principal local de síntese de lipídios, incluindo fosfolipídios e colesterol, além de atuar na desintoxicação de compostos hidrofóbicos e no armazenamento de cálcio intracelular.
Síntese e controle de qualidade do reticulo endoplasmatico
Quando um ribossomo começa a traduzir uma proteína destinada ao RE, o signal recognition particle, ou SRP, reconhece a sequência sinal na extremidade N-terminal da cadeia nascente. Esse reconhecimento paralisa momentaneamente a tradução e direciona o complexo ribossomo-proteína para o receptor de SRP na membrana do RE. A tradução recomeça e o peptídeo é translocado para o lúmen através de um canal proteico chamado translocon, também conhecido como Sec61 em eucariotos. O dobramento não acontece por acaso. Ele depende de chaperonas moleculares como a BiP, que pertence à família Hsp70, e de enzimas que catalisam modificações específicas. A glicosilação N-ligada é um dos marcos iniciais. Uma oligossacarídeo pré-formado, composto por dois resíduos de N-acetilglicosamina, nove manoses e três glicoses, é transferido cooperivamente para um resíduo de asparagina na sequência consenso Asn-X-Ser ou Asn-X-Thr, onde X pode ser qualquer aminoácido exceto prolina. Isso acontece ainda no lúmen do RE, enquanto a proteína está sendo sintetizada. O sistema de controle de qualidade do RE monitora se as proteínas atingiram seu estado nativo. Proteínas mal dobradas ficam retidas no organelo através do sistema de retenção por lectinas, principalmente a calnexina e a calreticulina, que reconhecem estruturas monomanosídicas dos glicanos. Se o dobramento não for concluído dentro de um tempo razoável, a proteína é targeting para degradação via ubiquitinação e exportação citoplasmática para o proteassoma, um processo chamado ERAD, do inglês ER-associated degradation.
Eu já vi laboratórios inteiros perderem semanas acompanhando um problema que se revelava ser uma mutação puntual numa proteína de membrana que causava retenção crônica no RE. A célula entrava em estresse do RE permanente, ativando a via UPR sem resolução. O trabalho de campo mostrava bandas difusas em western blot que ninguém conseguia interpretar corretamente até sequenciar o gene completo e identificar a substituição de um único resíduo de aminoácido que quebrava o domínio de dobramento. A lição prática é que fenômenos de agregação citoplasmática nem sempre vêm do citoplasma.

Diferenças estruturais e funcionais entre as formas
A distinção entre RE rugoso e RE liso não é apenas morfológica. Ela reflete distribuições enzimáticas completamente diferentes. O RE rugoso concentra enzimas de glicosilação, peptidil-prolil cis-trans isomerases, peptidil arginina deiminases e a formação de pontes dissulfeto mediada pela enzima PDI, protein disulfide isomerase. Essas enzimas são essenciais para o dobramento correto de proteínas secretoras e de membrana. O RE liso acumula enzimas do citocromo P450, particularmente a família CYP3A4 em hepatócitos, que oxidam compostos xenobióticos para torná-los mais hidrossolúveis. Também contém a glicose-6-fosfatase, crucial para a gliconeogênese hepática, e enzimas envolvidas na síntese de esteroides nas células da córtex adrenal e nas gônadas. A proporção entre as duas formas varia enormemente entre tecidos. Hepatócitos têm quantidade significativa de RE liso. Células plasmáticas, que produzem grandes volumes de anticorpos, são ricas em RE rugoso. Células do túbulo contorcido proximal do rim também exibem RE liso abundante. Uma questão que gera confusão constante é a ideia de que as duas formas são compartimentos separados e independentes. Na realidade, elas formam um contínuo membranoso. As regiões de RE rugoso se conectam diretamente às regiões de RE liso, e a transição entre uma forma e outra é dinâmica, mudando conforme a necessidade celular. Em condições de estresse, como exposição a agentes desnaturantes ou acúmulo de proteínas mal dobradas, o RE pode se expandir drasticamente, um processo chamado expansão do RE, que envolve aumento tanto da superfície membranosa quanto do volume do lúmen.
Resposta ao estresse do retículo endoplasmático
A célula possui mecanismos de detecção de falhas no dobramento proteico que levam à ativação da respostaunfolded protein response, ou UPR. Três sensores transmembranares no RE monitoram a situação: IRE1, PERK e ATF6. Quando proteínas mal dobradas se acumulam no lúmen, elas se ligam à chaperona BiP, liberando-a dos sensores. Essa dissociação ativa cada via de sinalização de formas distintas. IRE1 possui atividade quinase e endorribonuclease. Quando ativado, processa o mRNA de XBP1, removendo um intron de 26 nucleotídeos que causa um shift de quadro de leitura. A proteína XBP1s resultante é um fator de transcrição potente que upregula genes de chaperonas, componentes do sistema ERAD e enzimas de dobramento. PERK fosforila eIF2alpha, reduzindo globalmente a tradução para diminuir a carga de proteínas entrando no RE. ATF6, por sua vez, é processado por proteases de clivagem e o domínio citoplasmático liberado atua como fator de transcrição. Se o estresse persistir e as tentativas de adaptação falharem, a UPR pode desencadear apoptose. Isso é particularmente relevante em doenças como diabetes tipo 2, onde o estresse crônico do RE em células beta pancreáticas contribui para a perda funcional e morte celular. A relação entre estresse do RE e apoptose também é observada em doenças neurodegenerativas, onde o acúmulo de proteínas mal dobradas sobrecarrega sistematicamente o sistema de controle de qualidade.
Um detalhe prático que muitos passam despercebido: a via PERK é sensível a níveis de glicose intracelular. Em condições de hiperglicemia crônica, como na diabetes não controlada, a via de sinalização do RE fica permanentemente ativada, mesmo na ausência de agressores diretos ao dobramento proteico. Isso significa que o estresse do RE pode ser um biomarcador metabólico, não apenas um indicador de toxicidade direta.
Aplicações e limitações no contexto experimental
Para estudar o retículo endoplasmático em cultura celular, o marcador mais comum é a calnexina ou a BiP, ambas proteínas residentes do RE. A imunofluorescência com anticorpos contra esses marcadores produz um padrão reticular fino que envolve o núcleo. A microscopia eletrônica oferece resolução muito superior, mostrando as cisternas achatadas do RE rugoso e os túbulos do RE liso com clareza muito maior do que a microscopia de fluorescência permite. Um problema frequente em experimentos de fracionamento celular é a contaminação cruzada entre frações. O RE tende a sedimentar junto com outras organelas de densidade similar, como o Golgi e os endossomos precoces. A purificação por gradiente de densidade em sacarose ajuda, mas não resolve completamente. A confirmação por marcadores específicos de cada compartimento é essencial em qualquer protocolo. Eu já perdi dias trabalhando com preparações que pareciam puras por SDS-PAGE, até que uma análise por WB revelou presença significativa de marcadores do Golgi na fração de RE. Outra armadilha comum é a fixação inadequada. Formaldeído a 4% preserva bem a arquitetura geral, mas pode mascarar epítopos para imunomarcações. Para estudos de ultraestrutura fina com microscopia eletrônica, o glutaraldeído é preferível, mas exige secagem crítica para evitar artefatos de contração. A inclusão de lanthanums na preparação para ME pode melhorar o contraste das membranas do RE significativamente.
O uso de inibidores farmacológicos da UPR, como salinosaxol, que bloqueia a atividade da IRE1, tem sido amplamente estudado em modelos de doenças. No entanto, a seleção do inibidor e a janela temporal de tratamento são críticas. Inibição prolongada da UPR leva a morte celular massiva em tecidos com alta demanda secretora, como pâncreas endócrino e fígado. Em ensaios in vitro, doses excessivas de salinosaxol matam células epiteliais renais em menos de 24 horas, um efeito colateral que nem sempre é óbvio em protocolos mal otimizados. A relação do RE com outras organelas também merece atenção. Contatos diretos entre RE e mitocôndria, chamados MAMs, mitochondrial-associated membranes, são regiões onde a transferência de cálcio do RE para a mitocôndria ocorre de forma eficiente. Essa comunicação é vital para a regulação da produção de ATP e para sinais de apoptose. Disrupção dos MAMs está associada a doenças metabólicas e neurodegenerativas, e a estudá-los exige técnicas de super-resolução ou proximidade de labelização que vão além da microscopia convencional.
O reticulo endoplasmatico na homeostase celular
O RE não é apenas uma fábrica de proteínas e lipídios. Ele é um hub de sinalização celular que integra informações sobre o estado metabólico, o estresse oxidativo e a disponibilidade de nutrientes. A concentração de cálcio no lúmen do RE é mantida em torno de centenas de micromolar por bombas ATPases do tipo SERCA, enquanto o citoplasma mantém níveis na faixa de nanomolar em repouso. Essa diferença de gradiente é a base para sinais de cálcio que regulam desde a contração muscular até a expressão gênica. A homeostase do RE depende de um equilíbrio delicado entre síntese, dobramento e degradação. Quando esse equilíbrio se desfaz, consequências sistêmicas surgem rapidamente. Em doenças como a fibrose cística, a mutação DeltaF508 na proteína CFTR causa má dobramento que leva à retenção no RE e degradação via ERAD, impedindo que a proteína chegue à membrana plasmática onde exerceria sua função de canal de cloreto. O tratamento com corretores de dobramento, como a lumacaftor, tenta contornar esse defeito, mas a eficácia varia conforme o tipo de mutação e o tecido envolvido. A capacidade do RE de responder a diferentes tipos de estresse também depende do contexto celular. Células com alta taxa proliferativa, como células-tronco e células tumorais, possuem RE expandido e atividade aumentada da UPR. A reprogramação metabólica em câncer frequentemente envolve upregulação de chaperonas do RE e componentes do sistema ERAD, criando uma dependência que pode ser explorada terapeuticamente. Inibidores de PDI e de componentes do proteassoma estão em investigação clínica para vários tipos de tumor.
O conhecimento atual sobre o retículo endoplasmático continua evoluindo rapidamente. Novos componentes do sistema de dobramento são identificados regularmente, e a relação entre estresse do RE e envelhecimento celular tem ganhado destaque na literatura. A complexidade do organelo supera definições simplificadas, e a prática experimental mostra que detalhes metodológicos fazem diferença real nos resultados obtidos.
Galeria
-

Retículo Endoplasmático - Cola da Web -
Reticulo Endoplasmatico De Uma Celula
