Alimentação Dos Seres Vivos

O que todo mundo esquece sobre nutrição biológica
A maioria dos materiais didáticos começa explicando autotrofismo e heterotrofismo como se fossem categorias estanques, mas na prática as fronteiras são muito mais borradas. Organismos como a Euglena gracilis, por exemplo, conseguem fazer fotossíntese quando há luz disponível, mas em condições de escuridão absoluta passam a absorver compostos orgânicos do meio. Isso não é uma exceção rara — é um traço frequente em protistas e em certas plantas carnívoras que também realizam fotossíntese. O modelo tradicional de "produtores vs consumidores" funciona para ensino básico, mas não descreve corretamente o que acontece na natureza. Outro ponto que quase ninguém aborda com a devida crueza é a eficiência de conversão energética entre níveis tróficos. A regra dos 10% é uma média grosseira. Em ecossistemas aquáticos, a eficiência pode chegar a 20% em cadenas curtas, enquanto em sistemas terrestres com herbívoros de grande porte a eficiência real de assimilação de celulose frequentemente fica abaixo de 5%. A diferença está na capacidade enzimática do trato digestivo e no tempo de retenção do alimento. Ruminantes têm câmaras de fermentação com microbiota especializada que permitem extrair muito mais energia da mesma biomassa vegetal do que um herbívoro simples, como um coelho, que recorre à cecotrofia — ou seja, come suas próprias fezes para passar pelo trato digestivo duas vezes. É nojento? Sim. Funciona? Perfeitamente.
Alimentação dos seres vivos: os mecanismos que realmente importam
A digestão pode ser intracelular ou extracelular, e essa distinção parece meramente técnica, mas carrega implicações enormes para o tamanho e a complexidade do organismo. Organismos unicelulares como amebas realizam fagocitose — engolfam partículas inteiras em vacúolos digestivos onde enzimas hidrolíticas quebram as macromoléculas. O limite de tamanho imposto por esse mecanismo é físico: a relação superfície-volume impede que uma célula muito grande dependa exclusivamente de digestão intracelular para suprir suas necessidades metabólicas. Daí a necessidade evolutiva de sistemas digestórios completos com entradas e saídas separadas. O que pouca gente considera é que a composição química do alimento determina diretamente qual conjunto de enzimas precisa ser expresso, e isso gera um custo metabólico que raramente é quantificado. Quando um animal onívoro como um porco muda abruptamente de uma dieta baseada em raízes para uma baseada em proteína animal, o pâncreas leva aproximadamente 48 a 72 horas para ajustar a secreção de lipases em detrimento de amilases. Nesse período, a eficiência digestória cai sensivelmente e parte do alimento passa a ser excretada sem aproveitamento. Animais especialistas, como os pandas-vermelhos que evoluíram para depender quase exclusivamente de bambu, não têm essa flexibilidade — seu trato digestório está otimizado para um tipo de alimento e a mudança causa desnutrição rápida. Na prática de campo, a medição do consumo alimentar em animais selvagens é notoriamente problemática. Já fiquei observando grupiões (Epinemus aphrodís) em recifes de coral tentando estimar a taxa de ingestão de ouriços-do-mar através de máscaras de snorkel. O problema é que esses peixes comem em rajadas curtas e se movem rapidamente entre as ramas do ouriço, o que torna a contagem visual imprecisa. A solução que funcionou foi marcar individualmente os peixes com etiquetas visualmente distintas e cronometrar o tempo entre as visitas, cruzando com a biomassa média de tecido removido por visita em capturas de controle. Os números finais mostraram que cada grupoião consumia entre 8% e 15% da biomassa corporal de ouriço por dia, variando conforme a estação e a disponibilidade de algas competidoras.
Armazenamento de energia e as estratégias que ninguém explica direito
Plantas armazenam energia principalmente na forma de amido, enquanto animais usam glicogênio e lipídios. A razão pela qual os lipídios são o armazenamento preferencial em animais é puramente matemática: gordura fornece cerca de 9 kcal por grama, contra 4 kcal por grama de carboidrato ou proteína. Para um migrante como o salmão, que precisa carregar reservas suficientes para percorrer milhares de quilômetros contracorrente, essa diferença é a razão entre chegar ao desova e apodrecer no caminho. Animais que migram longas distâncias concentram tipicamente entre 30% e 45% de sua massa corporal em lipídios antes da partida. Um detalhe técnico que os manuais não enfatizam é a mobilização diferencial desses estoques. O glicogênio hepático é mobilizado rapidamente pela gliconeogênese e serve para manter a glicemia em curtos períodos de jejum — algo como 12 a 24 horas em mamíferos de pequeno porte, dependendo da taxa metabólica basal. Já os triglicerídeos adiposos exigem lipólise, transporte de ácidos graxos livres pela corrente sanguínea ligados à albumina, e beta-oxidação mitocondrial. Esse processo é mais lento mas muito mais eficiente em termos de energia por molécula. A transição de um metabolismo predominantemente glicolítico para um estado cetogênico, onde o cérebro começa a usar corpos cetônicos em vez de glicose, leva cerca de 2 a 3 dias de restrição calórica severa. Durante essa janela de adaptação, a performance cognitiva e física cai significativamente — o que explica a fadiga e a irritabilidade reportadas por pessoas em dietas de restrição extrema. A simbiose digestiva é outro aspecto subestimado. O cupim não digere madeira porque possui enzimas próprias para celulose, mas porque abriga protozoários flagelados no seu intestino que produzem celulases. Sem esses simbiontes, o cupim morre de inanição mesmo com acesso ilimitado a madeira. A mesma lógica se aplica ao gado: o boi não produz celulase, mas o seu rúmen abriga bactérias e arqueias que fermentam a celulose em ácidos graxos de cadeia curta, que são então absorvidos e utilizados como fonte primária de energia. Remover esses microrganismos do sistema digestório de um ruminante por antibióticos de amplo espectro colapsa a digestão em questão de horas. Já vi veterinários corrigirem isso administrando conteúdo ruminal de animais saudáveis para reforestrear o trato de indivíduos debilitados — basicamente um transplante de microbiota feito com o que o próprio animal produz.
Erros comuns e onde os modelos falham
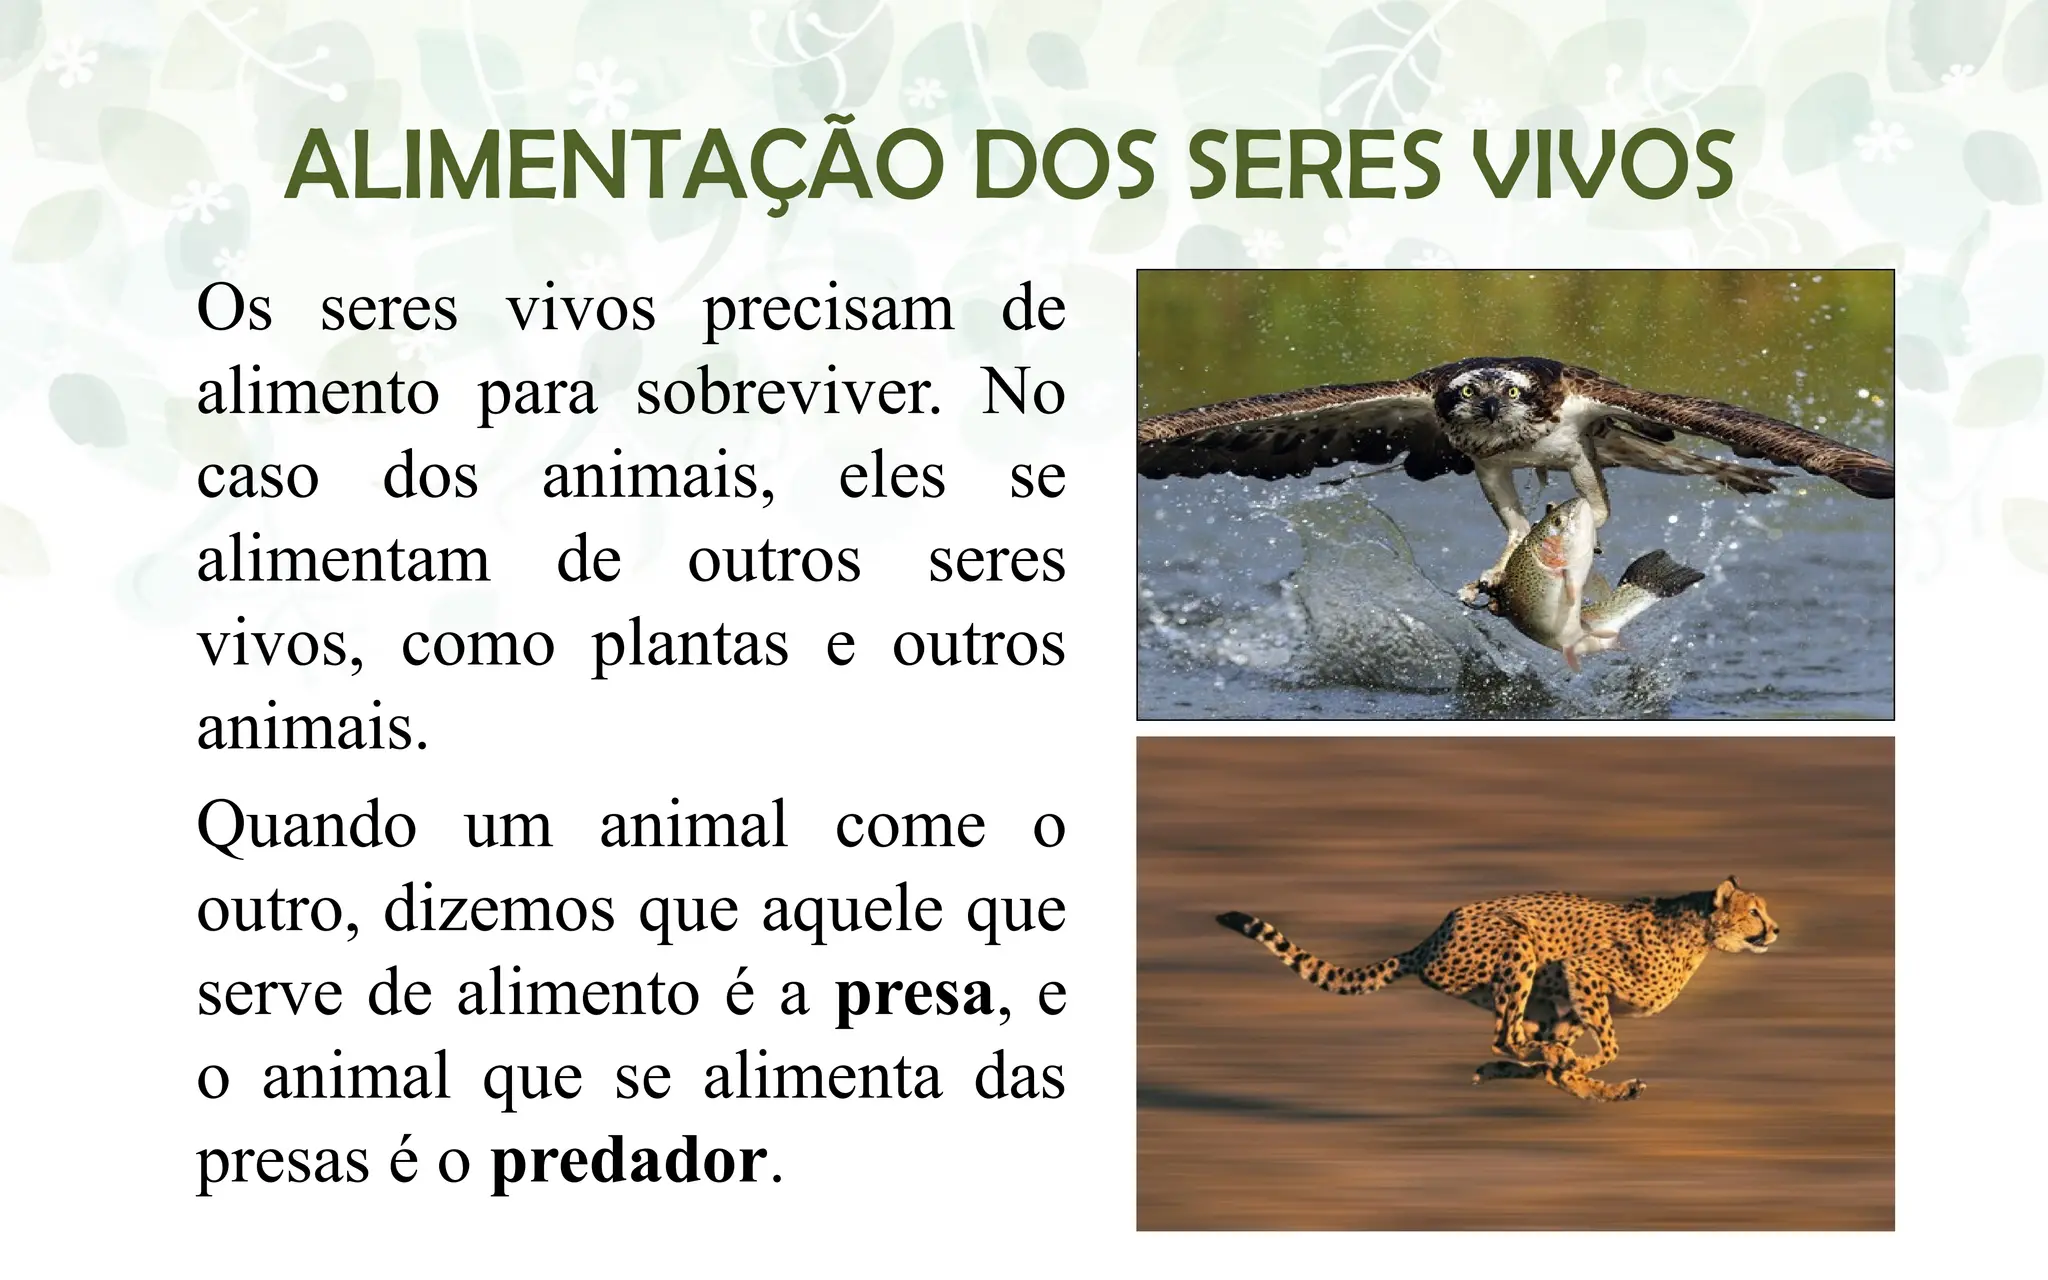
Um erro frequente em estudos ecológicos é assumir que a cadeia alimentar descrita em livros representa a realidade trófica de um ecossistema. Na verdade, a rede alimentar é exponencialmente mais complexa. Um único herbívoro pode se alimentar de dezenas de espécies vegetais diferentes, e cada uma dessas plantas pode ser consumida por múltiplos herbívoros. Isótopos estáveis de carbono e nitrogênio (13C e 15N) permitem rastrear a origem dos nutrientes com bastante precisão, mas o custo de análise é alto e a resolução temporal é limitada a semanas ou meses, dependendo da taxa de turnover tecidual. A polifagia em insetos pragas agrícolas é particularmente problemática porque muitas espécies generalistas conseguem romper barreiras de defesa química das plantas através de mecanismos de desintoxicação enzimática. A citocromo P450, por exemplo, é uma família de enzimas que metaboliza uma ampla gama de compostos xenobióticos, incluindo inseticidas. A exposição repetida a baixas doses seleciona populações com expressão aumentada dessas enzimas, tornando o controle químico progressivamente ineficaz. Em casos documentados de bicudinho-do-cafeeiro (Hypothenemus hampei), a resistência a piretroides surgiu em menos de cinco gerações em plantações que aplicavam o inseticida a cada 15 dias. O manejo integrado nessa situação exige alternância de modos de ação e uso de barreiras físicas, pois a resistência cruzada entre classes de inseticidas é frequente. Em termos de alimentação dos seres vivos, o que separa uma compreensão funcional de uma compreensão memorizada é entender que cada organismo opera dentro de restrições biofísicas inescapáveis. A termodinâmica não negocia. Um predador de topo nunca terá acesso a mais do que uma fração da energia solar originalmente fixada pelos produtores, simplesmente porque cada transferência entre níveis tróficos desperdiça energia como calor e material não assimilável. A pirâmide ecológica não é umametáfora — é uma consequência direta da segunda lei da termodinâmica aplicada a sistemas biológicos.
O que eu vejo mais acontecendo na prática é gente tentando forçar modelos simplistas sobre sistemas complexos. Recomendações nutricionais baseadas exclusivamente em composição química do alimento ignoram a biodisponibilidade, que por sua vez depende da matriz alimentar, da presença de inibidores enzimáticos, do estado fisiológico do indivíduo e da microbiota associada. Ferro heme de origem animal tem biodisponibilidade de 15% a 35%, enquanto ferro não-heme de plantas varia de 2% a 20%, sendo fortemente influenciado pela presença de fitatos e polifenóis que quelam o mineral e impedem a absorção. Suplementar ferro de fonte vegetal sem considerar esses fatores é praticamente jogar dinheiro fora.
Galeria
-
AULA DE CIÊNCIAS SOBRE ALIMENTAÇAO DOS SERES VIVOS | PPTX -
Alimentação dos seres vivos by Viviane Scherer -
Alimentação dos Seres Vivos | PDF -
Alimentação dos Seres Vivos by Ruan Barbosa on Prezi

