As Organelas Realizam Diferentes Funções No Interior Da Célula

Organelas celulares: o que realmente acontece lá dentro
Quando você estuda biologia celular pela primeira vez, organiza tudo em categorias bonitinhas: mitocôndria faz energia, ribossomo faz proteína, lisossomo faz digestão. Na prática, a coisa é bem mais confusa. As organelas não trabalham isoladas e muitas vezes uma única estrutura participa de processos que você nem imaginava que estivessem conectados. O retículo endoplasmático rugoso, por exemplo, não é apenas uma fábrica de proteínas. Ele também regula o cálcio citoplasmático de forma ativa, e quando esse mecanismo falha em células beta do pâncreas, o resultado pode ser disfunção metabólica grave. Eu passei semanas tentando reproduzir um fenômeno de estresse do RE em cultura de hepatócitos e descobri que o protocolo padrão de tunicamicina não funcionava porque a concentração de soro no meio alterava a internalização do droga de maneira imprevisível. Reduzi o soro para 0,5% e consegui resposta consistente, mas aí as células começaram a entrar em apoptose espontânea sem tratamento. Achei que era o fármaco até eu verificar que o próprio reduzimento de soro já era um indutor de estresse do RE por si só.
Como as organelas realizam diferentes funções no interior da célula
A resposta curta é que cada organela mantém um ambiente bioquímico distinto, com pH, concentração iônica e conjunto de enzimas próprios. Isso permite que reações incompatíveis ocorram simultaneamente no mesmo citoplasma sem interferência mútua. O lisossomo opera em pH próximo de 4,8 devido à bomba V-ATPase em sua membrana, enquanto o citosol mantém pH ao redor de 7,2. Sem essa compartimentalização, as proteases lisossômicas degradariam proteínas citosólicas em minutos. Mas a verdade é que os limites entre organelas são mais fluidos do que os livros mostram. Existem contatos membranares diretos entre o retículo endoplasmático e os mitocôndrios chamados MAMs (mitochondria-associated membranes) que transferem cálcio, lipídios e sinalizadores diretamente, sem necessidade de vesículas. Em condições normais, essa comunicação ajusta a produção de ATP e a síntese de fosfolipídios. Em condições de estresse, esses contatos podem aumentar drasticamente e desencadear apoptose via liberação de citocromo c. A cadeia respiratória mitocondrial segue o princípio de que complexos I a IV estão organizados em supercomplexos chamados respirassomos, não como entidades isoladas. Isso otimiza o fluxo de elétrons e reduz a geração de espécies reativas de oxigênio. A descoberta de que os respirassomos variam em composição dependendo do tipo celular e do estado metabólico mudou bastante a forma como entendemos doenças mitocondriais. Um paciente com deficiência no complexo I pode apresentar sintomas completamente diferentes dependendo de quantos respirassomos intactos ele ainda mantém nas fibras musculares versus neurônios.
O aparelho de Golgi funciona como um centro de triagem e modificação pós-traducional. Glicosilações começam no RE e são refinadas no Golgi, mas o padrão final de glicanos determina o destino da proteína: se vai para a superfície celular, para secretão, ou para o lisossomo. A adição de manose-6-fosfato no Golgi é o marcador que direciona enzimas hidrolíticas para o lisossomo. Se esse marcador falha, as enzimas são secretadas para fora da célula em vez de permanecerem no compartimento digestório, e o lisossomo fica vazio enquanto substratos se acumulam. Os peroxissomos merecem atenção separada porque realizam reações de oxidação que produzem peróxido de hidrogênio, um subproduto tóxico que a catalase converte imediatamente em água e oxigênio. Eles também são essenciais para a síntese de plasmalogênios, lipídios estruturais fundamentais para a mielina do sistema nervoso. Deficiências na biogênese de peroxissomos causam adrenoleucodistrofia, uma condição grave. O tratamento com ácidos graxos ómega-3 pode retardar a progressão, mas não reverte o dano já estabelecido. Um detalhe que poucos mencionam: o núcleo também é uma organela funcional, não apenas um repositório de DNA. A laminina nuclear, que forma a rede estrutural sob a envoltória nuclear, interage com cromatina e regula a expressão gênica mecanicamente. Células em tecidos sujeitos a pressão mecânica, como músculo esquelético e endotélio vascular, têm lamininas mais densas e padrões de expressão gênica diferentes das células em tecidos moles. Danos na laminina A/C causam distrofia muscular progressiva e cardiomiopatia, mostrando que a arquitetura nuclear é tão importante quanto o conteúdo genético.
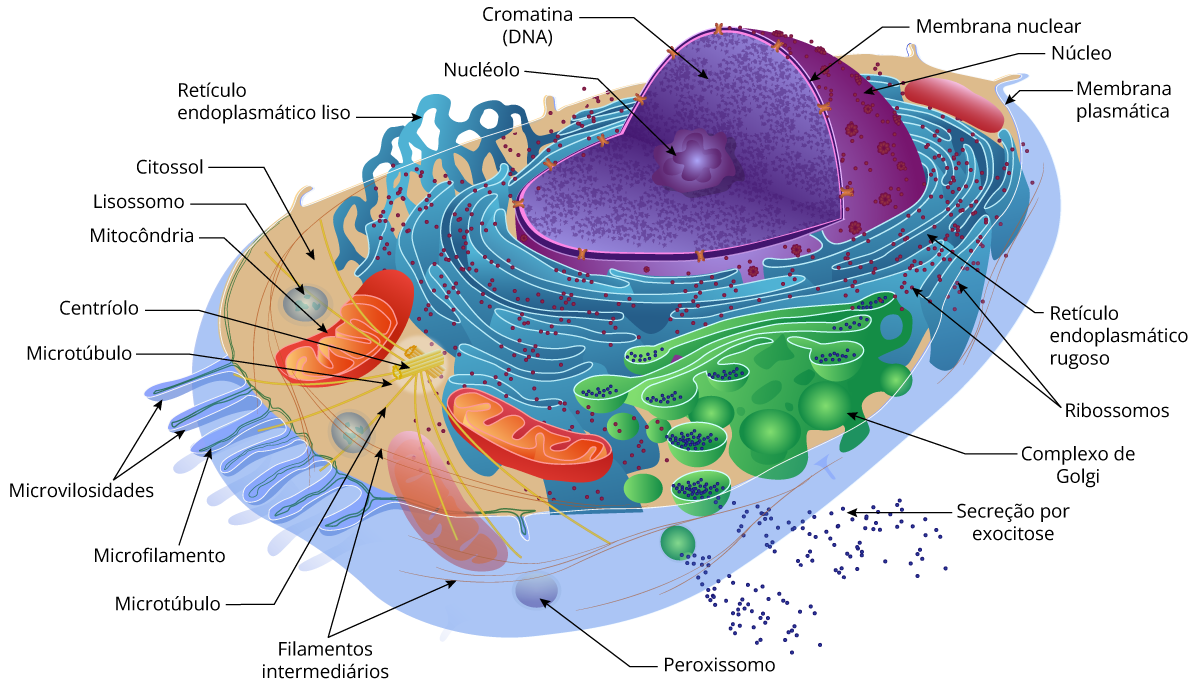
A autofagia é o processo que mais desafia a ideia de organelas estáticas. Ela envolve a formação de fagóforos a partir de memórias do RE, fusão com endossomos tardios para formar autofagossomos, e depois fusão com lisossomos para degradação. Esse processo é seletivo: mitofagia remove mitocôndrias danificadas, pexofagia remove peroxissomos, e eradictofagia remove fragmentos de RE. Cada via usa receptores específicos como FUNDC1 para mitocôndrias ou NBR1 para peroxissomos. O problema é que esses receptores competem por ligantes e reguladores comuns, então a sobrecarga de um tipo de autofagia pode comprometer os outros. Na prática laboratorial, se você quer estudar organelas isoladamente, o fracionamento diferencial ainda é o método padrão, mas ele tem limitações sérias. Mitocôndrias frequentemente carregam contaminação de peroxissomos e fragmentos de RE porque os tamanhos e densidades são muito semelhantes. O que eu faço agora é usar marcadores fluorescentes para cada organela e confirmar pureza por Western blot antes de qualquer ensaio bioquímico. Leva mais tempo no início, mas evita conclusões erradas que exigem refazer experimentos semanas depois. A sinalização intracelular também atravessa organelas de maneira não óbvia. A via mTOR regula crescimento celular e é ativada por aminoácidos no citosol, mas também recebe sinais do interior dos lisossomos através da proteína Rag GTPase. Quando os lisossomos estão cheios de nutrientes, eles recrutam Rag GTPases para sua superfície e ativam mTORC1. Se você bloquear a acidificação lisossomal com bafilomicina A1, toda a sinalização de nutrientes para mTOR cai, independentemente da concentração de aminoácidos no citosol. Esse é um dos mecanismos que explica por que inibidores de bombas de prótons podem afetar resposta tumoral a terapias dirigidas a mTOR.
O citoesqueleto não é apenas uma estrutura de suporte passivo. Microtúbulos e filamentos de actina dirigem o tráfego de vesículas entre organelas, e motores moleculares como cinesinas e dineínas dependem de modificações pós-traducionais nos microtúbulos para escolher rotas específicas. Acetilação de tubulina em microtúbulos estáveis favorece transporte de longa distância, enquanto diltamina em microtúbulos dinâmicos favorece movimento local. Drogas que alteram a dinâmica de microtúbulos, como taxol e vinca alcaloides, afetam não apenas a divisão celular mas todo o tráfego intracelular, o que explica muitos efeitos colaterais neurotóxicos desses quimioterápicos. Uma coisa que aprendi na marra: a forma como você prepara a amostra determina o que você vê. Fixação com formaldeído preserva estrutura mas pode mascarar epítopos e alterar distribuição de lipídios. Fixação com glutaraldeído preserva melhor mas torna a amostra muito mais difícil de infiltrar para corte fino em microscopia eletrônica. Criofixação resolve muitos desses problemas mas exige equipamento caro e a janela de tempo para vitrificação é de segundos. Se não tiver acesso a criomicroscopia, use fixação dupla: formaldeído primeiro para crosslinking rápido, depois glutaraldeído em concentração baixa para estabilização. O resultado não é perfeito mas é aceitável para a maioria das análises morfológicas. A comunicação entre retículo endoplasmático liso e rugoso também é mais integrada do que se pensa. Proteínas sintetizadas no RE rugoso precisam passar por dobramento correto, e chaperonas como BiP e calnexina monitoram esse processo. Se o dobramento falha, a proteína é retida no RE e degradada via proteassomo através de um processo chamado ERAD. Mas parte dessas proteínas Retidas também desencadeiam a resposta UPR (unfolded protein response), que altera globalmente a expressão gênica para aumentar a capacidade de dobramento do RE. Quando a UPR não resolve, ela ativa apoptose via CHOP e caspase-12. Células cancerosas exploram esse mecanismo mantendo a UPR parcialmente ativada para sobreviver em condições de hipóxia e estresse nutricional.
O sistema endomembranar como um todo funciona por correspondência de marcas de endereçamento vesicular. Proteínas SNARE na membrana vesicular reconhecem SNAREs na membrana-alvo, e Rab GTPases regulam o docking inicial. Cada organela tem um conjunto distinto de Rabs: Rab5 em endossomos precoces, Rab7 em tardios, Rab1 no transporte RE-Golgi. Trocar Rabes experimentalmente redireciona tráfego vesicular para destinos errados. Já vi gente publicar dados de localização proteica sem verificar o perfil de Rabes da linhagem celular, e depois não conseguiram reproduzir em outra linhagem porque os perfis de Rab eram diferentes. A importância de manter registros detalhados de cada etapa do protocolo é algo que você descobre tarde demais. Anote concentração exata de cada reagente, lote, temperatura de armazenamento, tempo desde a abertura do frasco. Mitocondrias isoladas de um mesmo tecido podem ter rendimento e integridade muito diferentes dependendo de quanto tempo o animal ficou anestesiado antes da necropsia. Ischemia prévia altera o potencial de membrana mitocondrial e compromete a capacidade de acoplamento oxidativo, mesmo que a morfologia pareça normal por microscopia.

Galeria
-
Funções das Organelas Celulares | PDF | Mitocôndria | Célula (Biologia) -
As Organelas Celulares | PDF | Retículo endoplasmático | Célula (Biologia) -

Função das organelas celulares | Organelas e suas funções, Organelas ...


