Cloroplastos E Mitocôndrias
Entendendo cloroplastos e mitocôndrias na prática
O que você precisa saber sobre cloroplastos e mitocôndrias
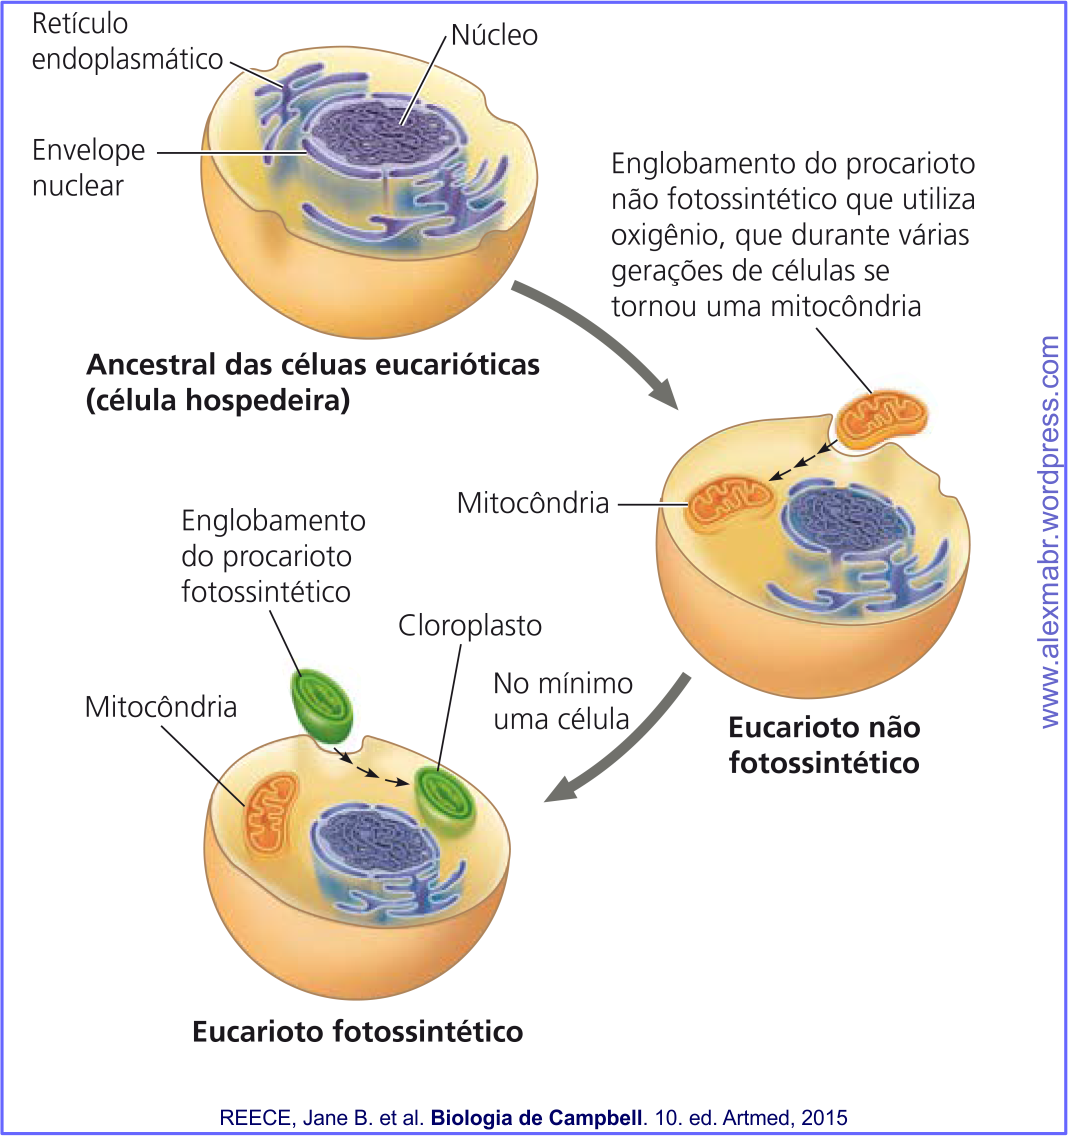
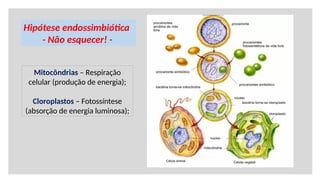
Ao contrário do que muitos livros didáticos passam, essas organelas não são simples "usinas de energia" genéricas. Cada uma tem um mecanismo operacional que depende criticamente do contexto celular e do tipo de célula em que se encontra. Se você está estudando isso para uma prova ou tentando aplicar o conhecimento em pesquisa, precisa ir além da definição de superfície. A teoria endossimbiótica ainda é o pilar explicativo, mas os detalhes práticos costumam ser ignorados. Ambas as organelas possuem DNA circular próprio, ribossomos do tipo 70S — idênticos aos bacterianos — e se reproduzem por fissão binária independentemente do ciclo celular. Isso significa que você pode ter variações no número de cópias de DNA mitocondrial ou cloroplastídico dentro de uma única célula, e isso tem implicações reais quando você trabalha com técnicas como PCR de DNA genômico. No meu caso, num projeto de biologia molecular que envolvia isolamento de DNA de tecidos vegetais com alta concentração de plastos, o problema foi específico: o DNA cloroplastídico contaminava consistentemente a preparação, gerando amplificação cruzada com primers projetados para o DNA nuclear. A solução que funcionou foi uma centrifugação diferencial mais rigorosa — dois passos de 800g por 10 minutos para remover restos celulares e cloroplastos inteiros antes da lise final, em vez do protocolo padrão de uma única centrifugação a 500g. Isso reduziu a contaminação cloroplastídica de cerca de 30% para menos de 2% nas amostras finais.
Quanto às mitocôndrias, o ponto que menos mencionam é a heteroplasmia. Uma célula pode ter cópias do DNA mitocondrial com mutações diferentes coexistindo. Isso não é um defeito do preparo — é realidade biológica. Se você está analisando sequências de mtDNA e vê picos duplos em regiões específicas, não descarta automaticamente como artefato de sequenciamento. Pode ser heteroplasmia real, especialmente em tecidos com alto gasto energético como músculo e neurônios. O mecanismo de fosforilação oxidativa nas mitocôndrias segue o modelo quimiosmótico de Peter Mitchell, mas a eficiência não é constante. O ratio P/O varia entre 2,5 para NADH e 1,5 para FADH2, e isso depende diretamente do acoplamento da cadeia transportadora de elétrons com a ATP sintase. Quando há desacoplamento — seja por proteínas UCP1 em tecido adiposo marrom, seja por agentes como a 2,4-dinitrofenol — o gradiente protônico é dissipado como calor em vez de gerar ATP. Isso é funcional em contextos específicos, como termogênese, mas catastrófico em condições de estresse celular geral. Cloroplastos operam sob lógica diferente. A fase fotoquímica no tilacóide gera ATP e NADPH, mas o ciclo de Calvin no estroma consome esses produtos de forma estequiométrica fixa: 3 ATP e 2 NADPH por molécula de CO2 fixada. Qualquer desbalanço na relação ATP/NADPH produzido pela fotofosforilação cíclica versus não cíclica compromete diretamente a taxa de fixação. Em condições de luz intensa com disponibilidade limitada de CO2 — comum em estômatos parcialmente fechados por déficit hídrico — o excesso de poder redutor leva à formação de espécies reativas de oxigênio. O mecanismo de dissipação térmica via violaxantina-zeaxantina (ciclo das xantofilas) é a principal linha de defesa, mas tem capacidade limitada.
Outro detalhe prático: a importação de proteínas para ambas as organelas exige o complexo TOC/TOC nos cloroplastos e TOM/TIM nas mitocôndrias. Cerca de 99% das proteínas mitocondriais são codificadas no núcleo, sintetizadas no citosol e importadas pós-traducionalmente. Isso cria um gargalo operacional — se a membrana mitocondrial interna perde potencial (m), a importação para e a organela entra em colapso funcional rapidamente. Em ensaios de viabilidade celular que usam JonRed ou MitoTracker, lembre-se de que a perda de fluorescência pode indicar tanto disfunção mitocondrial quanto falha no transporte de proteínas, e os dois cenários têm implicações completamente diferentes. Para quem trabalha com microscopia eletrônica ou mesmo luz com marcadores específicos, a morfologia dessas organelas é enganosa. Mitocôndrias não são estruturas estáticas — elas se fundem e se dividem continuamente através dos processos de fusão (mediada por mitofusinas e OPA1) e fissão (mediada por DRP1). O padrão reticulado que se vê em células saudáveis é dinâmica, não estrutura., os cloroplastos podem alterar sua orientação face à luz através do movimento ativado por actina, posicionando-se perpendicularmente em luz fraca e paralelamente em luz intensa para evitar fotodano. O erro mais comum que vejo em relatórios e artigos iniciantes é tratar essas organelas como compartimentos isolados. A comunicação retrograda — sinais do citoplasma afetando a expressão gênica nuclear, e sinais das organelas afetando a transcrição nuclear — é onipresente. Mudanças no estado redox mitocondrial modulam fatores de transcrição como NF-B e HIF-1. No cloroplasto, o sinal REDX e o estado redox do plastoquinoño regulam a expressão de genes nucleares envolvidos na montagem dos complexos fotoossintéticos. Ignorar essa sinalização bidirecional leva a interpretações equivocadas de dados de transcriptômica e proteômica.

Se você precisa de uma referência rápida para protocolos de isolamento, o método de Percoll gradiente funciona bem para ambas as organelas quando a pureza é crítica. Para cloroplastos, use gradiente de 20-60% Percoll em buffer de suspensão com 0,33M sorbitol, 50mM Tris-HCl pH 8,0 e 2mM EDTA. Para mitocôndrias, gradiente semelhante mas com buffer contendo 250mM sacarose, 10mM HEPES pH 7,4 e 1mM EDTA. O rendimento costuma variar de 40 a 60% dependendo do tecido de partida — tecidos jovens e metabolivamente ativos entregam melhores resultados.
Galeria
-
Citoplasma; organelas; mitocôndrias; cloroplastos; endossimbiótica; | PPTX -

Resumos de Biologia: AS MITOCÔNDRIAS E OS CLOROPLASTOS: ORGANELAS DO ... -
Citoplasma; organelas; mitocôndrias; cloroplastos; endossimbiótica; | PPTX -
Teoria Endossimbiótica de Cloroplastos e Mitocôndrias | PDF

