Organela Citoplasmática
O que são organelas citoplasmáticas
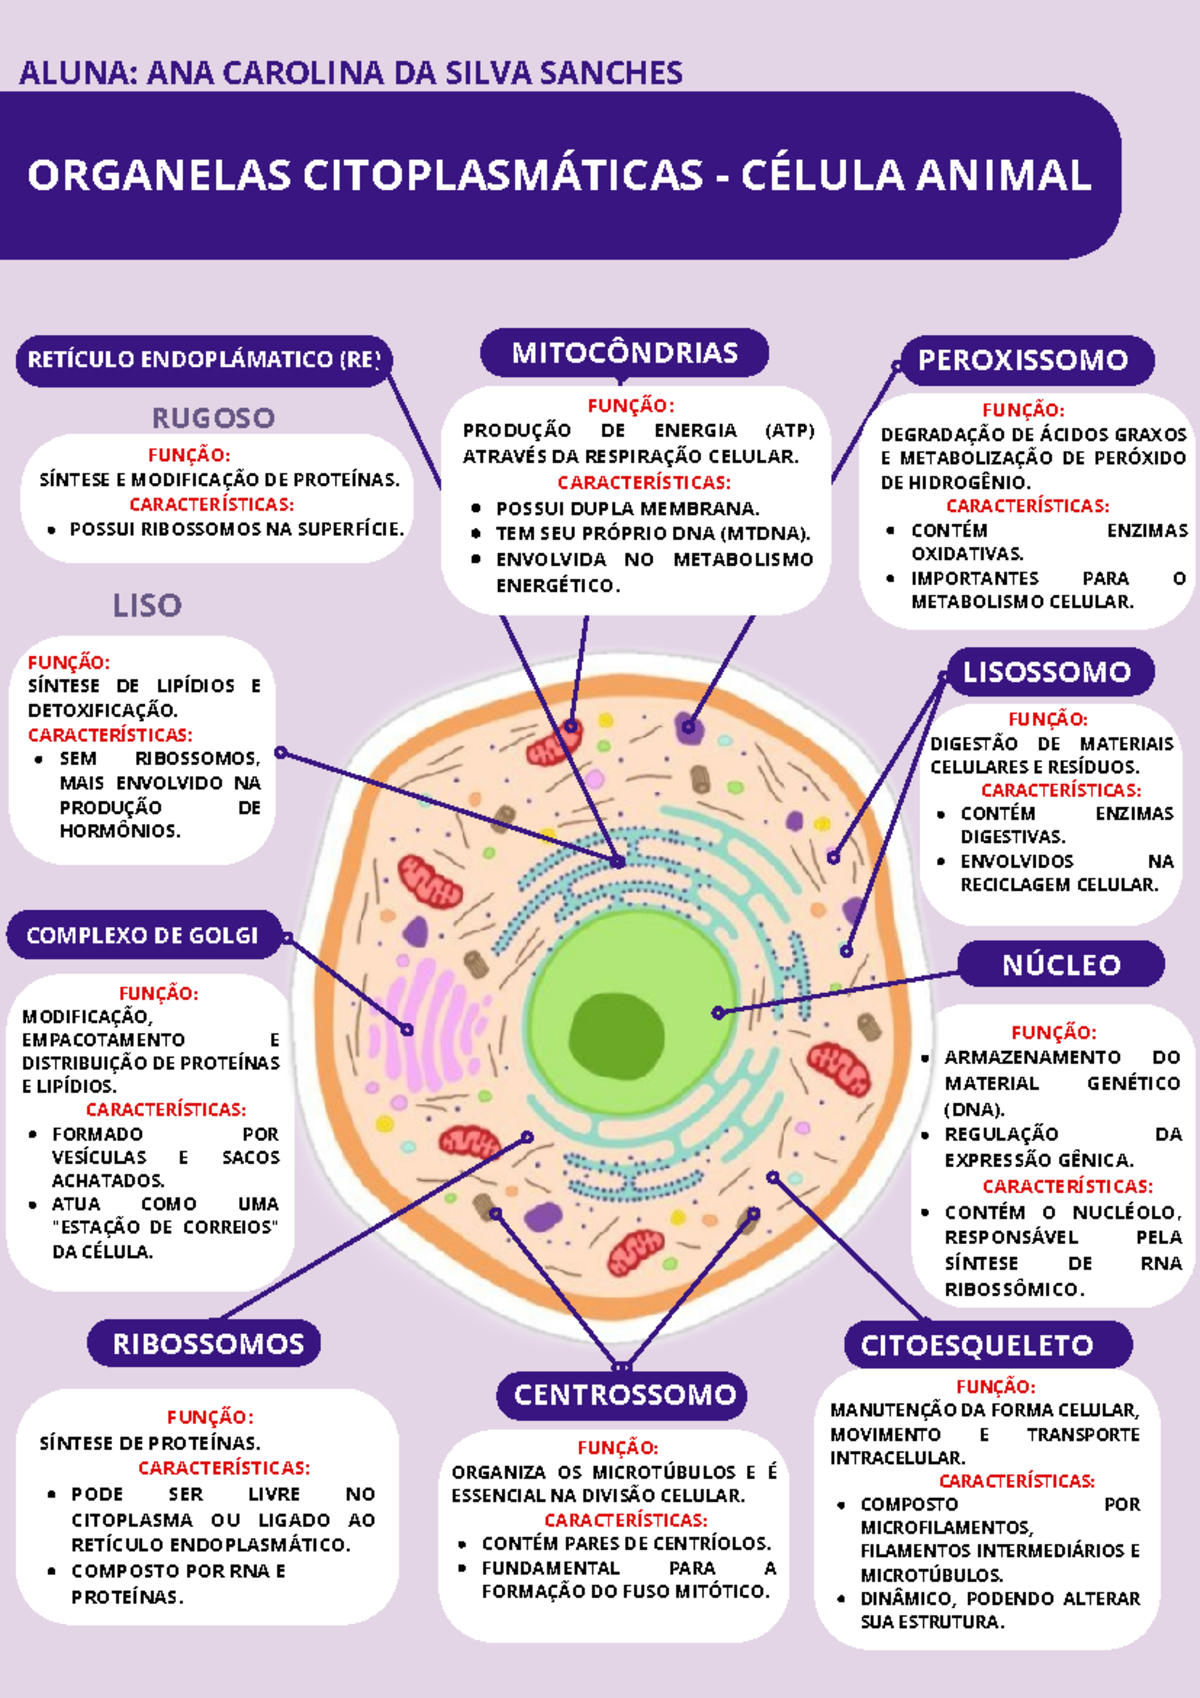
Organela citoplasmática é qualquer estrutura membranosa ou não-membranosa suspensa no citoplasma de uma célula eucariótica. A lista básica que você vê em qualquer livro didático inclui mitocôndria, retículo endoplasmático, complexo de Golgi, lisossomo, peroxissomo, vacúolo, centríolo e citosqueleto. A gente costuma apresentar isso como se fossem peças de LEGO bem definidas, mas na prática a coisa é muito mais borrada. Uma organela pode fundir com outra, perder membrana temporariamente, se dividir de jeitos diferentes dependendo do tipo celular, e várias delas compartilham proteínas de ancoragem que dificultam saber onde termina uma e começa a outra. Eu trabalhava há alguns anos em cultura de linhas de mamíferos monitorando transporte de proteínas quando percebi que o Golgi não se comportava como um conjunto fixo de pilhas de cisternas. Em certas condições de estresse, ele fragmenta e as cisternas se espalham pelo citoplasma, mas continuam funcionando. A gente passa horas achando que a célula parou de secretar porque perdeu a morfologia clássica de "pilha de moedas", quando na realidade a máquina ainda tá rodando, só que desmontada. O workaround que eu descobri foi parar de confiar só na coloração por imunofluorescência contra GM130 e começar a usar marcação para proteínas de transporte vesicular combinada com microscopy de super-resolução. Assim a gente vê que as cisternas estão lá, mesmo sem a arquitetura de pilha que todo livro mostra. Isso vale pra muita coisa. Você não pode diagnosticar disfunção de uma organela citoplasmática só pelo aspecto morfológico. A forma muda com o ciclo celular, com o estado metabólico, com a densidade de cultivo. Se você está medindo algo relacionado a organela citoplasmática, tem que incluir controles funcionais, não só imagem estática.
Mitocôndria: mais do que a usina de ATP
O conhecimento padrão diz que mitocôndria gera energia. Isso é verdade, mas é incomplete. Ela também regula cálcio citosólico, produz espécies reativas de oxigênio de propósito controlado, participa da sinalização apoptótica via citocromo c, e troca lipídios com o retículo endoplasmático em regiões chamadas MAMs, ou contatos mitocôndria-RE. Quando alguém diz "mitocôndria saudável", é necessário especificar o quê. Saúde bioenergética? Integridade da membrana interna? Dinâmica de fusão e fissão? Um detalhe que os iniciantes sempre erram: a quantidade de mitocôndrias não escala linearmente com a demanda energética. Células musculares têm muitas mitocôndrias, mas algumas células tumorais também têm quantidades altas e ainda assim metaboricamente disfuncionais. O que diferencia não é o número, é a rede. Mitocôndrias conectadas em redes tubulares têm distribuição de potencial de membrana mais homogênea e tolerância maior a danos pontuais. Então, se você está avaliando função mitocondrial, olhe a morfologia da rede, não só o volume total. Na prática, quando eu preciso comparar mitocôndrias entre condições experimentais, eu uso duas métricas simultâneas: potencial de membrana por corante joca-cianina, e fração de mitocôndrias em redes contínuas analisada por segmentação de imagem. Só com uma delas o risco de interpretar mal é alto.
Retículo endoplasmático: a armadilha do estresse de dobramento
O retículo endoplasmático rugoso e o liso são continuação do mesmo sistema de membranas, diferenciados principalmente pela presença de ribossomos. A função clássica é síntese de proteínas e lipídios, mas o ponto que a gente perde é a resposta ao estresse do retículo. Quando proteínas não dobram direito, o ER ativa vias de degradação e, se o problema persiste, sinais de apoptose. Isso é particularmente relevante em células secretoras, como plasmócitos e células acinares pancreáticas, que ficam sob carga permanente de dobramento. Eu tive um caso em que uma linhagem celular parecia ter retículo normal por microscopia ótica, mas a taxa de secreção de uma proteína recombinante caía drasticamente após três dias de cultura. A análise funcionl mostrou que o ER tava saturado, com acúmulo de proteína mal dobrada, apesar da morfologia preservada. A solução foi reduzir a densidade de transfeção e incluir um promotor mais fraco no construto. Às vezes o problema não é a organela em si, é a carga que você coloca nela.

Lisossomo e autofagia: reciclagem que não para
Lisossomo é o compartimento ácido de degradação. Ele contém hidrolases ácidas e mantém pH em torno de 4,5 a 5,0 através de bombas de H+ na membrana. A autofagia, por sua vez, é o processo de entrega de material citoplasmático aos lisossomos. Existem várias formas: macroautofagia, microautofagia, autofagia chaperon-mediated. A gente muitas vezes trata autofagia e lisossomo como sinônimos, mas não são. Você pode ter autofagia ativa com lisossomos funcionais, autofagia bloqueada na fusão com autofossomos, ou lisossomos cheios de material não digerido por deficiência enzimática. Um erro comum no laboratório é usar inibidores como bafilomicina A1 ou cloroquina e interpretar o acúmulo de LC3-II como aumento de autofagia. Na verdade, o acúmulo pode significar só bloqueio de degradação final, não aumento de formação de autofossomo. Se você quer medir fluxo autofágico de verdade, precisa de análise temporal com inibidor de fusão lisossomal comparado a condição controle, ou usar sensores de pH sensíveis como mRFP-GFP-LC3, onde o amarelo indica autofossomo maduro e o vermelho indica retenção após perda de ácido.
Peroxisomo: o compartimento que todo mundo esquece
Peroxisomo faz beta-oxidação de ácidos graxos de cadeia muito longa, metaboliza etanol em alguns tecidos, e é essencial na síntese de plasmalógenos, que são fosfolipídios especiais das membranas neuronais. Defeitos em peroxissomo causam doenças como adrenoleucodistrofia e síndrome de Zellweger, mas em cultura celular o peroxissomo é frequentemente negligenciado. Em certos tipos celulares, a ausência ou redução de peroxissomos pode passar despercebida por meses, porque a mitocôndria assume parte da oxidação de ácidos graxos de cadeia mais curta. Quando eu precisei estudar metabolismo lipídico em um modelo de doença neurodegenerativa, a análise inicial mostrou níveis normais de ácidos graxos livres, mas a proporção de ácidos de cadeia muito longa estava elevada. Foi só aí que realizei que o peroxissomo tava comprometido. A correção veio com suplementação de óleo de oliva, que reduz a carga de ácidos graxos saturados de cadeia longa, mas o diagnóstico demorou porque ninguém tinha pedido essa fração específica no início.
Citosqueleto e as organelas não-membranosas
Nem toda organela citoplasmática é cercada por membrana. O citosqueleto é feito de microfilamentos de actina, filamentos intermediários e microtúbulos de tubulina. Ele dá forma à célula, permite movimento, e funciona como trilhos para transporte interno de organelas. Os ribossomos, por sua vez, são complexos de RNA e proteína que realizam tradução, e existem livres no citoplasma ou ancorados ao retículo endoplasmático rugoso. Os filamentos intermediários são particularmente interessantes porque variam de tipo conforme o tecido. Citokeratina em epitélios, vimentina em mesênquimas, neurofilamentos em neurônios, glial fibrilar acid protein em astrócitos. Mudanças no tipo de filamento intermediário podem indicar transição epitélio-mesenquimal em câncer, mas também ocorrem em processos regenerativos normais. Se você está analisando uma amostra e vê mudança na expressão de vimentina, o primeiro questionamento não deve ser "há transformação maligna?", e sim "qual é o contexto fisiológico ou patológico dessa célula?".

Dinâmica e herança das organelas
Organelas citoplasmáticas não são estáticas. Elas se movem ao longo do citosqueleto, se dividem, se fundem, e são distribuídas durante a divisão celular. A herança mitocondrial, por exemplo, segue geralmente padrão materno, mas há relatos de leakage paterno em circunstâncias específicas. A replicação mitocondrial não está acoplada estritamente ao ciclo celular; mitocôndrias podem se dividir independentemente da divisão da célula, o que significa que populações mitocondriais podem divergir ao longo do tempo. Em células diferenciadas como neurônios, o transporte axonal depende criticamente de mitocôndrias sendo movidas por kinesinas e dineínas ao longo de microtúbulos. Se esse transporte é interrompido, as regiões distais do axônio sofrem déficit energético mesmo que o soma tenha mitocôndrias saudáveis. Isso explica por que certas neurodegenerações começam em terminações nervosas e não no corpo celular.
Como avaliar organelas citoplasmáticas na prática
Existem métodos diretos e indiretos. Colorações específicas permitem visualizar cada organela: vermelho MitoTracker para mitocôndrias, DiOC para Golgi, Lentilena para membrana do RE, ácido bicinámonico para lisossomos. Microscopia eletrônica oferece resolução ultraestrutural, mas é destrutiva e cara. Ensaios funcionais medem potencial de membrana mitocondrial, atividade enzimática lisossomal, produção de ROS, taxa de oxigênio consumida. Nenhum desses métodos isoladamente dá o quadro completo. Eu recomendo sempre usar pelo menos duas abordagens complementares. Imagem mostra localização e morfologia. Ensaios bioquímicos mostram função. Genética molecular, com knockdowns ou inhibidores específicos, estabelece causalidade. Se você só faz imagem, corre o risco de confundir adaptação morfológica com disfunção. Se você só faz bioquímica, perde a informação espacial. Se você só faz genética, pode estar estudando efeitos indiretos de compensação celular.
Limitações e cenários onde a interpretação falha
A principal limitação é que a maioria das técnicas perturba o sistema que tenta medir. Corantes fluorescentes em concentrações altas podem tóxicos para mitocôndrias. Inibidores enzimáticos frequentemente têm efeitos off-target. Fixação química altera a morfologia de organelas, especialmente aquelas com membranas dinâmica como retículo e Golgi. Células em cultura se comportam diferente de tecidos in vivo, e tecidos diferentes têm compositions organelares distintas. Outro problema é a variabilidade intra e intercelular. Duas células vizinhas podem ter estados mitocondriais completamente diferentes. Amostras populacionais mascaram isso ao dar médias. Se você está publicando dados de organela citoplasmática, o mínimo aceitável hoje é análise single-cell ou pelo least dezenas de células individualmente quantificadas, não três campos representativos. Para estudos de dinâmica temporal, a microscopia de time-lapse é necessária, mas fototoxicidade limita a duração dos experimentos. O compromisso usual é reduzir frequência de aquisição e potência de laser, aceita perda de resolução temporal em troca de viabilidade celular. Às vezes vale a pena usar células com fluorescência intrínseca, como NADH autofluorescente, para evitar marcação exógena quando o objetivo é só monitorar metabolismo.

Conclusões práticas
Organela citoplasmática é um conceito útil, mas a realidade biológica é mais fluida do que os diagramas dos livros sugerem. As fronteiras entre compartimentos às vezes são difusas, as funções se sobrepõem, e a morfologia responde ao estado funcional da célula. Ao estudar qualquer organela, priorize sempre a função sobre a forma, use múltiplas técnicas de validação, e esteja ciente dos artefatos que seus próprios métodos introduzem. Isso evita interpretações equivocadas que passam por anos na literatura antes de serem corrigidas. Se você quer recomendações de protocolos, posso listar os principais. Para mitocôndria, o padrão-ouro funcional é respirometria com Seahorse, complementada por potencial de membrana e Western blot para proteínas de fusão/fissão. Para retículo, marqueção com marcadores de lúmen e análise de estresse por Western de BiP e CHOP. Para lisossomo, ensaio de beta-glicosidase ácida e monitoramento de pH com SDCM. Para peroxissomo, ensaio de D-amino acid oxidase e análise de ácidos graxos de cadeia muito longa por espectrometria de massas. Cada um tem suas pegadinhas, mas juntos formam um quadro razoavelmente confiável do estado das organelas citoplasmáticas na sua amostra.
Galeria
-

MAPA MENTAL SOBRE ORGANELAS CELULARES/CITOPLASMÁTICAS - Maps4Study -
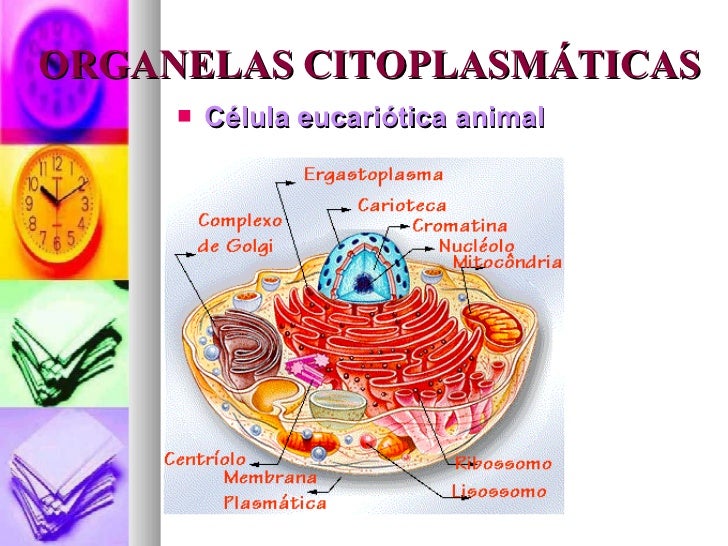
Aula 3 Organelas Citoplasmaticas Cell Biology
